Курсовая работа (т): Ідентифікація Coleochlamys-подібних водоростей наземних біотопів Антарктиди
У п’ятдесяті роки двадцятого століття основним
видом людської діяльності в Антарктиді були різноманітні промисли, здебільшого
пов’язані з виловом риби, криля, тощо. Зараз все більшої популярності та
людської свідомості набувають наукові дослідження. Антарктида - унікальне місце
за своєю первобутністю. Низка сурових умов унеможливлюють повноцінне існування
та нормальне життя людини у цій місцевості, проте відривають незліченні
можливості щодо вивчення первобутньої природи, зміни кліматичних умов
глобального характеру, а також слугують бездоганними умовами, для збереження
здобутків минулих століть, які науковці відкривають знов і знов, адже льодовики
скривають багато таємниць минулого.
2. Дослідження наземних біотопів Антарктиди
.1 Перші дослідження Coleochlamys-подібних
водоростей
Перші вагомі дослідження водоростей наземних біотопів Антарктиди варто віднести до часів появи перших станцій на материку та ближніх до нього островах (Valov, Sdobnikova, 1961; Cameron, 1971; Friedmann, 1977, 1978; та інші). Найбільший вклад у вивчення видового різноманіття наземних біотопів Антарктиди та островів зробив П. Броаді (P.A. Broady - 1976, 1977, 1979, 1981, 1982, 1984, 1986, 1987). Результатом досліджень перечислених науковців та їх праць став достатньо великий список, до якого увійшли водорості із багатьох відділів. На основі досліджень описано нові роди, види та їх різновиди.
У нашій роботі розглядається група Coleochlamys-подібних водоростей, а саме такі види, як - Coleochlamys oleifera (Schussnig) Fott 1975 та Myrmecia Printz. Дані види вперше було розглянуто у роботі P.A. Broady за 1976 рік (Broady, P.A. Quantitative studies on the terrestrial algae of Signy Island, South Orkne Islands. Br. Antarct. Surv. Bull. 47, 31-41) «Quantitative studies on the terrestrial algae of Signy island, south Orkney islands». У своїй роботі автор обробив близько 50 проб наземних біотопів Антарктиди, островів Оркней. Після опрацювання зразків у роботі описано основні родини водоростей - Euchlorophyceae, Ulothricophyceae, Xanthophyceae, Cyanohyceae і Diatomophyceae. Підрахунки було виконано з використанням методу культури, що дала, нажаль, гарні показники лише для перших трьох перерахованих родин. Cyanohyceae і Diatomophyceae - потребували підрахунку за допомогою мікроскопа, що ускладнювало роботу та зведення даних. Головним показником посіяних водоростей став кількісний аналіз, який показав - 219×103 см-2 клітин - кам’яниста пустеля, мох; 7641×103 см-2 клітин - в ґрунті нижче трав'янистої рослинності. Крім того, досліджували розподіл глибини існування водоростей (у двох місцях), зокрема вертикальній мікророзподіл у шарах моху. Чіткої думки стосовно причин відмінностей у підрахунку водоростей в різних місцях проживання немає, отримані дані продовжують обговорюватися та порівнюватися з аналогічними дослідженнями в інших країнах.
Із даної роботи особливу цікавість становило наступне - враховуючи кількісні показники водоростей у різних ареолах існування можна зробити припущення, що «ґрунт», який знаходиться прямо під трав'янистою рослинністю є більш поживним середовищем для водоростей ніж кам’яниста пустеля та мохи Антарктиди (за кількісними показниками статті майже у 35 разів). Проте використовуючи таблицю яку було описано у статті - Рис. 1. можемо побачити, що наші об’єкти, а саме роди Coleochlamys (Schussnig) Fott 1975 та Myrmecia Printz обрали локалітетом свого проживання мохи.
Так ми можемо зазначити, що згідно таблиці Myrmecia bisecta Reisigl була знайдена на
вологому моху Andreaea sp. Hedwig, а Rhopalocystis oleifera Schussnig на вологому
коврі утвореному мохом роду Calliergon sp Hedwig., який можна
побачити на Рис. 2.1.
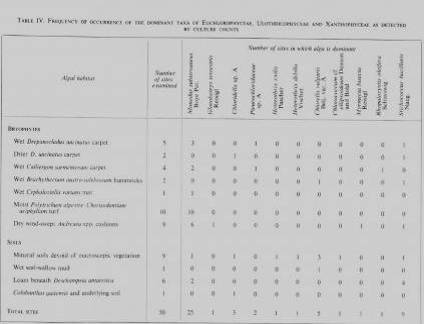
Рис. 2.1 Частота зустрічання домінантів та їх локалітети
Другою, не менш важливою статтею при вивченні питання водоростей Антарктиди можна важчати статтю Broady за 1995 рік «Diversity, distribution and dispersal of Antarctic terrestrial algae». Ця стаття описує різноманітність, поширення і розповсюдження в Антарктиці наземних водоростей. Також у даній роботі були спроби вивчення повного флористичного різноманіття видів на території Антарктиди та островів, що до неї входять. Перше враженням від аналізу - те, що в основному наземні біотопи представлені видами-космополітами. Але існує і невелика кількість ендемічних видів, однак їх відсоткова частка значно менша порівняно з аналогічними біотопами інших континентів. Слід зазначити, що існує невелика кількість ендемічних видів, які мало чим відрізняються від споріднених видів із інших місць. Відсутність базової лінії таксономії через неможливість збору проб одного історичного віку), не дуже точна характеристика кліматичних умов (на даний час ми можемо робити лише вірогіднісні припущення щодо клімату, який панував у далекому минулому на континенті), а також - неможливість застосування багатовимірного аналізу (кліматичні умови Антарктиди далеко не найсприятливішими для великої кількості науковців, а також специфічність району потребує не лише специфічного технічного обладнання, а й нових технічних розробок досліджень) обмежують наукове вивчення даних територій.
У статті проаналізовано та виділено основні фактори розповсюдження водоростей на континенті та прилеглих до нього територіях. У 1991 Панков [Pankow et al., 1991] підрахував, що близько 700 таксонів (не враховуючи морські види) є первинно визаченими в Антарктиді. Із них, в свою чергу, близько 200 - мешканці наземних біотопів. На даний час наведені вище дані мають більше ознайомлюючий та історичний характер, через те, що останнім часом кількість описаних видів, а тому і таксонів, дещо збільшилась. Проте Панков досить гарно підмітив співвідношення та один із перших розглядав наземні водорості, як види, що належать до континентальних районів Антарктиди.
Загалом водорості зустрічаються на всіх вільних від льоду місцях [Smith, 1984]. Вони утворюють поверхневі кірочки, килимки, скупчення. У флорі домінують ціанобактерії, хлорофіли, жовто-зелені водорості і дещо у меншій мірі діатомові водорості. Останні є більш зосередженими у холодних і посушливих прибережних зонах. Тут же також велике значення відіграє рослинність. На самому континенті вона представлена виключно мохоподібними та лишайниками. Тут в свою чергу дослідження були проведені Хірано [Hirano, 1965], Кообом [Koob, 1967], Вінсентом [Vincent, 1988] та іншими, які описали екологічний стан континенту та підтвердили панування тут із рослинних форм лише перераховані. Багато століть назад тут панувала дуже різноманітна рослинність, проте зараз через тривалого часу несприятливих специфічних кліматичних умов вона дуже збідніла.
У цій статті для повноцінного вивчення територію Антарктиди та прибережних до неї територій було поділено на 21 локалітет. Таблиці із місцезнаходженням локалітетів можемо бачити на Рис. 2.2 та Рис. 2.3
У таблицях зазначаються регіони дослідження, із
відповідною літературою стосовно кожного окремого району, а також -
відмічаються основні екологічні ніші місцезростання/місцезнаходження
водоростей. Загалом таких груп 9 (за Хабітатом) - літофіли, епілітні,
ендолітичні, хазмолітичні, кріптоендолітичні, гіполітичні, грунтові, епіфітні
та кріофільні. У кожному з 21 району відмічено їх екологічні ніші та
присутність (наявність).
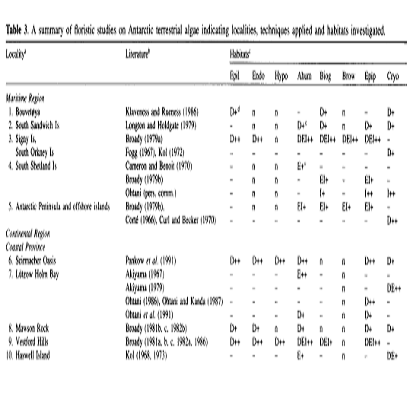
Рис. 2.2 Локалітети, їх екологічні ніші та
відповідна література
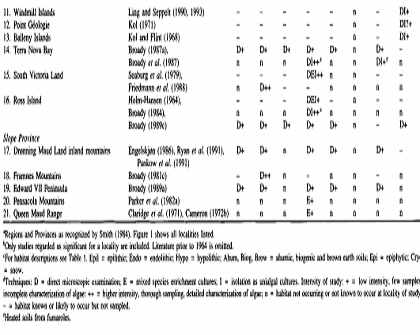
Рис. 2.3 Локалітети, їх екологічні ніші та література (частина 2)
екологічний біотип водорості наземний
У роботі також зазначається приклади основних родів водоростей наземних біотопів Антарктиди:
Ціанобактерії (синьо-зелені водорості)
· одноклітинні, в тому числі у слизових колоніях
Aphanocapsa Nägeli, Chroococcidiopsis Geitler, Gloeocapsa Kützing, Synechococcus Nägeli
· Недиференційовані «oscillatoriales» -
Lyngbya Anagnostidis & Komárek, Oscillatoria Vaucher ex Gomont, Microcoleus Desmazières ex Gomont, Phormidium Kützing ex Gomont, Plectonema Thuret ex Gomont, Pseudanabaena Lauterborn
· Нерозгалужені ланцюги з клітин, які диференціюються -
Anabaena Bory de Saint-Vincent ex Bornet & Flahault, Calothrix C. Agardh ex Bornet & Flahault, Microchaete Thuret ex Bornet & Flahault, Nodularia Mertens ex Bornet & Flahault, Nostoc Vaucher ex Bornet & Flahault, Scytonema C. Agardh ex Bornet & Flahault, Tolypothrix Kützing ex Bornet & Flahau
· Розгалужені ланцюги клітин, які диференціюються - Mastigocladus, Stigonema(зелені водорості)
· Одноклітинних, з джгутиками - Chloromonas Gobi
· Нерухомі одноклітинні -
Bracteacoccus Tereg, Chlorococcum Meneghini, Elakatothrix Wille, Hemichloris Tschermak-Woess & Friedmann, Rhopalocystis Schussnig, Pseudococcomyxa Korshikov, Pseudodictyochloris Vinatzer, Scotiella Fritsch, Tetracystis R.M. Brown, Jr & Bold, Trochiscia Kützing
· Нерухомі одноклітинні в слизових колоній -
Coccomyxa Schmidle, Diplosphaera M.W. Bialosuknia
· нерозгалужені нитки -
Stichococcus Nägeli, Fottea F. Hindák, Hormidiospora Vinatzer, Ulothrix Kützing
· Розгалужені нитки або регулярні агрегати клітин -
Desmococcus F. Brand, Microthamnion Nägeli, Prasiococcus Vischer, Pleurococcus Meneghini
· одноклітинні «десмідієві» -
Actinotaenium (Nägeli) Teiling, Cylindrocystis Meneghini ex De Bary, Mesotaenium Nägeli
Xanthophyta (жовто - зелені водорості)
· Одноклітинні - Botrydiopsis Borzì, Monodus Chodat
· Нерозгалужені і розгалужені нитки - Heterothrix Pascher, Heterococcus Chodat
Bacillariophyta (діатомові водорості)
· Одноклітинні - Bory de Saint-Vincent, Eunotia Ehrenberg, Hantzschia Grunow, Navicula Bory de Saint-Vincent, Pinnularia Ehrenberg
Pyrrhophyta (дінофлагелляти)
· Одноклітинних в невеликих слизових колоній - Gloeodinium. Klebs
2.2 Водорості наземних біотопів району
дослідження
Відповідно до огляду П. Броаді (Broady, 1996), у наземних біотопах Антарктики водорості утворюють чотири основних типи угруповань: а) літофільні (розвиваються на поверхні та в тріщинах гірських порід; б) едафофільні (розвиваються в ґрунті); в) епіфітні (ростуть на поверхні таломів мохів та печіночників); та г) кріофільні (вегетують в товщі та на поверхні снігу та льоду). Крім того водорості як фотобіонти розвиваються в таломах лишайників.
Видове різноманіття водоростей наземних біотопів Антарктики залишається невстановленим, оскільки флори та чек-лісти по даній території відсутні. Наш аналіз літературних даних, що містять первинні відомості про знахідки мікроводоростей, дозволяє стверджувати, що на сьогодні для позаводних біотопів Антарктики наводиться близько 267 назв видів та внутрішньовидових таксонів водоростей, включаючи 57 таксонів, що були ідентифіковані лише до рівня. роду.
Виявлені види належать до 6 відділів (Cyanophyta - 101 вид, Chrysophyta - 1, Eustigmatophyta - 1, Xanthophyta - 24, Bacillariophyta - 19, Chlorophyta - 121). (Akiyama, 1968, 1979; Broady, 1976, 1977; 1979 a, b, c, 1981 a, b; 1982 a, b; 1983; 1984; 1985, 1986, 1987 a, b; 1989 a, b; 1996; Cameron and Benoit, 1970; Саmeron, 1970, a b); Ohtani, 1990; Cameron, 1970; Engelskjøn, 1986; Fogg, 1967; Gain, 1912; Kol, 1968, 1970, 1971, 1972, 1973; Ling, 2001, 2002; Ling, Seppelt, 1990, 1993; Ohtani, Kanda, 1987; Pankow & al., 1987; Olech, 1998; Mataloni et al., 2000; Cavacini, 2001).
Територіально дослідження наземних водростей в Антарктиці проводилось в 21-му локалітеті, зокрема в 5 внутрішніх та 11-ти прибережних провінціях континентальної Антарктики, також в 5-ти районах Морської Антарктики, а саме: а) на Південних Сандвічевих островах (Longton, Holdgate, 1979) вивчали епілітні та едафофільні угрупування водоростей різних типів грунтів, переважно методом прямого мікроскопіювання; б) на Південних Оркнейських островах (Fogg, 1967; Kol, 1972; Broady, 1979a) досліджували водорості угруповань всіх типів з використанням методів накопичувальних та чистих культур; в) на Південних Шетландських островах (Cameron and Benoit, 1970; Broady, 1979b), вивчалися кріофільні водорості та водорості різних типів ґрунтів з використанням методу накопичувальних культур; г) на острові Буветойя (Klaveness and Rueness, 1986) вивчалися епілітні кріофільні та едафофільні водорості; д) на Антарктичному півострові та прилеглих островах (Broady, 1979b; Corté, 1966; Curl and Becker, 1970; Davey and Rothery, 1993; Mataloni, Tell, Win-Williams, 2000) вивчалися грунтові та кріофільні водорості.
За літературними даними (Mataloni, et al., 2000) для території Антарктичного півострова відомо 49 видів ґрунтових водоростей що належать до чотирьох відділів: Cyanophyta, Xanthophyta, Bacillariophyta та Chlorophyta. Домінуючими є види відділів Cyanophyta (31%) та Chlorophyta (35%). Незважаючи на те що район Антарктичного півострова в порівнянні з іншими вивчений непогано, відомості про наземні водорості Землі Грейяма майже відсутні.
Так, дані про наземну альгофлору Землі Грейяма є лише в одній роботі (Gain 1912). В ній автор наводить один вид водорості Mycanthococcus antarcticus Wille (=Chlamydomonas antarcticus Wille in Gain 1912), акінети якого зумовлюють червоне цвітіння снігу. Даний вид був знайдений на острові Пітерман (Земля Грейама). У 2001 році Г.Лінг у своїй роботі (Ling. 2001) відніс знахідку Гайна до іншого роду і встановив новий вид - Desmotetra antarctica (Fritsch) H.U. Ling 2001. В роботі 2002 року (Ling, 2002) цей же автор переніс встановлений ним вид у рід Chlorosarcina і дав йому сучасну назву Chlorosarcina antarctica (Wille in Gain) H.U. Ling 2002. Таким чином наземні водорості Землі Грейяма залишаються фактично не вивченими.
Найбільший цікавими у флористико-таксономічному відношенні були знахідки двох видів. Перший - Coleochlamys cf. oleifera - майже усім нагадував типовий штам даного виду (Schussnig, 1955), описаний із грунтів острову Сайні (Південих Оркнейських острова), від якого відрізняється іншим типом крохмальної обгортки піреноїду. Такий штам раніше був віділений із грунтів о-ву Короля Георга (Kostikov, Massalski, Olech, 2003). Варто зауважити, що ці відмінності у структурі піреноїду було доведено на ультраструктурному рівні. Також було зроблене припущення, що ізоляти із грунтів як о-ву Короля Георга, так і о-ву Галіндез представляют один і тот самий новый таксон видового чи внутрішньовидового рангу, близький до типової форми Coleochlamys oleifera.
Другий вид - Elliptochloris cf. bilobata, не мав
морфологічних відхилень від номенклатурного типу. Цей вид був описаний як
фотобіонт високогірних альпійських лишайників (Tschermak-Woess, 1980), а
пізніше знайдений у ґрунті північно-східного Кавказу (Андреева, 1996) та
Бельгійських Арденн (Hoffmann, Ector, Kostikov, 2007). Оскільки
даний вид на території Антарктики раніше не відмічався, а рівень
внутрішньовидової мінливості європейських популяцій досить високий (Hoffmann, Ector, Kostikov, 2007), існує
припущення, що одних лише морфологічних критеріїв для остаточної ідентифікації
у даному випадку недостатньо, тому визначення таких видів потребує
підтвердження методами геносистематики.
3. Матеріали і методи
.1 Матеріали і методи
Для дослідження використовували наступні штами - ACKU 151-02, ACKU 821-08, ACKU 822-08, ACKU 823-08, ACKU 824-08, ACKU 826-08, ACKU 833-08, ACKU 836-08 із колекції культур Київського Національного Університету імені Тараса Шевченка. Дані щодо цих штамів занесені до таблиці 3.1.
Культури вирощували на твердому поживному агаризованому середовищі 1,5N BBM + V у пробірках та чашках Петрі на освітлювальній установці при інтенсивності в 1800-2400 лк та при температурі 18-22 0С з 16/8 годинним чергуванням світлової та темнової фаз.
Із культур було виготовлено тимчасові водні препарати. Для цього у стерильних умовах масу клітин розміщували на склі (у випадку проб, які забирались із твердого поживного середовища додавали краплину води). При кожному мікроскопіюванні переглядали близько 100 клітин.
Для вивчення морфологічної структури та
анатомічних особливостей використовували світлові мікроскопи «Carl Zeiss» PrimoStar (Німеччина), r і Ulab XY-B2T
(Китай), та камери Canon PC 1089 Power shot. Особливості культур
водоростей документували за допомогою малюнків у робочому журналі, детальних
описів із підрахунками та зазначенням характерних структур або їх частин, а
також за допомогою цифрової фотокамери Tucsen TCA та програми TSView7, які
згодом оброблялись за допомогою програми AxioVision Rel. 4.8.
Таблиця 3.1. Основні данні щодо
використаних у роботі штамів
№ штаму
Назва ACKU
Місце
збору, ким ізольований, дата
ACKU
№151-02
Coleochlamys
cf. oleifera var. antarctica (Schussnig)
Fott
Антарктида,
Південні Шетланські о-ви, о-в Короля Георга, околиці польської антарктичної
станції «Генрих Арктовський», екологічна трансекта біля глетчеру (Site of
Special Scientific Interest), грунт (проба Olech-4), приблизно 2000
р.Ізольований Костіков І.Ю. 28.09.2002 р.
ACKU
№821-08
cf.
Coleochlamys oleifera
(Schussnig) Fott
Антарктика,
Аргентинські о-ви, о-в Галіндез, біогеоценологічний стаціонар Українського
антарктичного центру, постійна пробна площа №14, зразок моху Sanionia
georgico-uncinata (мох визначила Тищенко О.В). Ізольований Костіков І.Ю.
4.02.2008
ACKU №822-08
cf. Coleochlamys sp (Schussnig) Fott
Антарктика,
Аргентинські о-ви, о-в Галіндез, біогеоценологічний стаціонар Українського
антарктичного центру, постійна пробна площа №14, зразок моху Sanionia
georgico-uncinata (мох визначила Тищенко О.В). Ізольований Костіков І.Ю.
3.02.2008
ACKU
№823-08
cf.
Myrmecia irregularis (J.B.
Petersen) Ettl & Gärtner
Антарктика,
Аргентинські о-ви, о-в Галіндез, біогеоценологічний стаціонар Українського
антарктичного центру, постійна пробна площа №14, зразок моху Sanionia
georgico-uncinata (мох визначила Тищенко О.В). Ізольований Костіков І.Ю.
9.03.2007
ACKU
№824-08
cf.
Myrmecia irregularis
(J.B. Petersen)
Ettl & Gärtner
Антарктика,
Аргентинські о-ви, о-в Галіндез, біогеоценологічний стаціонар Українського
антарктичного центру, постійна пробна площа №14, зразок моху Sanionia
georgico-uncinata (мох визначила Тищенко О.В). Ізольований Костіков І.Ю.
12.01.2008
ACKU
№826-08
cf.
Myrmecia irregularis
(J.B. Petersen)
Ettl & Gärtner
Антарктика,
Аргентинські о-ви, о-в Галіндез, біогеоценологічний стаціонар Українського
антарктичного центру, постійна пробна площа №14, проба відкритого
грунту.Ізольований Костіков І.Ю. 23.02.2008
ACKU
№833-08
cf.
Coleochlamys oleifera
(Schussnig) Fott
Антарктика,
Аргентинські о-ви, о-в Галіндез, біогеоценологічний стаціонар Українського
антарктичного центру, постійна пробна площа №14, зразок моху Sanionia
georgico-uncinata (мох визначила Тищенко О.В). Ізольований Костіков І.Ю.
2.03.2008
ACKU
№836-08
Coleochlamys
sp. (Schussnig) Fott
Антарктика,
Аргентинські о-ви, о-в Галіндез, біогеоценологічний стаціонар Українського
антарктичного центру, постійна пробна площа №21, пластичний грунт коричневого
кольору з дна висохлого озерця, зарослого мохом.Ізольований Костіков І.Ю.
18.06.2007
Аналіз вторинної структури ITS2 було проведено
шляхом моделювання засобами Mfold [Zuker, 2003] вторинної структури термінальної ділянки
5.8S та
комплементарної до неї стартової ділянки LSU (19 п.н.) згідно до
моделі 5.8S, запропонованої для динофітових водоростей [Gottschling & Plotner, 2004].
Пошук проводили за допомогою алгоритму множинного
вирівнювання ClustalW в програмі BioEdit.
Моделі вторинної структури ITS2 будували прямим
складанням транскриптів за допомогою mFOLD [Zuker, 2003]. Вторинну структуру ITS2 визначали шляхом
послідовної збірки спіралей H1-H4. При цьому спочатку збирали третю та другу
спіралі, правильність укладки якої тестували за положенням консервативного
мотиву А. Колеман - NRTGGT [Coleman, 2007] в апікальный частині на 5’ стороні
спіралі H3 та положенням універсального консервативного піримідин-піримідин
неспівпадіння у суббазальній частині спіралі H2 [Mai, Coleman, 1997]. Отримані
моделі вторинних структур ITS2 візуалізували за допомогою Pseudoviewer 3.0 [Byun & Kyungsook, 2006].
4. Результати та обговорення
.1 Морфологічний аналіз Coleochlamys-подібних
водоростей
У ході роботи обрані проби водоростей вирощували
на 1,5N BBM із додаванням вітамінів у чашках Петрі при температурі 18-22 0С
із світло/темновим режимом - 16/8. Із кожної проби було взято живі клітини для
виготовлено тимчасових препаратів. Під час перегляду було виготовлено
фотографії при збільшені об’єктиву мікроскопу 100х, які передали основні
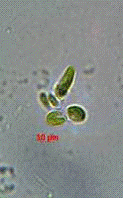
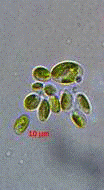
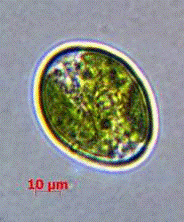
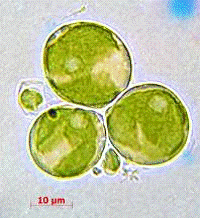
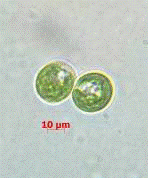
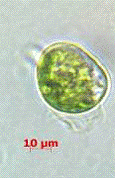
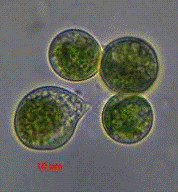
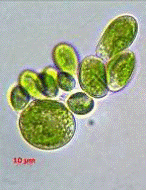
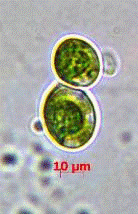
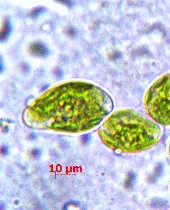
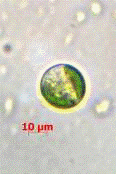
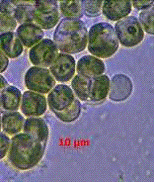
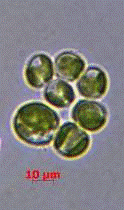
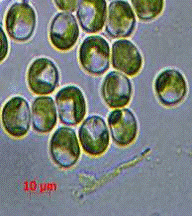
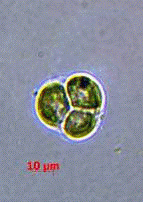
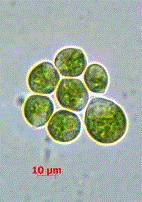
морфологічні особливості водоростей (Рис. 4.1 - 4.8). Фотографії та описи
надано нижче.
Рис. 4.1 ACKU 151-02 Coleochlamys
cf. oleifera var. antarctica
Рис. 4.2 ACKU 821-08 cf. Coleochlamys
oleifera
Рис. 4.3 ACKU №822-08 Coleochlamys
sp
Рис. 4.4 ACKU №833-08 cf. Coleochlamys
oleifera
Рис. 4.5 ACKU №836-08 Coleochlamys sp
Рис. 4.6 ACKU №823-08 cf. Myrmecia irregularis
Рис. 4.7 ACKU №824-08 cf. Myrmecia irregularis
Обрані штами попередньо представляють собою
фактично 2 роди - Coleochlamys та Myrmecia. Обрані штами
було поділено на 2 групи:
· штами роду Coleochlamys -
ACKU №151-02
ACKU №821-08
ACKU №822-08
ACKU №833-08
ACKU №836-08
· штами роду Myrmecia -
ACKU №823-08
ACKU №824-08
ACKU №826-08
Отримані морфологічні дані були занесені у
таблиці, де вони відразу порівнювались відповідно до первинних описів.
Таблиця 4.1. Морфологічні ознаки штамів роду Myrmecia у порівняні до
діагнозу Ettl, H. & Gärtner, G. 1995
Ознака
Опис
виду Ettl, H. & Gärtner, G. 1995.
штами
роду Myrmecia ACKU №823-08; ACKU №824-08;
ACKU №826-08
форма
вегетативних клітин
кулята
Куляста,
шаровидна
форма
автоспор
кулясті
Яйцеподібні (рідше кулясті)
форма
апланоспорангіїв
округлі
округлі
Кулькість
клітин у спорангіях
4
4,
положення хрестоподібне
зооспори
голі
голі
Особливість
зооспор
базальна стигма
не
завжди видно ізза асимілянтів
оболонки
гладка,
звичайного типу
гладка,
звичайного типу
Хлоропласт у вегетативних клітинах
Один,
парієтальний переважно сітчастий, буває лопатевий
Один,
парієтальний переважно лопатевий (2-4)
Піреноїд
відсутній
відсутній
Включення
незначні
незначні
аbс.
Розміри вегетативних клітин M. irregularis
Довжина
16-24 мкм Ширина 15-20 мкм
Довжина
17-25 мкм, ширина здебільшого 14-17
Таблиця 4.2. Морфологічні ознаки штамів роду Coleochlamys у порівняні до
діагнозу Ettl, H. & Gärtner, G. 1995
Ознака
Опис
виду Ettl, H. & Gärtner, G. (1995. Syllabus der Boden-,
Luft - und Flechtenalgen)
штами
роду Coleochlamys ACKU №152-02; ACKU №821-08; ACKU №822-08; ACKU №833-08; ACKU №836-08
форма
вегетативних клітин
Яйце-,
грушо-подібна, здебільшого булавовидна (у молодому віці - куляста)
булавовидна
(неправильно-округла, куляста - ACKU №833-08)
форма
автоспор
кулясті
яйцеподібні)
форма
апланоспорангіїв
округлі
округлі
зооспори
Витягнуто-грушовидні
Грушовидні
Кратність
клітин у зооспорангіях
2n
2n
Особливості
кріплення зооспор у спорангіях
Формують
щільні скупчення «грона» Кількість
зооспор у зооспорангії
32
10,16,18
(32)
відносні
розміри зооспор у зооспорангіях
рівні
рівні,
злегка нерівні
оболонки
гладка,
звичайного типу
гладка,
звичайного типу
Хлоропласт
у вегетативних клітинах
Мантієподібний,
боковий
Мантієподібний,
боковий
Піреноїд
Один,
досить гарно видно
Один,
досить гарно видно
Особливості
піреноїду
чіткий
край, не має певного положення
чіткий
край, не має певного положення
Включення
У
молодих клітинах багато
Багато
у молодих клітинах
аbс.
Розміри вегетативних клітин С.oleifera
Довжина
до 30 мкм Ширина 12-14 мкм
Довжина
до 30 мкм, ширина здебільшого 12-14
аbс.
Розміри зооспор
Довжина
8-9 мкм Ширина 3-3.5 мкм
Довжина
8-9 мкм Ширина 3-3.5 мкм (здебільшого трошки
менша)
Аналіз морфологічних показників обраної
досліджуваної групи не показав суттєвих відхилень від авторських описів родів.
Проте склалося враження, що серед представлених штамів ми спостерігаємо один
таксон, який виглядає як одноклітинні зооспороутворюючі зелені водорості з
асиметричними мішкоподібними клітинами, схожі на представників роду Coleochlamys.
Також здається, що цей цей таксон представлений двома морфотипами. Так ми
можемо умовно назвати їх, як - морфотип Coleochlamys та перехідний
від Myrmecia до Coleochlamys. Тому у ході роботи
обрані штами також було проаналізовано на раритетність, цінність у
таксономічному плані та наявність секвенованих послідовностей (Таб.4.3).
Таблиця 4.3. Порівняльна таблиця раритетність/
цінність / сіквеннованість
№
штамма
Попередня
назва (назва в ACKU)
RR*
TT*
SS*
ACKU
№151-02
Coleochlamys
cf. oleifera var. antarctica
+
-
-
ACKU
№821-08
cf.
Coleochlamys oleifera
+
+
-
ACKU №822-08
cf. Coleochlamys sp
+
+
+
ACKU
№823-08
cf.
Myrmecia irregularis
+
+
-
ACKU
№824-08
cf.
Myrmecia irregularis
+
+
-
ACKU
№826-08
cf.
Myrmecia irregularis
+
+
-
ACKU
№833-08
cf.
Coleochlamys oleifera
+
-
-
ACKU
№836-08 -
+
+
*R - раритетний, T - цінний у
таксономічному плані, S - секвенований
Із таблиці видно, що всі види - раритетні та
цінні у таксономічному відношенні, а тому актуальне їх вивчення. Сіквенованих
видів лише 2 - ACKU №822-08 cf. Coleochlamys sp та ACKU №836-08 Coleochlamys
sp.
4.2 Молекулярно-філогенетичний аналіз
сіквенованих зразків
У ході нашого дослідження всі обрані види Coleochlamys-подібних
водоростей потребували більш ретельної ідентифікації та вивчення. Тому в основу
лягли: морфологічний аналіз, який не показав досить суттєвих відмінностей видів
від авторських описів та визначників, тому особливу увагу приділимо
молекулярно-філогенетичному аналізу. Нажаль, із обраних видів лише 2
сіквеновані - ACKU №822-08 cf. Coleochlamys sp та ACKU №836-08 Coleochlamys
sp. Обрані види було секвеновано (Скребовська, Березовська - замовлення №131017
SN 131 (822-sample 66) та №131001 FR 016 (836 - sample 67)). Для
секвенування було використано універсальні праймери: ITS1 та ITS4 - для
ампліфікації та ITS4 яксеквенуючий.
Варто зауважити, що до цього моменту у базі NCBI послідовності ДНК виду Coleochlamys не були
задепоновані.
Послідовність зразку ACKU №822-08 загальною
довжиною 933 пар нуклеотидів (п.н.) має задовільну якість, містила частковий
сіквенс 18S рДНК, ITS1, 5.8S рДНК (625-645), ITS2 (647-899), та частковий
сіквенс 28S рДНК (907-927). Послідовність зразку ACKU №836-08 загальною
довжиною 405 п.н. має також задовільну якість, містила частковий сіквенс ITS1
(1-127), 5.8S рДНК (128-148), ITS2 (150-405). Ці 2 зразки співпали на 404 н.п.,
у тому числі частина 18S, ITS1, а також частини 5,8S rDNA (21 п.н.), ITS2 - петля H1 (36 п.н.),
петля H2 (44 п.н.), петля H3 (118 п.н.) та петля H4 (49 п.н.).
Таким чином, два секвеновані зразки штами ACKU №822-08 та ACKU №836-08
повністю перекриваються у ділянках 5,8S rDNA та ITS2, що становить близько -
268 н.п. послідовність зразку ACKU №836-08 повністю співпадаєз послідовністю
штаму ACKU №822-08 - 405 п.н. За ділянками перекриття послідовності 18S,
ITS1, ITS2 та 28S у всіх зразків були ідентичні. Це дає підстави стверджувати,
що ці зразки є різними морфотипами одного виду. Для встановлення положення
об’єктів, для яких було секвеновано зазначені вище послідовності, ми виконали
BLAST-ідентифікацію. Оскільки як ми визначили що зразки штамів скоріше за все є
одним видом, то у подальшому будемо використовувати більш якісний сіквенс
послідовності штаму ACKU №822-08. Таким чином, маючи послідовність Coleochlamys-подібної
водорості, було проведено спроби встановити найбільш подібні сіквенси до неї та
визначити приналежність до досліджуваної групи водоростей. Для цього було
використано алгоритм послідовностей ITS1-5.8S-ITS2 кластеру ядерних
рибосомальних генів BLAST (http://blast.ncbi.nlm.nih.gov/).
Найбільш перекриття до отриманих нами
послідовностей виявила Parachlorella sp CCAP 206/1 із кодом
доступу в NCBI - GQ 502287.1 на 95%; на 94% - Micractinium sp (код доступу KF 689572.1), Meyerella planktonica isolate itas 6/3 M-1d (A4543046), Microactinium pusillum (FR865692.1), Choricystis minor (FN 870434.1), Uncultured Chlorella (AB903014.1), Raphidonema pyrenoidifera (AJ 431675.1), Koliella sempervirens (AJ431673.1), Koliella Antarctica (AJ431672.1), Pseudochlorella pyrenoida (AM 4229986.1) та
після Heynigia riparia CCAP 222/47 (GQ 487225.1) ступінь
перекриття зменшується. Загалом зразків із перекриттям 95-94% - 34 сіквенси.
Здебільшого детектовані види відносяться до Trebouxiophyceae, що вказує на
вірогідну приналежність наших власних штамів до даного класу.
Для подальшої ідентифікації досліджуваної групи
водоростей будемо використовувати молекулярно-філогенетичні методики. У
сучасній науці широкого використання набуло застосування методу аналізу
вторинної структури транскриптів ITS, зокрема ITS2. Для цієї послідовності
А. Колеман [Coleman, 2007] зі співавторами показала у серії робіт універсальність
моделі будови вторинної структури ITS2 та наявність у ній пан-евкаріотичних мотивів. [Mai, Coleman, 1997]. На
основі аналізу вторинної структури ITS2 встановлюється клас-специфічний мотив,
що являє собою незмінну ділянку в нуклеотидній послідовності на рівні класу.
На основі результатів попередньої
BLAST-ідентифікації беремо за основу клас-специфічний мотив Trebouxiophyceae - ATTGGTAAG. У ході
проведеного пошуку виявилось, що послідовність водорості Trebouxia decolans SW-19b із кодом доступу
в NCBI - FJ 705180.1 окрім
одного нуклеотиду є ідентичної до шуканої послідовності клас-специфічного
мотиву требукціофіцієвих водоростей. Наступні пошуки привели нас для водорості
під назвою Dictyochloropsis symbiontica CAUP H8603 з кодом
доступу в NCBI - KC 333517.1. Встановлено що секвеновано послідовність сіквенс
даної водорості цілком співпадає із виявленим нами мотивом ATTGGTAAG Наведена вище
водорість відноситься до Trebouxiophyceae, класу Microthamniales. Найкращі
показники перекриття показала - Parachlorella sp. CCAP 206/1 із кодом
доступу GQ 502287.1. Дана водорість співпала із нашою нуклеотидною
послідовностю Coleochlamys на цілих 160 нуклеотидів [3926-4086], в тому
числі і за самим клас-специфічним мотивом (Таб. 4.4.).
Таблиця 4.4. Детекція клас-специфічного мотиву Trebouxiophyceae (Coleman 2007)
Клас -
специфічний мотив Trebouxiophyceae [Coleman, 2007]
A
T
T
G
G
T
A
A
G
Частина
нуклеотидної послідовності Trebouxia decolans
A
T
T
G
G
T
A
G
-
Частина
нуклеотидної послідовності Dictyochloropsis symbiontica
A
T
T
G
G
T
A
G
G
Частина
нуклеотидної послідовності Parachlorella sp. CCAP 206/1*
A
T
T
G
G
T
A
G
G
На основі отриманих даних нами було побудовано
реконструкцію вторинної ITS2 для штаму ACKU 822 Coleochlamys Рис. 4.9
засобами Mfold [Zuker, 2003]. Початок та кінець ITS2 детектували за
допомогою побудови ніжки-гібрида з термінальної ділянки 5.8S та
комплементарної до неї стартової ділянки LSU (19 п.н.) згідно до
моделі, запропонованої для динофітових водоростей [Gottschling & Plotner, 2004].
Вторинна структура транскрипту ITS2 Coleochlamys ACKU 822 відповідає
кільцеподібній моделі з чотирма спіралями, де спіраль Н3 є найдовшою та на 5’ -
стороні в субапікальній частині (сайти 147-156) містить консервативний для Trebouxiophyceae мотив А.
Колеман, представлений послідовністю ATTGGTAAG.
Вторинну стуктуру ITS2 будували прямим складанням
транскриптів за допомогою Mfold [Zuker, 2003 шляхом послідовної збірки спіралей H1-H4.
При цьому спочатку збирали третю та другу спіралію Правильність укладки
тестували за положенням консервативного мотиву А. Колеман - NRTGGT [Coleman, 2007] в
апікальный частині на 5’ стороні спіралі H3 та положенням
універсального консервативного піримідин-піримідинового неспівпадіння у
суббазальній частині спіралі H2 [Mai, Coleman, 1997]. Отримані моделі вторинних
структур ITS2 візуалізували за допомогою Pseudoviewer 3.0 [Byun & Kyungsook, 2006].
4.3 Зведення даних та обговорення
На основі аналізу літератури у наземних біотопах
Антарктиди виявлено 2 види Coleochlamys-подібних водоростей. Жоден із
видів цього типу не був секвенований. Антарктида - це екологічна зона, яка
зазнала найменшого антропогенного впливу, що пов’язано з природніми умовами та
із низкою міжнародних угод щодо природокористування та технічного навантаження.
Це дає змогу вирішувати проблеми збереження біорізноманіття.
За допомогою програмного пакету BioEdit нами було
встановлено, що 2 секвеновані послідовності видів Coleochlamys-подібних
водоростей, які відрізняються за морфологією є ідентичними. Це дало змогу
припустити існування групи Coleochlamys-подібних водоростей із
двома морфотипами одного виду: перший - подібний до Coleochlamys oleifera, другий тип -
перехідний від Myrmecia до Coleochlamys.
BLAST-ідентифікація сіквенованих представників Coleochlamys-подібних
водоростей ACKU 822-08 показала, що дана група водоростей генетично більш близька
до Trebouxiophyceae, і не виявляє
жодних співпадінь з фрагментами послідовностей класу Chlorophyceae, до якого зараз
належать ці водорості. Це потребує перегляду таксономічного положення
досліджуваної групи водоростей.
За допомогою BLAST-ідентифікації
сіквенованих представників по відношеню до клас-специфічного мотиву А. Колеман
[Coleman, 2007] було
виявлено, що Coleochlamys-подібні водорості найбільші подібні по відношеню
до Trebouxiophyceae. Так наприклад MTTGGTARG - узагальнений
клас-специфічний мотив для Trebouxiophyceae. Відносно нього
порівняня ACKU 822 Coleochlamys по відношеню до Chlorella vulgaris, як видно із
таблиці 4.5 в мотиві існує 2 неспівпадіння, що є недостатньо значимою відміною.
Таблиця 4.5. Порівняння Клас - специфічний мотив Trebouxiophyceae до Chlorella vulgaris
Клас -
специфічний мотив Trebouxiophyceae ACKU 822 зразок 66 [Coleman, 2007]
A
T
T
G
G
T A
G
Частина
нуклеотидної послідовності Chlorella vulgaris
C
T
T
G
G
T
A
G
G
Також нами було побудовано варіанти (a, b, c, d на Рис. 4.10) вторинних
структур другої спіралі H2 ACKU 822 Coleochlamys. Реконструкції дали змогу оцінити
консервативні та варіабельні частини кожного варіанту.
За допомогою реконструкції вторинних структур
регіонів ITS1 та ITS2 було побудовано консенсусну структуру, за якою можна
зробити припущення, що Coleochlamys-подібні водрості мають
свій клас-специфічний мотив - у рамках родини Trebouxiophyceae - TTGGTA.
Висновки
1. На основі аналізу літературних даних
встановлено, що у наземних біотопах Антарктиди виявлено 2 види
Coleochlamys-подібних водоростей з різними фенотипами., жодний з яких не був
підтверджений молекулярно-генетичними методами.
2. Обидва секвеновані штами - ACKU №822-08,
морфологічно близький як до Myrmecia, так і до Coleochlamys, та
ACKU №836-08, морфологічно близький лише до Coleochlamys, за
послідовністю ITS2 виявились ідентичними, незважаючи на наявні фенотипні
відміни вегетативних клітин.
3. BLAST-пошук показав, що
досліджені штами за послідовністю ITS2 найбільш схожі до Parachlorella sp. CCAP 206/1 із кодом
доступу NCBI - GQ 502287.1 з класу Trebouxiophyceae, але не ідентичні до
жодної з депонованих в NCBI послідовностей.
. Аналіз вторинної структури ITS2,
зокрема, за консервативним мотивом 3-ї спіралі (т.зв. мотив Колеман),
підтвердив належність секвенованих штамів до Trebouxiophyceae (мотив TTGGTA) та доцільність
виділення Coleochlamys-подібних водоростей в окрему групу в межах цього
класу.
Список літератури
1. Abbott, S.B. and Benninghoff, W.S.
(1990) Orientation of environmental change studies to the conservation of
Antarctic ecosystems. In Antarctic Ecosystems: Ecological Change and
Conservation (K.R. Kerry and G. Hempel, eds) pp. 394-403. Berlin: Springer
2. Akiyama M. On some Antarctic
terrestrial and subterranean from the Ongul Island, Antarctica // Antarct. Rec.
Tokyo.
- 1967, №32. - P. 71-77.
3. Akiyama M. A list of terrestrial
and subterranean algae from the Ongul Islands, Antarctica. // Antarctic Record. - 1968, №32. - P. 71-77.
. Akiyama M. Some ecological and
taxonomical observations on the colored snow algae found in Rumpa and
Skarvsnes, Antarctica. // Mem. Natl. Inst. Polar Res. Spec. Issue. - 1979, №11. - P. 27-34.
5. Algal Culturing Techniques // Andersen R.A.: Academic
Press is an imprint of Elsevier, 2005. - 589 рр.
. Broady, P.A. (1976) Six new
species of terrestrial algae from Signy Island, South Orkney Islands,
. Broady, P.A. (1977) The Signy
Island terrestrial reference sites: VII. The ecology of the algae of Site 1, a
moss turf. Br. Antarct. Surv. Bull. 45, 47-62.
. Broady, P.A. (1979a) The
terrestrial algae of Signy Island, South Orkney Islands. Br. Antarct. Surv.
Sci. Rep. 98, 117.
. Broady, P.A. (1979b) A
preliminary survey of the terrestrial algae of the Antarctic Peninsula and
South Georgia. Br. Antarct. Surv. Bull. 48, 47-70.
. Broady, P.A. (1979c) Quantitative
studies on the terrestrial algae of Signy Island, South Orkne Islands. Br.
Antarct. Surv. Bull. 47, 31-41.
. Broady, P.A. (1979d) The Signy
Island terrestrial reference sites: IX. The ecology of the algae uf Site 2, a
moss carpet. Br. Antatz't. Surv. Bull. 47,13-29.
. Broady, P.A. (1979e) Wind
dispersal of terrestrial algae at Signy Island, South Orkney Islands. Bp:
Antarct. Surv. Bull. 48, 99-102.
. Broady, P.A. (t982a) New records
of chlorophycean microalgae cultured from Antarctic terrestrial habitats. Nova
Hedwigia 36, 445-84.
. Broady, P.A. (1982b) Ecology of
non-marine algae at Mawson Rock, Antarctica. Nova Hedwigia 36, 209-28.
. Broady, P.A. (1983) The Antarctic
distribution and ecology of the terrestrial, chlorophytan alga Prasiococcus
calcarius (Boye Petersen) Vischer. Polar Biol. 1, 211-6.
. Broady, P.A. (1984) Taxonomic and
ecological investigations of algae on steam-warmed soil on Mt. Erebus, Ross
Island, Antarctica. Phycologia 27, 257-71.
. Broady, P.A. (1986) Ecology and
taxonomy of the terrestrial algae of the Vestfold Hills. In Antarctic Oasis (J.
Pickard, ed.) pp, 165-202. Sydney: Academic Press.
. Broady, P.A. (1987a) A floristic
survey of algae at four locations in northern Victoria Land. N.Z. Antarct.
Record 7, (3) 8-19.
. Broady, P.A. (1987b) The
morphology, distribution and ecology of Pseudococcomyxa simplex (Mainx) Fott
(Chlorophyta, Chlorellaceae), a widespread terrestrial Antarctic alga. Polar
Biol.25-30.
. Broady, P.A. (1989a) Survey of
algae and other terrestrial biota at Edward VII Peninsula, Marie Byrd Land.
Antaret. Sci. 1, 215-24.
. Broady P.A. (1989b) The
distribution of Prasiola calophylla (Carmich.) Menegh. (Chlorophyta) in
Antarctic freshwater and terrestrial habitats. Antarct. Sci. 1, 109-18.
. Broady, P.A. (1989c) Broadscale
patterns in the distribution of aquatic and terrestrial vegetation at three
ice-free regions on Ross Island, Antarctica. Hydrobiol. 172, 77-95.
. Broady, P.A. (1993) Soils heated
by volcanism. In Antarctic Microbiology (E.I. Friedmann, ed.) pp. 413-32. New
York: Wiley-Liss.
. Broady, P.A. and Ingerfield, M.
(1993) Three new species and a new record of chaetophoracean (Chlorophyta)
algae from terrestrial habitats in Antarctica. Eur J. Phycol. 28, 25-31.
. Broady, P.A. and Kibblewhite,
A.L. (1991) Morphological characterisation of Oscillatoriales (Cyanobacteria)
from Ross Island and southern Victoria Land, Antarctica. Antarct. Sci. 3,
35-45.
. Broady, P.A. and Smith, R.A.
(1994) A preliminary investigation of the diversity, survivability and
dispersal of algae introduced into Antarctica by human activity. Proc. NIPR
Symp. Polar Biol.7, 185-97.
. Broady, P.A., Garrick, R. and
Anderson, G.M. (1984) Culture studies on the morphology of ten strains of
Antarctic Oscillatoriaceae (Cyanobacteria). Polar Biol. 2, 233-44.
. Broady, P.A., Given, D.,
Greenfield, L.G. and Thompson, K. (1987) The biota and environment of fumaroles
on Mt. Melbourne, northern Victoria Land. Polar Biol. 7, 97-113.
. Cameron R.E. Ecology of
blue-green algae in antarctic soils // First Int. Symp. on Taxonomy and Biology
of Blue-Green Algae. Centre for Advanced Study in Botany, Univ. of Madras.
1970.
30. Cameron R.E. Farthest south algae
and associated bacteria. // Phycologia. - 1972. - vol. 11, №2. - P. 133-139.
. Cavacini P. Soil algae from
northen Victoria Land (Antarctica) // Polar Biosci. - 2001, №14. - P.
45-60.
32. Corté A. Estudio bioecologica de la flora nival de
Cabo Primavera (Costa de Danco, Peninsula Antarctica) Contribution del Institutio
Antárctico // Buenos Aires:
Institutio Antárctico
Argentino. - 1966, №99. - Р. 16.
. Curl H. Becker P. Terrestrial
cryophilic algae of the Antarctic Peninsula // Ant. J. US. - 1970, №5. - Р. 121.
34. Coleman A.W. (2003) ITS2 is a
double-edged tool for eukaryote evolutionary comparisons. Trends in
Genetics.
. Coleman A.W. (2007).
Pan-eukaryote ITS2 homologies revealed by RNA secondary structure. Nucleic
Acids Research.
. Coleman A.W., Mai J.C. (1997).
Ribosomal DNA ITS-1 and ITS-2 Sequence Comparisons as a Tool for Predicting
Genetic Relatedness. J Mol Evol.
. Coleman AW, Preparata RM,
Mehrotra B, Mai J.C. (1998). Derivation of the secondary structure of the ITS-1
transcript in Volvocales and its taxonomic correlations. Protist.
38. Coleman, A.W. (2009). Is there a
molecular key to the level of ‘ ‘biological species» in eukaryotes? A DNA
guide. Mol. Phylogenet. Evol.
. Curl H. Becker P. Terrestrial
cryophilic algae of the Antarctic Peninsula // Ant. J. US. - 1970, №5. - Р. 121.
. Davey M.C., Rothery P. Primary
colonization by microalgae in relation to spatial variation in edaphic factors
on Antarctic fellfield soils // J. Ecol. - 1993, №81. - Р. 335-343.
. Ettl, Gärtner Syllabus der Boden-, Luft - und Flechtenalgen. - Jena: G. Fisher, 1995 - 721 рp.
42. Ettl. H. Chlorophyta I:
Phytomonadina // Suвwasserflora von Mitteleurope, Jena: G. Fisher, 1983 - 723 рp.
43. Gain L. La flore algologique des
regions antarcticues et subantarcticues. Deuxieme Expedition Antarctique
Francaise (1908-1910), commandee par le Dr Jean Charcot. - Masson et Cie. Paris, 1912 - 218 pp
44. Gottschling M. and Plotner J.
(2004). Secondary structure models of the nuclear internal transcribed spacer
regions and 5.8S rRNA in Calciodinelloideae (Peridiniaceae) and other
dinoflagellates. Nucleic Acids Research. 32 (1): 307-315.
45. Gottschling M., Hilger H.H., Wolf M.,
and Diane N. (2001). Secondary Structure of the ITS1 Transcript and its
Application in a Reconstruction of the Phylogeny of Boraginales. Plant biol.
3: 629-636.
. Hall T.A. Bio-Edit: a
user-friendly biological sequence alignment editor and analysis program for
Windows 95/97/NT // Nucl. Acids. Symp. - 1999
47. Kol E. Alage from the Antarctica //
Annls hist.-nat. Mus. natn. hung. - 1968, №60. - Р. 71-77.
48. Kol E. Green snow and ice from
Antarctica // Ann. Hist. Nat. Mus. Natl. Hung. - 1971, №63. - Р. 51-56.
49. K Leliaert2, Elie
Verleyen1, Pieter Vanormelingen1, Katleen Van der Gucht1, Dominic A. Hodgson3,
Koen Sabbe1 and Wim Vyverman1 2009
50. ol E. Snow algae from the Signy
Island (South Orkney Islands, Antarctica) // Annales
Historico-Naturales 52. Mataloni G, Pose M. Non-marine
algae from islands near Cierva Point Antarctic Peninsula // Cryptogame Algol. -
2001, vol. 22, №1. - Р. 44-64.
53. Mataloni G., Tell G., Winn-Williams
D.D. Structure of soil algal communities from Cierva Point (Antarctic
Peninsula) // Polar Biol. - 2000, №23. - Р. 205-211.
54. Ohtani S., Kanda H. Epiphytic algae
on the moss community of Grimmia lawiana around Syowa Station,
Antarctica // Proc. NIPR Symp. Polar Biol. - 1987. - Р. 255-264.
55. Olech M., Mroziňska T., Massalski A. Algae of Shetland Islands (West
Antarctica) // Wyprawy Geografiezne na Spitsbergen, IV Zjazd Geomorfologow
Polskich, UMCS, Lublin 3-6 czerwca. 1998. - Р. 225-236
. Ohtani, S. (1986) Epiphytic algae
on mosses in the vicinity of Syowa Station, Antarctica. Mem. Nail Inst. Polar
Res. Special Issue, 44, 209-19.
. Ohtani, S. and Kanda, H. (1987)
Epiphytic algae on the moss community of Grirnmia lawiana around Syowa Station,
Antarctica. Proc. NIRP Syrup. Polar Biol. 1, 255-64.
. Ohtani, S., Akiyama, M. and
Kanda, H. (1991) Analysis of Antarctic soil algae by the direct observation
using the contact slide method. Antarc. Rec. (Tokyo) 35, 285-95.Pankow, H.,
Haendel, D. and Richter, W. (1991) Die Algenflora der Schirmacheroasc (Ostantarktika).
Beih. z. Nova Hedwigia, 103, 197.
59. Schussnig, B. (1955). Eine neue
Protococcalen-Gattung. Österreichische
Botanische Zeitschrift 102: 444-459 Rhopalocystis oleifera Schussnig 1955: 444, figs
1-3
= Coleochlamys
oleifera (Schussnig) Fott
. Russell, S. and Smith, R.I.L.
(1993) New significance for Antarctic biological collections and taxonomic
research. Proc. N1PR Syrup. Polar Biol. 6, 152~5.Walton, D.W.H. (1984) The
terrestrial environment. In Antarctic Ecology, vol. 1 (R.M. Laws, ed.)
. Wever 2009 Hidden levels of
phylodiversity in Antarctic green algae: further evidence for the existence of
glacial refugia Aaike De Wever1,*, Frederik pp. 1-60. London: Academic Press
. ZUKER M. (2003). Mfold web server
for nucleic acid folding and hybridization prediction. Nucleic Acids Res.
. Андреева В.М. Почвенные и
аэрофильные зеленые водорости (Chlorophyta: Tetrasporales, Chlorococcales, Chlorosarcinales). - Спб.: Наука,
1998.
. Вассер С.П., Кондратьева Н.В.,
Масюк Н.П. и др. Водоросли. Справочник, Киев: Наук. думка, 1989. - 608 с.
. Воскресенский П.И. Техника лабораторних
работ Москва: «Химия», 1969. - 725 с.
. Коршиков О.А. Підклас Протококові
(Protococcineae) // Визначник прісноводних водоростей Укр. РСР. Вип. 5. - К.:
Вид-во АН УРСР, 1953
. Костіков І.Ю Романенко П.О.,
Демченко Е.М., Дарієнко Т.М., Михайлюк Т.І., Рибчинський О.В., Солоненко А.М.
Водорості ґрунтів України (історія та методи дослідження, система, конспект
флори). - К.: Фітосоціоцентр, 2001. - 299 с.
. Макгонигал, Д., Вудворт, Л.
Антарктика. Голубой континент. - Москва, 2004. - 224 с.
. Масюк Н.П., Костіков І. Ю.
Водорості в системі органічного світу. - Київ: Академперіодика, 2002. - 178 с.
. Мишустин, Е.Н, Емцев В.Т.
Микробиология. - М., 1987. - 358 с.
. Саут Р., Уиттик А. Основи
Альгології Москва: «Мир», 1990. - 599
. Ситник К.М. XVII Міжнародний
ботанічний конгрес та перспективи розвитку української ботаніки // Укр. ботан.
журн. - 2005. - Т.62, №4. - С. 451-454
73. Топачевський О.В. Короткий визначник прісноводних водоростей УРСР Київ,
1955
. Шлегель Г. Общая микробиология. -
М.: Мир, 1987. - 568 с.