Материал: 74-79
Вопрос 74 Биосинтез жирных кислот. Основные стадии процесса. Регуляция обмена жирных кислот.
Большая часть заменимых жирных кислот синтезируется в печени,
в меньшей степени – жировой ткани и лактирующей молочной железе.
Источник углерода для синтеза ацетил-КоА, образующийся при распаде
глюкозы в абсорбтивном периоде. т.о., избыток углеводов, поступающих в организм, трансформируется в жирные кислоты, а затем в жиры.
Перенос ацетил-КоА из митохондрий в цитозоль: внутренняя мембрана
митохондрий непроницаема для ацетил-КоА, поэтому в матриксе митохондрий а
цетил-КоА конденсируется с оксалоацетатом с образованием цитрата при участии цитратсинтазы:
Ацетил-КоА + Оксалоацетат → Цитрат + НS-КоА.
Затем транслоказа переносит цитрат в цитоплазму
Поступающий из митохондрий цитрат в цитозоле расщепляется цитрат-лиазой
Цитрат + НSКоА + АТФ → Ацетил-КоА + АДФ + Рi + Оксалоацетат
Ацетил-КоА в цитоплазме служит исходным субстратом для синтеза жирных кислот, а оксалоацетат в цитозоле подвергается превращениям:
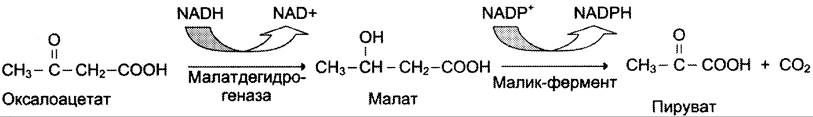
1. Первая реакция синтеза ЖК – превращение ацетил-КоА в малонил-КоА
под действием ацетил-КоА-карбоксилазы, которая содержит биотин
В первой стадии СO2 ковалентно связывается с биотином за счёт энергии АТФ
Во второй стадии СОО- переносится на ацетил-КоА с образованием малонил-КоА
Активность фермента ацетил-КоА-карбоксилазы определяет скорость всех последующих реакций синтеза ЖК – это регуляторная реакция
2. После образования малонил-КоА синтез ЖК продолжается на
мультиферментном комплексе – синтазе жирных кислот (пальмитоилсинтетазе).
Пальмитоилсинтаза состоит из 2 идентичных протомеров, каждый из которых
имеет доменное строение и, соответственно, 7 центров, обладающих разными каталитическими активностями. + ацилпереносящий белок (АПБ)
Этот комплекс последовательно удлиняет радикал жирной кислоты на 2
углеродных атома, донором которых служит малонил-КоА. Конечный продукт работы комплекса – пальмитиновая к-та (2 молекулы, т.к каждый протомер синтезирует по 1)
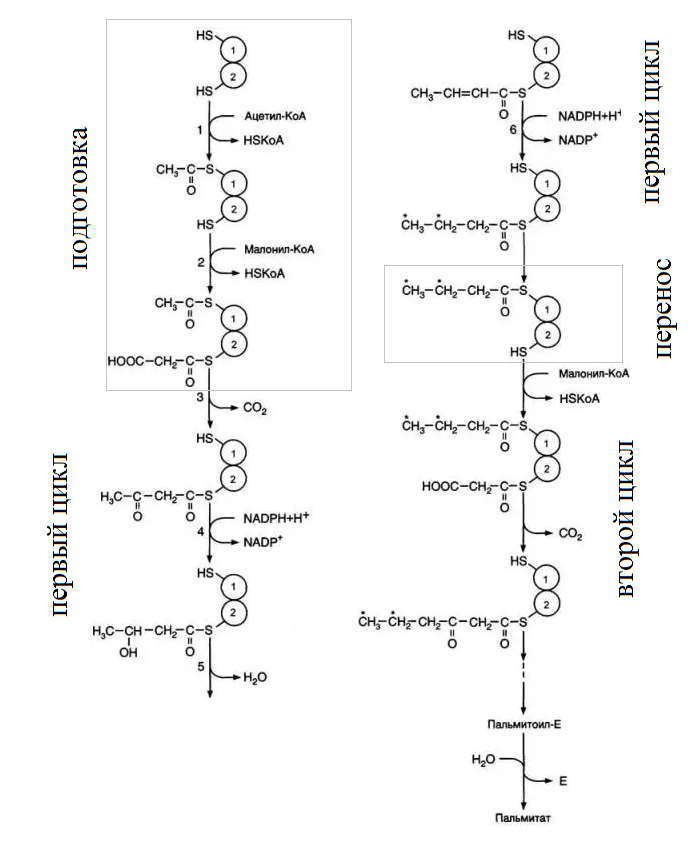
Подготовка синтазы ЖК к синтезу: сначала происходит перенос ацетильной
группы ацетил-КоА на тиоловую группу цистеина ацетилтрансацилазным центром.
Затем от малонил-КоА остаток малонила переносится на сульфгидрильную группу
ацилпереносящего белка малонилтрансацилазным центром. После этого комплекс готов к первому циклу синтеза.
Первый цикл синтеза ЖК: ацетильная группа конденсируется с остатком
малонила по месту отделившегося СO2. Реакция катализируется кетоацилсинтазным центром. Образовавшийся радикал ацетоацетила последовательно восстанавливается
кетоацил-редуктазой, затем дегидратируется и опять восстанавливается еноилредуктазой – активными центрами комплекса.
В рез-те первого цикла реакций образуется радикал бутирила, связанный с
субъединицей синтазы жирных кислот.
Перед вторым циклом радикал бутирила переносится из позиции 2 в позицию 1
(где находился ацетил в начале первого цикла реакций).
Второй цикл синтеза ЖК: остаток бутирила подвергается тем же превращениям и
удлиняется на 2 углеродных атома, происходящих из малонил-КоА.
Аналогичные циклы реакций повторяются до тех пор, пока не образуется радикал
пальмитиновой кислоты, который под действием тиоэстеразного центра гидролитически отделяется от ферментного комплекса, превращаясь в свободную пальмитиновую кислоту
Регуляторный фермент синтеза ЖК: ацетил-КоА-карбоксилаза, кот регулируется:
1. Ассоциация/диссоциация комплексов субъединиц фермента. В неактивной
форме ацетил-КоА-карбоксилаза представляет собой отдельные комплексы, каждый из которых состоит из 4 субъединиц.
Активатор фермента: цитрат. Он стимулирует объединение комплексов, в
результате чего активность фермента увеличивается.
Ингибитор: пальмитоил-КоА. Он вызывает диссоциацию комплекса и
снижение активности фермента.
2. Фосфорилирование/дефосфорилирование ацетил-КоА-карбоксилазы.
В постабсорбтивном состоянии или при физической работе глюкагон или
адреналин через аденилатциклазную систему активируют протеинкиназу А и стимулируют фосфорилирование субъединиц ацетил-КоА карбоксилазы. Фосфорилированный фермент неактивен, и синтез останавливается.
В абсорбтивный период инсулин активирует фосфатазу, и ацетил-КоА
карбоксилаза переходит в дефосфорилированное состояние. Затем под действием цитрата происходит полимеризация протомеров фермента, и он становится активным.
Кроме активации фермента, цитрат выполняет и другую функцию в синтезе ЖК:
Он накапливается в митохондриях кл. печени в абсорбтивный период, в его составе остаток ацетила транспортируется в цитозоль.
3. Индукция синтеза ферментов. Длительное потребление богатой углеводами и бедной жирами пищи приводит к увеличению секреции инсулина, который стимулирует индукцию синтеза ферментов: ацетил-КоА-карбоксилазы, синтазы жирных кислот, цитратлиазы, изоцитратдегидрогеназы.
Следовательно, избыточное потребление углеводов приводит к ускорению
превращения продуктов катаболизма глюкозы в жиры. Голодание или богатая жирами пища приводит к снижению синтеза ферментов и жиров.
Вопрос 75 Кетоновые тела, биосинтез и использование в качестве источников энергии. Причины развития кетонемии и кетонурии при голодании и сахарном диабете.
При голодании, длит. физической работе ЖК используются многими тканями как
источник энергии (кроме ГМ и клеток НС). В печени часть ЖК превращается в кетоновые тела, которые уже могут использоваться ГМ, нервной тканью, мышцами
К кетоновым телам относят:
β-гидроксибутират (окисляется в тканях, обеспечивая синтез АТФ)
Ацетоацетат (так же)
Ацетон (образуется только при высоких концентрациях кетоновых тел в крови,
выделяясь с мочой, позволяет организму избавляться от избытка кетоновых тел)
СИНТЕЗ КЕТОНОВЫХ ТЕЛ В МИТОХОНДРИЯХ ГЕПАТОЦТОВ
При низком соотношении инсулин/глюкагон в крови в жировой ткани происходит
распад жиров. ЖК поступают в печень в большем количестве, чем в норме, поэтому увеличивается скорость β-окисления. Скорость реакций ЦТК в этих условиях снижена, так как оксалоацетат используется для глюконеогенеза.
В результате скорость образования ацетил-КоА превышает способность ЦТК
окислять его. Ацетил-КоА накапливается в митохондриях печени и используется для синтеза кетоновых тел (он проиходит только в печени)
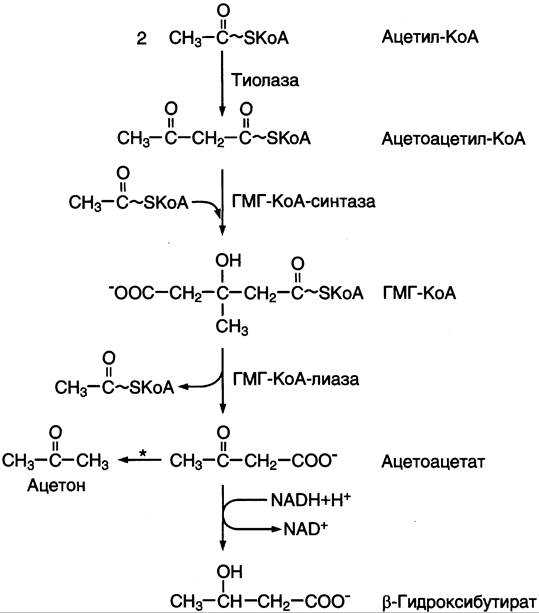
1. Сначала взаимодействуют 2 мо под действиемлекулы ацетил-КоА под действием
тиолазы и образуют ацето-ацетил-КоА, с которой под действием ГМГ-КоА-синтазы взаимодействует третья молекула ацетил-КоА и образуется (ГМГ-КоА)
3-гидроксии-3метилглутарил-КоА
2. ГМГ-лиаза расщепляет ГМГ-КоА на ацетил-КоА и свободный ацетоацетат,
который может выделяться в кровь
3. В клетках печени при активном β-окислении создаётся высокая конц. NADH, что
способствует превращению большей части ацетоацетата в β-гидроксибутират (поэтому оно осн. кетоновое тело).
При голодании для многих тканей жирные кислоты и кетоновые тела становятся
основными топливными молекулами. Глюкоза используется в первую очередь нервной тканью и эритроцитами.
4. При высокой концентрации ацетоацетата часть его неферментативно
декарбоксилируется, превращаясь в ацетон, кот. не утилизируется тканями, но выделяется с выдыхаемым воздухом и мочой.
Таким путём организм удаляет избыточное количество кетоновых тел, которые не
успевают окисляться, но, являясь водорастворимыми кислотами, вызывают ацидоз.
Синтез кетоновых тел в гепатоцитах
Регуляторный фермент – ГМГ-КоА-синтаза, ингибируется свободным КоА.
Активируется при повышении конц. ЖК.
ИСПОЛЬЗОВАНИЕ КЕТОНОВЫХ ТЕЛ В КАЧЕСТВЕ ИСТОЧНИКОВ ЭНЕРГИИ
При длит. голодании кетоновые тела становятся основным источником
энергии для скелетных мышц, сердца и почек. Так сохраняется глюкоза сохраняется для окисления в мозге и эритроцитах. Уже через 2-3 дня после начала голодания конц. кетоновых тел в крови достаточна для того, чтобы они проходили в клетки ГМ и окислялись, снижая его потребности в глюкозе.
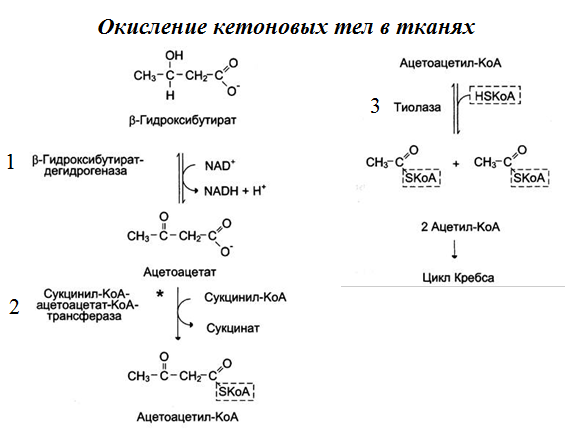
β-Гидроксибутират, попадая в клетки, дегидрируется NАD-зависимой
дегидрогеназой и превращается в ацетоацетат. Ацетоацетат активируется, взаимодействуя с сукцинил-КоА – донором КоА под действием сукцинил-КоА-ацетоацетат-КоА-трансферазой:
Ацетоацетат + Сукцинил-КоА → Ацетоацетил-КоА + Сукцинат
Этот фермент не синтезируется в печени, поэтому печень не использует кетоновые
тела как источники энергии, а производит их «на экспорт».
Кетоновые тела – хорошие топливные молекулы; окисление одной молекулы β-
гидроксибутирата до СO2 и Н2O обеспечивает синтез 27 молекул АТФ.
Кетоацидоз. В норме конц. кетоновых тел в крови составляет 1-3 мг/дл,
но при голодании значительно увеличивается.
Кетонемия – увеличение концентрации кетоновых тел в крови
Кетонурия – выделение кетоновых тел с мочой
Накопление кетоновых тел в организме приводит к кетоацидозу: уменьшению
щелочного резерва (компенсированному ацидозу), а в тяжёлых случаях – к сдвигу рН (некомпенсированному ацидозу), так как кетоновые тела (кроме ацетона) являются водорастворимыми органическими кислотами (рК~3,5), способными к диссоциации:
СН3-СО-СН2-СООН ↔ СН3-СО-СН2-СОО- + Н+
Ацидоз опасен при сахарном диабете, т.к. концентрация кетоновых тел при
этом заболевании может доходить до 400-500 мг/дл. Тяжёлая форма ацидоза – одна из основных причин смерти при сахарном диабете. Накопление протонов в крови нарушает связывание кислорода гемоглобином, влияет на ионизацию функциональных групп белков, нарушая их конформацию и функцию.
Вопрос 76
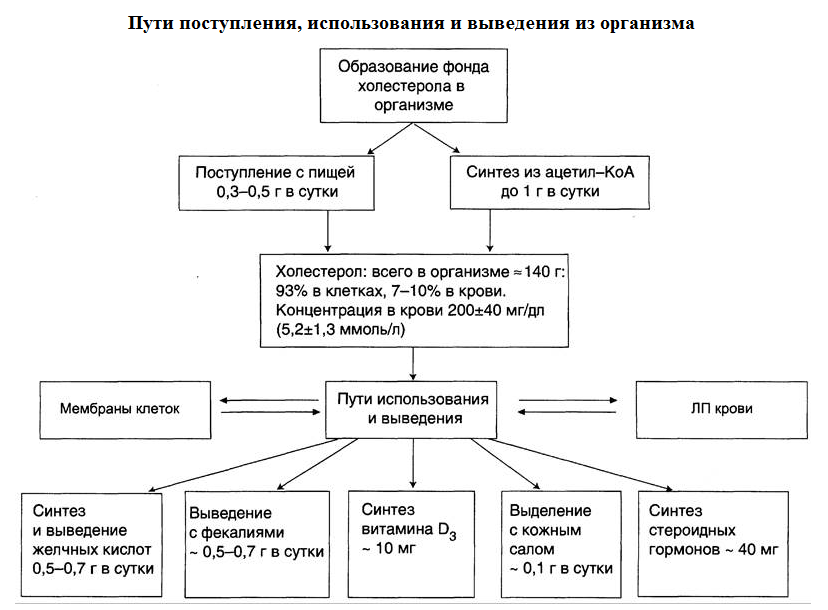
Холестерин. Пути поступления, использования и выведения из организма.
Уровень холестерина в сыворотке крови. Биосинтез холестерина, его этапы.
Регуляция синтеза.
Холестерин – стероид, гидрофобное в-во. Синтезируется в основном в печени
(50%), но также и в тонком кишечнике, коже, коре надпочечников
Функции холестерина:
Входит в состав клеточных мембран,
Является частью растворимых липопротеинов
Служит исходным субстратом в синтезе желчных кислот и стероидных гормонов