Материал: 74-79
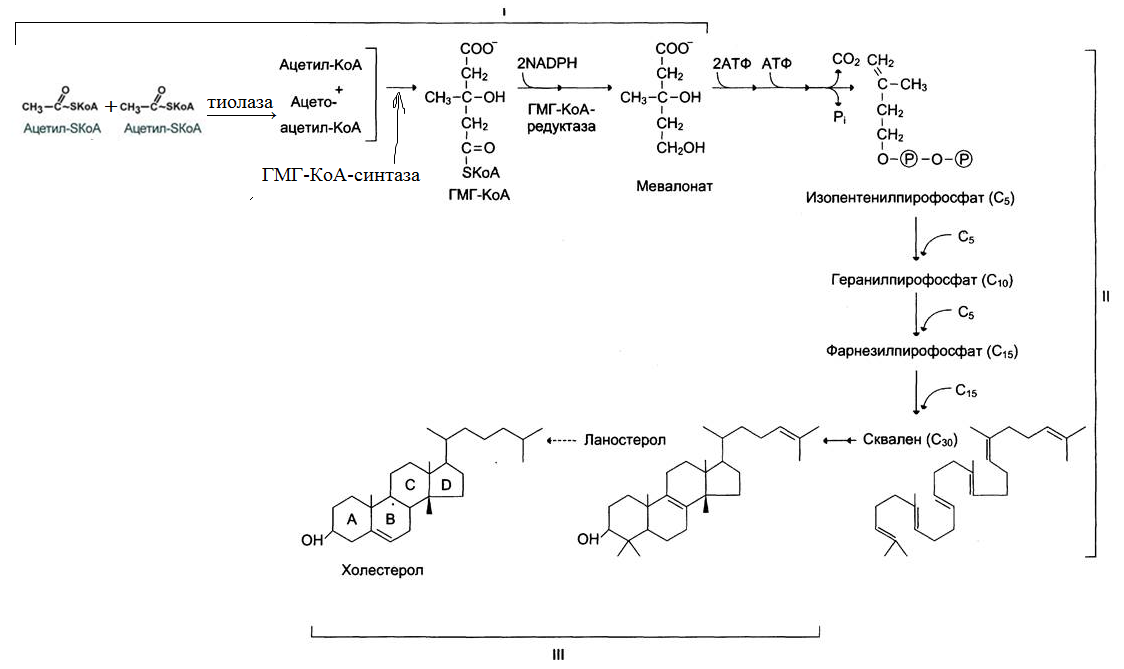
Биосинтез холестерина – сложная последовательность реакций,
происходящая в цитозоле клеток, которую можно разделить на 3 этапа
При биосинтезе затрачивается 18 молекул АТФ и 13 молекул НАДФН.
I этап. Синтез мевалоновой кислоты: 2 молекулы ацетил-КоА конденсируются
ферментом тиолазой с образованием ацетоацетил-КоА.
Фермент гидроксиметилглутарил-КоА-синтаза присоединяет третий ацетильный
остаток с образованием ГМГ-КоА (3-гидрокси-3-метилглутарил-КоА). Эта последовательность реакций сходна с начальными стадиями синтеза кетоновых тел
Под действием ГМГ-КоА-редуктазы происходит восстановление ГМГ-КоА до
мевалоната с использованием 2 молекул NАDРН (это регуляторная реакция)
II этап. Образование сквалена: мевалонат превращается в пятиуглеродную
изопреноидную структуру – изопентенил- пирофосфат. Продукт конденсации 2 изопреновых единиц – геранилпирофосфат.
Присоединение ещё 1 изопреновой единицы приводит к образованию
Фарнезилпирофосфата, две молекулы кот. конденсируются с образованием сквалена –УВ из 30 атомов углерода
III этап. Образование холестерола: сквален через стадию образования эпоксида
ферментом циклазой превращается в молекулу ланостерола, содержащую 4 конденсированных цикла и 30 атомов углерода. Далее происходит 20 последовательных р., превращающих ланостерол в холестерол.
Этерификация холстерола: в некот. тканях гидроксильная гр. холестерода
этерифицируется с образованием эфиров холетсерола (они более гидрофобны) под действием ацилКоА: холестеролацилтрансферазы
Регуляция синтеза холестерола:
Регуляторным ферментом является ГМГ-КоА-редуктаза.
1. Фосфорилирование/дефосфорилирование: при увеличении соотношения
инсулин/глюкагон этот фермент дефосфорилируется, переходя в активное состояние. Действие инсулина осуществляется через 2 фермента:
Фoфосфатаза киназы ГМГ-КоА-редуктазы, кот. превращает киназу в
дефософорилированное неактивное состояние;
Фoфосфатаза ГМГ-КоА-редуктазы: превращает ГМГ-коА-редуктазц в
дефосфорилированно активное состояние.
Результат: образование дефосфорилированной активной формы ГМГ-КоА-редуктазы.
Абсорбтивный период: синтез холестерола увеличивается.
В этот период увеличивается и доступность исходного субстрата для синтеза холестерола – ацетил-КоА (в результате приема пищи, содержащей углеводы и жиры, так как ацетил-КоА образуется при распаде глюкозы и жирных кислот).
Постабсорбтивный период: синтез холестерола ингибируется.
Глюкагон через протеинкиназу А стимулирует фосфорилирование ГМГ-КоА-редуктазы, переводя ее в неактивное состояние.
2. Ингибирование синтеза ГМГ-редуктазы: конечный продукт метаболического
пути (холестерол) снижает скорость транскрипции гена ГМГ-КоА-редуктазы, подавляя таким образом собственный синтез.
В печени активно идёт синтез жёлчных кислот из холестерола, поэтому и они
(как конечные продукты синтеза) подавляют активность гена ГМГ-КоА-редуктазы
Вопрос 77
Роль липопротеинов низкой и высокой плотности (ЛПНП и ЛПВП) в обмене
холестерина. Биохимические основы развития атеросклероза. Количественное
определение общего холестерина в сыворотке крови.
Клиническое значение определения.
Липопротеины низкой плотности (ЛПНП) – являются главным переносчиком
холестерина (содержат до 2/3 ХС плазмы крови) от места синтеза к органам-потребителям. Они служат там для синтеза мембран клеток, провитамина D и стероидных гормонов. В лизосомах ЛПНП распадаются и свободный ХС выходит в цитоплазму.
Более 2/3 ЛПНП попадает внутрь клетки при помощи клеточных рецепторов,
остальная часть – нерецепторным путем. Количество поверхностных рецепторов, связывающих ЛПНП, меняется в зависимости от концентрации последних в крови, содержания в них ХС и потребностей клетки в ХС.
Если в гепатоцитах (или других тканях организма) повышается потребность в
ХС, то в клетках компенсаторно возрастает активность рецепторов к ЛПНП. Через них увеличивается утилизация ХС (в первую очередь, из ЛПНП), что приводит к уменьшению содержания ХСЛПНП и снижению транспорта ХС в стенку артерии
Когда же ткани не нуждаются в дополнительных количествах ХС, то
концентрация ЛПНП растет, а активность рецепторов к ЛПНП снижается, а это повышает вероятность переноса в артериальную стенку ЛПНП, где они
легко модифицируются (окисление, гликация и др.), оставаясь в ней и оказывая проатерогенный эффект.
Липопротеины высокой плотности (ЛПВП) – освобождают клетки от ненужного
холестерина, самые плотные и мелкие, по сравнению с ЛПНП содержат больше белка и фосфолипидов и меньше ХС. Синтезируются в печени и тонком кишечнике в виде незрелых предшественников ЛПВП небольшого размера.
В поверхностном слое ЛПВП имеет лецитинхолестеролацилтрансферазу
(ЛХАТ), с помощью этого фермента холестерол, имеющий ОН-гр, выступающую на
поверхности липопротеина, посредством переноса остатка жирной к-ты с лицитина на него, превращается в эфир (холестерид).
Холестерид является гидрофоб. соед., поэтому перемещается в ядро ЛПВП.
Т.о., предшественник ЛПВП нагружается эфирами холестерина, увеличивается в размерах и превращается в частицу сферической формы – зрелый ЛПВП.
Далее он транспортируется в печень, где холестерин используется на синтез
желчных кислот. ЛПВП, благодаря ЛХАТ, забирают холестерин от других липопротеидов и транспортируют его в печень, предотвращая накопление его в клетках.
Атеросклероз – полигенное заболевание, характеризующаяся появлением
атерогенных бляшек на внутренней поверхности сосудистой стенки.
Причина: нарушение баланса между поступлением холестерола с пищей, его
синтезом и выведением из организма. Выведение холестерола ограничено, не превышает 1,2-1,5 г/сут, а поступление с пищей при неправильном питании превышает этот барьер, с возрастом происходит накопление холестерола. Также может быть и генетические дефекты белков и ферментов, участвующих в обмене холестерола. Механизм развития:
Модифицированные ЛПНП поглощаются макрофагами (этот процесс не
регулируется количеством поглощенного ХС, как в случае его поступления в клетки через специфические рецепторы)
Макрофаги перегружаются ХС и превращаются в «пенистые клетки», которые
проникают в субэндотелиальное пространств → формирование липидных пятен или полосок в стенке кровеносных сосудов. На этой стадии эндотелий сосудов может сохранять свою структуру.
При увеличении количества пенистых клеток → повреждение эндотелия.
Повреждение способствует активации тромбоцитов.
Тромбоциты секретируют тромбоксан, который стимулирует агрегацию
тромбоцитов, а также начинают продуцировать тромбоцитарный фактор роста, стимулирующий пролиферацию гладкомышечных клеток, происходит рост бляшки.
Прорастание бляшки фиброзной тканью, клетки под фиброзной оболочкой
некротизируются, а ХС откладывается в межклеточном пространстве. На последних стадиях развития бляшка пропитывается солями кальция и становится очень плотной.
В области бляшки часто образуются тромбы, перекрывающие просвет сосуда, что
приводит к острому нарушению кровообращения в соответствующем участке ткани и развитию инфаркта.
Количественное определение холестерина в сыворотке крови
Метод Илька: холестерин, содержащийся в сыворотке крови, обрабатывается
реактивом Либермана-Бурхарда (смесь уксусного ангидрида, ледяной уксусной кислоты и концентрированной Н2SО4) → холестерин теряет воду и превращается в непредельный углеводород, который с уксусным ангидридом образует зеленое окрашивание. Интенсивность полученной окраски определяется на фотоэлектроколориметре
Клиническое значение определения: ур. холестерина отражает состояние
липидного обмена и может свидетельствовать о различных заболеваниях.
Гиперхолестеринемия отмечается при атеросклерозе, гипертонической болезни,
ишемической болезни сердца, и др. и наиболее документированный фактор риска коронарного атеросклероза.
Гипохолестеринемия возникает при гипертиреозе, голодании,
онкологических заболеваниях.
Вопрос 78
Общая схема источников поступления и путей расходования аминокислот в тканях.
Динамическое состояние белков в организме. Причины необходимости
Постоянного обновления белков организма. «Незаменимые» аминокислоты.
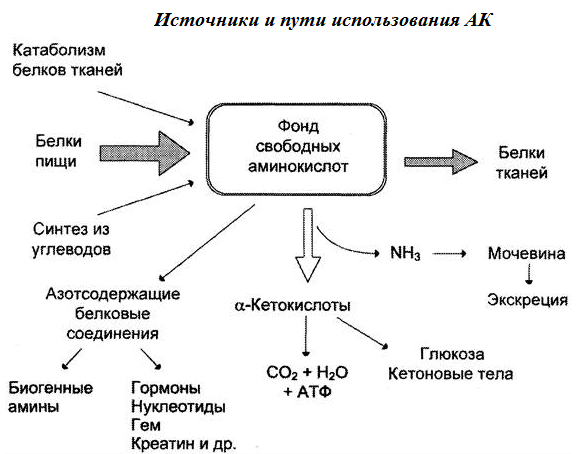
Динамическое состояние белков в организме:
Азотистый баланс – разница между кол-вом азота, поступающего с пищей и
кол-вом выделяемого азота (в виде мочевины и аммонийных солей)
Положительный – азота в организм поступает больше, чем выделяется
(у детей, выздоравливающих после тяжелых болезней)
Отрицательный – азота из организма выделяется больше, чем поступает
(при старении, голодании, болезнях)
Азотистое равновесие – равенство количеств поступающего в организм
азота и выделяемого.
Коэффициент изнашивания – минимальное количество белка, постоянно
распадающегося в организме
Физиологический белковый минимум – мин. количество белков в пище,
необходимое для поддержания азотистого равновесия (30-50 г/сут)
Почти все белки тела, включая структурные белки гемоглобин, белки плазмы и
других биологических жидкостей организма, также подвергаются постепенному распаду и синтезу. Например, более половины белков печени, сыворотки крови и слизистой оболочки кишечника подвергается распаду и ресинтезу в течение 10 дней. Медленнее обновляются белки мышц, кожи и мозга.
Незаменимые аминокислоты – АК, которые не синтезируются в организме, а
получаются с пищей (т.к. их синтез включает много стадий и требует больших затрат энергии, что энергетически невыгодно – эволюционно пропала способность их синтезировать)
К ним относится 8 Аминокислот:
Валин
Изолейцин
Лейцин
Лизин
Метионин
Треонин
Триптофан
Фенилаланин
Для детей незаменимыми также являются аргинин и гистидин (у взрослых они обр. в достаточных количествах)
Вопрос 79
Катаболизм аминокислот. Общие пути распада аминокислот. Трансаминирование
аминокислот. Схема реакций, ферменты, роль витамина В6.
Биологическое значение трансаминирования.
Диагностическое значение определения трансаминаз в сыворотке крови.
Аминокислоты, образующиеся при переваривании белков и поступающие в клетки
тканей, подвергаются катаболизму и анаболизму, а также специфическим реакциям, в результате которых синтезируются биологически активные соединения.
Катаболизм большинства АК начинается с отщепления α-аминогруппы.
Аминокислота теряет аминогруппу в результате двух типов реакций:
Трансаминирования
Дезаминирования
Трансаминирование – реакция переноса α-аминогруппы с аминокислоты на α-
кетокислоту, в результате образуется новые кетокислота и аминокислота.
Фермент: аминотрансферазы
Кофермент: пиридоксальфосфат (активная форма витамина В6).
Пролин, лизин, треонин не подвергаются трансаминированию.
Аминотрансферазы содержат в кач-ве кофермента пиридоксальфосфат
(производное вит. В6). Катализируют реакции, протекающие по механизму «пинг-понг».
В таких реакциях первый продукт должен уйти из АЦ фермента до того, как второй субстрат сможет к нему присоединиться.
Активная форма аминотрансфераз образуется в результате присоединения
ПФ к аминогруппе лизина прочной альдиминной связью. Также между ферментом и ПФ образуются ионные связи с участием заряженных атомов фосфатного остатка и азота в пиридиновом кольце кофермента.
Пиридоксальфосфат служит переносчиком аминогрупп – его альдегидная группа,
может обратимо присоединять различные амины с образованием шиффовых оснований.
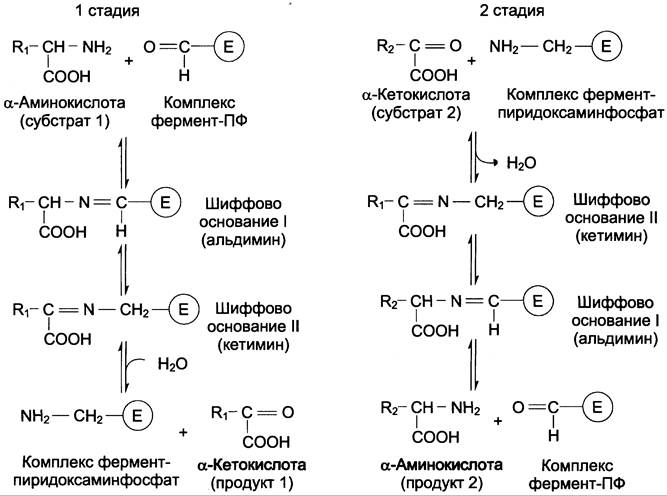
Реакции трансаминирования проходят в 2 стадии:
На первой стадии к ПФ в активном центре фермента с помощью альдиминной
связи присоединяется аминогруппа от первого субстрата – аминокислоты.
Образуются комплекс «фермент-пиридоксаминфосфат» и кетокислота – первый продукт реакции. Этот процесс включает промежуточное образование 2 шиффовых оснований.
На второй стадии комплекс «фермент-пиридоксаминфосфат» соединяется с
кетокислотой (вторым субстратом) и снова через промежуточное образование 2 шиффовых оснований передаёт аминогруппу на кетокислоту.
В результате фермент возвращается в свою нативную форму, и образуется новая
аминокислота – второй продукт реакции.
Специфические аминотрансферазы: АЛТ и АСТ
В тканях содержание некот. АК выше, чем других, поэтому они чаще вступают в
р.трансаминирования (глутамат, аспартат, аланин и соотв. им α-кетокислоты)
Общая схема:
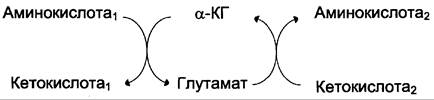
Акцептор аминогруппы при трансаминировании – α-КГ, донор аминогруппы – глутамат
Превращаясь в глутамат, он способен передавать эту аминогруппу любой α-кетокислоте
Наиболее распространёнными ферментами в большинстве тканей млекопитающих
являются АЛТ и ACT