Реферат: Регуляция первичных метаболических процессов
для координации анаболических и катаболических путей. АТФ и АДФ - аллостерические эффекторы, действующие как антагонисты;
для координации параллельно протекающих и взаимосвязанных метаболических путей (например, синтез пуриновых и пиримидиновых нуклеотидов, используемых для синтеза нуклеиновых кислот). Таким образом, конечные продукты одного метаболического пути могут быть аллостерическими эффекторами другого метаболического пути. Аллостерические эффекторы.
Эффектор, вызывающий снижение (ингибирование) активности фермента, называют отрицательным эффектором, или ингибитором. Эффектор, вызьгоаюший повышение (активацию) активности ферментов, называют положительным эффектором, или активатором.
Аллостерическими эффекторами часто служат различные метаболиты. Конечные продукты метаболического пути - часто ингибиторы аллостерических ферментов, а исходные вещества - активаторы. Это так называемая гетеротропная регуляция. Такой вид аллостерической регуляции очень распространён в биологических системах.
Более редкий случай аллостерической регуляции, когда сам субстрат может выступать в качестве положительного эффектора. Такая регуляция называется гомотропной (эффектор и субстрат - одно и то же вещество). Эти ферменты имеют несколько центров связывания для субстрата, которые могут выполнять двойную функцию: каталитическую и регуляторную. Аллостерические ферменты такого типа используются в ситуации, когда субстрат накапливается в избытке и должен быстро преобразоваться в продукт.
Выявить ферменты с аллостерической регуляцией можно, изучая кинетику этих ферментов. Эти ферменты не подчиняются законам Михаэлиса-Ментен, они имеют характерную S-образную кривую зависимости скорости реакции от концентрации субстрата.
Особенности строения и функционирования аллостерических ферментов:
обычно это олигомерные белки, состоящие из нескольких протомеров или имеющие доменное строение;
они имеют аллостерический центр, пространственно удалённый от каталитического активного центра;
эффекторы присоединяются к ферменту нековалентно в аллостерических (регуляторных) центрах;
аллостерические центры, так же, как и каталитические, могут проявлять различную специфичность по отношению к лигандам: она может быть абсолютной и групповой. Некоторые ферменты имеют несколько аллостерических центров, одни из которых специфичны к активаторам, другие - к ингибиторам.
Локализация аллостерических ферментов в метаболическом пути.
Скорость метаболических процессов зависит от
концентрации веществ, использующихся и образующихся в данной цепи реакций.
Такая регуляция представляется логичной, так как при накоплении конечного
продукта он (конечный продукт) может действовать как аллостерический ингибитор
фермента, катализирующего чаще всего начальный этап данного метаболического
пути:
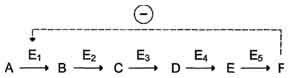
Фермент, катализирующий превращение субстрата А в продукт В, имеет аллостерический центр для отрицательного эффектора, которым служит конечный продукт метаболического пути F. Если концентрация F увеличивается (т.е. вещество F синтезируется быстрее, чем расходуется), ингибируется активность одного из начальных ферментов. Такую регуляцию называют отрицательной обратной связью, или ретроингибировани-ем. Отрицательная обратная связь - часто встречающийся механизм регуляции метаболизма в клетке.
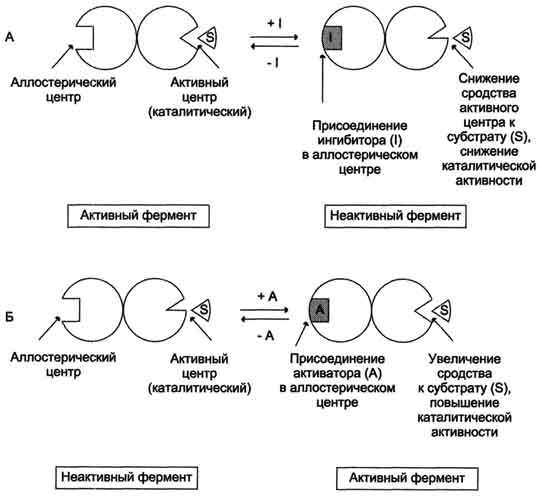
Рис. 3 Схема, поясняющая работу аллостерического
фермента. А - действие отрицательного эффектора (ингибитора); Б - действие
положительного эффектора (активатора).
В центральных метаболических путях исходные
вещества могут быть активаторами ключевых ферментов метаболического пути. Как
правило, при этом аллостерической активации подвергаются ферменты, катализирующие
ключевые реакции заключительных этапов метаболического пути:
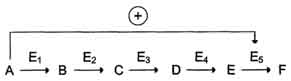
В качестве примера можно рассмотреть принципы
регуляции гликолиза - специфического (начального) пути распада глюкозы (рис.
4). Один из конечных продуктов распада глюкозы - молекула АТФ. При избытке в
клетке АТФ происходит ретро-ингибирование аллостерических ферментов
фосфофруктокиназы и пируваткиназы. При образовании большого количества
фруктозо-1,6-бисфосфата наблюдают аллостерическую активацию фермента
пируваткиназы.
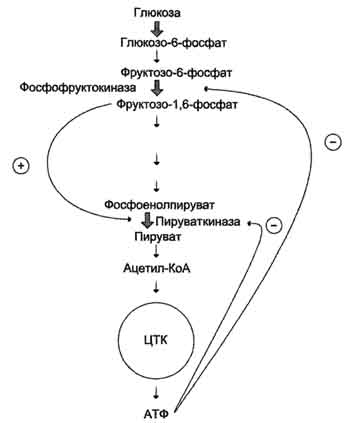
Рис. 4. Схема положительной и отрицательной
регуляции катаболизма глюкозы
Молекула АТФ участвует в ретроингибировании аллостерических ферментов фосфофруктокиназы и пируваткиназы. Фруктозе-1,6-бисфосфат - активатор метаболического пути распада глюкозы. Плюсами отмечена активация, минусами - ингибирование ферментов.
Благодаря такой регуляции осуществляется слаженность протекания метаболического пути распада глюкозы.
Регуляция каталитической активности ферментов белок-белковыми взаимодействиями. Некоторые ферменты изменяют свою каталитическую активность в результате белок-белковых взаимодействий. Рассмотрим 2 механизма активации ферментов с помощью белок-белковых взаимодействий:
активация ферментов в результате присоединения регуляторных белков;
изменение каталитической активности ферментов вследствие ассоциации или диссоциации протомеров фермента.
Активация ферментов в результате присоединения регуляторных белков. Этот тип регуляции можно рассмотреть на примере активации фермента аденилатциклазы, локализованной в плазматической мембране клетки.
Активный центр аденилатциклазы локализован на цитоплазматической стороне плазматической мембраны. Активированная аденилатциклаза катализирует реакцию образования из АТФ циклического 3',5'-АМФ (цАМФ) - вторичного, внутриклеточного посредника действия гормонов (см. схему ниже).
В мембране аденилатциклаза функционирует в комплексе с другими белками:
рецептором гормона, выступающего во внеклеточную среду и взаимодействующего с гормонами;
с G-белком, занимающим промежуточное положение между рецептором и ферментом аденилатциклазой. G-белок - олиго-мерный белок, состоящий из 3 субъединиц - α, β, γ. α-Субъединица имеет центр связывания и расщепления ГТФ. Поэтому этот белок называется ГТФ-связывающим белком, или G-белком;
в результате связывания гормона с рецептором происходит изменение конформа-ции G-белка, уменьшение его сродства к молекуле ГДФ, с которой он связан в отсутствие гормонального сигнала, и увеличение сродства к ГТФ. Присоединение ГТФ вызывает конформационные изменения в G-белке и диссоциацию его на субъединицы: субъединицу α, связанную с ГТФ (α-ГТФ), димер βγ;
α-ГТФ имеет высокое сродство к аденилатциклазе, его присоединение приводит к активации последней, поэтому α-ГТФ - регуляторный белок, а данный механизм активации аденилатциклазы называют активацией ферментов в результате присоединения регуляторных белков (рис. 5).
Регуляция каталитической активности ферментов ассоциацией/диссоциацией протомеров Протеинкиназы - группа ферментов, катализирующих перенос остатка фосфорной кислоты с АТФ на специфические ОН-группы аминокислотных остатков белков (вызывают фосфорилирование белков). Механизмы активации различных протеинкиназ неодинаковы. В качестве примера регуляции каталитической активности ферментов ассоциацией или диссоциацией протомеров можно привести регуляцию активности фермента Протеинкиназы А.
Протеинкиназа А (цАМФ-зависимая) состоит из 4 субъединиц 2 типов: 2 регуляторных (R) и 2 каталитических (С). Такой тетрамер не обладает каталитической активностью. Регуляторные субъединицы имеют участки связывания для циклического 3',5'-АМФ (цАМФ), по 2 на каждую субъединицу. Присоединение 4 молекул цАМФ к 2 регуляторным субъединицам приводит к изменению конфор-мации регуляторных протомеров и к диссоциации тетрамерного комплекса, при этом высвобождаются 2 активные каталитические субъединицы (рис. 2-32). Такой механизм регуляции обратим. Отщепление молекул цАМФ от регуляторных субъединиц приведёт к ассоциации регуляторных и каталитических субъединиц Протеинкиназы А с образованием неактивного комплекса.
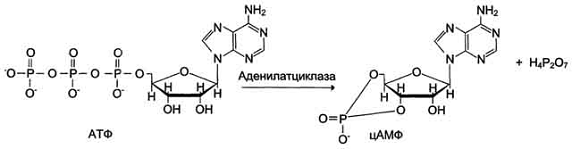
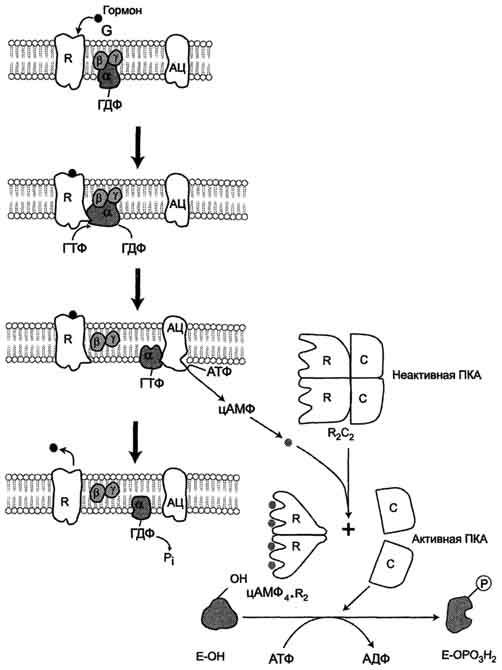
Рис. 5. Регуляция активности аденилатциклазы
Гормон (Г), взаимодействуя с рецептором (R) на поверхности клеток, приводит к уменьшению сродства ГТФ-связывающего белка (G-белка, состоящего из протомеров α, β, γ) к ГТФ и увеличению сродства к ГТФ. Присоединение молекулы ГТФ к активному центру G-белка вызывает диссоциацию комплекса на субъединицы α-ГТФ и димер βγ. Комплекс α-ГТФ активирует аденилатциклазу, что способствует синтезу из АТФ внутриклеточных регуляторных молекул цАМФ. АЦ - аденилатциклаза, ПКА - протеинкиназа А, Рi - Н3РО4.
Регуляция каталитической активности ферментов путём фосфорилирования/дефосфорилирования
В биологических системах часто встречается механизм регуляции активности ферментов с помощью ковалентной модификации аминокислотных остатков. Быстрый и широко распространённый способ химической модификации ферментов - фосфорилирование/дефосфорилирование. Модификации подвергаются ОН-группы фермента. Фос-форилирование осуществляется ферментами протеинкиназами, а дефосфорилирование - фосфопротеинфосфатазами. Присоединение остатка фосфорной кислоты приводит к изменению конформации активного центра и его каталитической активности. При этом результат может быть двояким: одни ферменты при фосфорилировании активируются, другие, напротив, становятся менее активными (рис.6). Изменение активности фермента, вызванное фосфорилированием, обратимо. Отщепление остатка фосфорной кислоты осуществляется ферментами фосфопротеинфосфатазами. Активность протеинкиназ и фосфопротеинфосфатаз регулируется гормонами, что позволяет быстро изменять активность ключевых ферментов метаболических путей в зависимости от условий внешней среды. Антагонистичные по функции гормоны противоположным образом влияют на фосфо-рилирование/дефосфорилирование ферментов, вызывая противоположные эффекты изменения метаболизма клетки. Например, под действием глюкагона (в период между приёмами пищи) в клетках происходит уменьшение синтеза энергетического материала - жира, гликогена и усиление его распада (мобилизация), вызванного фосфо-рилированием ключевых ферментов этих процессов. А под действием инсулина (во время пищеварения), наоборот, активируется синтез гликогена и ингибируется его распад, так как взаимодействие инсулина с рецептором активирует сигнальный путь, приводящий к дефосфорилированию тех же ключевых ферментов.
Регуляция каталитической активности ферментов частичным (ограниченным) протеолизом
Некоторые ферменты, функционирующие вне клеток (в ЖКТ или в плазме крови), синтезируются в виде неактивных предшественников и активируются только в результате гидролиза одной или нескольких определённых пептидных связей, что приводит к отщеплению части белковой молекулы предшественника. В результате в оставшейся части белковой молекулы происходит конформационная перестройка и формируется активный центр фермента.
Рассмотрим механизм частичного протеолиза на примере активации протеолитического фермента трипсина. Трип-синоген, синтезируемый в поджелудочной железе, при пищеварении по протокам поджелудочной железы поступает в двенадцатиперстную кишку, где и активируется путём частичного протеолиза под действием фермента кишечника энтеропептидазы. В результате отщепления гексапептида с N-конца формируется активный центр в оставшейся части молекулы. Следует напомнить, что трипсин относят к семейству "сериновых" протеаз - активный центр фермента содержит функционально важный остаток Сер.
Частичный протеолиз - пример регуляции, когда активность фермента изменяется необратимо. Такие ферменты функционируют, как правило, в течение короткого времени, определяемого временем жизни белковой молекулы. Частичный протеолиз лежит в основе активации протеолитических ферментов, белков свёртывающей системы крови и фибринолиза, белков системы комплемента, а также пептидных гормонов.
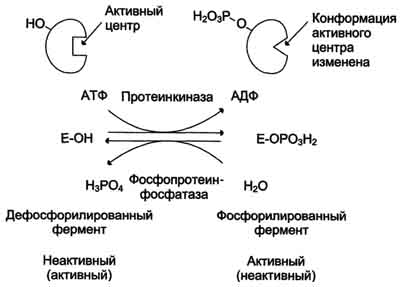
Рис. 6. Регуляция активности ферментов
фосфорилированием/дефосфорилированием
Заключение
В промышленных масштабах ферменты получают из растений, животных и микроорганизмов. Использование последних имеет то преимущество, что позволяет производить ферменты в огромных количествах с помощью стандартных методик ферментации. Кроме того, повысить продуктивность микроорганизмов несравненно легче, чем растений или животных, а применение технологии рекомбинантных ДНК позволяет синтезировать животные ферменты в клетках микроорганизмов. Ферменты, полученные таким путем, используются главным образом в пищевой промышленности и смежных областях. Синтез ферментов в клетках контролируется генетически, и поэтому имеющиеся промышленные микроорганизмы-продуценты были получены в результате направленного изменения генетики микроорганизмов дикого типа.
Литература
метаболизм обмен вещество
1. Микробиология. 2006. Т. 75. № 4. С. 483.
.Вахитов Т.Я., Момот Е.Н., Толпаров Ю.Н. Динамика и функции экзометаболитов в процессе роста периодической культуры Escherichiacoli М-17 // Журн. микробиол 2005а - № 1- С. 16-21.
.Биотехнология: Учеб./ И.В. Тихонов, Е.А. Рубан, Т.Н. Грязнева и др.// Под ред. Е.С. Воронина. - СПб.: ГИОРД, 2005.
.Биотехнология: Учеб. пособие/ Ю.О. Сазыкин, С.Н. Орехов, И.И. Чакалева// А.В. Катлинского. - М.: Издательский центр «Академия», 2006.
.Биотехнология в 8-ми томах/ Под ред. Н.С. Егорова, В.Д. Самуилова. - М.: Высшая школа, 1988.
.Биотехнология: принципы и применения/ Под ред. И. Хиггинса, Д. Беста, Дж. Джонса - М.: Мир, 1988.
.Бекер М.Е. Введение в биотехнологию/ Пер. с латышского. - Рига: Издательство «Звайгэне», 1978.
. Волова Т.Г. Биотехнология// Под ред. И.И. Гительзон. - Новосибирск: Издательство СО РАН, 1999.
.Глик Б., Пастернак Дж. Молекулярная биотехнология. Принципы и применение// Пер. с англ. - М.: Мир, 2002.
.Голубев В.Н., Жиганов И.Н. Пищевая биотехнология. - М.: ДеЛи принт, 2001.
.Евтушенков А.Н., Фомичев Ю.К. Введение в биотехнологию: Курс лекций. - Минск: БГУ, 2002.
.Елинов Н.П. Основы биотехнологии. СПб.: ИФ Наук, 1995.