Курсовая работа (т): Влажность как экологический фактор
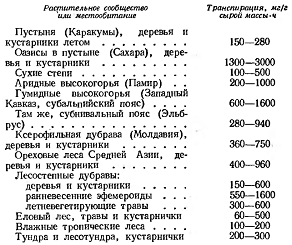
Рисунок 2 - Диапазон наиболее часто
встречающихся величин интенсивности транспирации растений в дневные часы [по
Горышиной Т., 1979]
Снижение содержания воды в клетках при водном
дефиците и сопутствующее обезвоживанию увеличение концентрации ионов в
цитоплазме вызывают различного рода нарушения в структуре и функциях
биополимеров, в частности происходит денатурация белков и подавляется их
ферментативная активность, изменяется структура липидного бислоя мембран и
нарушается их целостность. Деструктивные изменения в мембранах в свою очередь
приводят к нарушению внутриклеточнойкомпартментации веществ и подавлению
электрогенеза. На клеточном уровне водный дефицит выражается в потере тургора.
На уровне целого растения водный дефицит часто проявляется в обращении
градиента водного потенциала в системе почва -корень - побег и ингибировании
роста. Способность растения адекватно отвечать на водный дефицит и выживать в
условиях водного дефицита зависит от эффективности защитных механизмов
растения. Некоторые ответные реакции растения на водный дефицит могут
наблюдаться уже через несколько секунд после начала действия стрессора
[Горышина, 2009, с. 114−119]
.4 Потери воды
В условиях полевой культуры нижние листья окружены преимущественно влажным воздухом в результате транспирации других листьев. Только верхние листья соприкасаются непосредственно с более сухой атмосферой. Кроме того, листья, расположенные ниже верхнего слоя, настолько ограничивают движение воздуха, что между растениями он становится насыщенным влагой. Поэтому нижние листья обладают значительно более низкой интенсивностью транспирации. Молекулы водяных паров диффундируют из насыщенного воздушного слоя в посеве в сухой воздух над посевом, и при относительно ровной поверхности насаждения (как, например, в посевах злаков) эффективной транспирирующей поверхностью становится, по существу, поверхность посева, а не всех отдельных листьев. Тогда безразлично, сколько растений в посеве или сколько листьев на растении; если листовой полог покрывает всю почву, потеря воды будет определяться площадью посева. Такой посев теряет относительно много воды - в дневное время примерно столько же, сколько испаряет открытая водная поверхность, такая, как озеро. Поскольку ночью большинство растений закрывает свои устьица, ограничивая таким образом транспирацию, суточная потеря воды посевом несколько ниже испарения с поверхности открытого водоема. Так как отдача воды каждой культурой составляет обычно определенную долю испарения с открытой водной поверхности, ее можно рассчитать по этому испарению или по количеству солнечного тепла, которое может расходоваться на испарение. Такие данные сейчас обычно можно получить от метеостанций.
В зависимости от биологии данной культуры потери влаги могут варьировать от очень малой величины до количества, превышающего испарение с водной поверхности. Голая поверхность почвы быстро высыхает, ограничивая тем самым потерю воды из нижележащих слоев. Вот почему для сохранения воды в районах с ограниченным количеством осадков и без орошения почву оставляют под паром. Таким образом в почве можно сохранять большую часть годовых осадков. Когда растения начинают расти, корни могут доставать воду из нижележащих слоев почвы. Потери воды затем возрастают до тех пор, пока посев не закроет полностью почву и не сформирует транспирирующую поверхность. Транспирация у рядковой культуры или плодовых деревьев может превышать потерю воды ровным посевом, так как они имеют большую транспирируюшую поверхность, чем площадь земли, на которой растут. Кроме того, между рядками может дуть ветер, перемешивая сухой воздух с влажным. Поэтому норма орошения для рядковых посевов может быть больше, чем для сплошных, и она зависит в основном от общей поверхности посевах [Культиасов, 1982, с. 57−59].
3.5 Солевой баланс
Высокие концентрации NaCl и других солей в
оросительной воде повреждают растения, так как осмотические эффекты тормозят
поглощение воды, а натрий ингибирует ферменты в цитоплазме. Поэтому при
накоплении соли растения становятся чахлыми и в конце концов перестают расти.
Поскольку в условиях сухого климата фактически вся поливная вода испаряется,
засоленность почвы увеличивается несмотря даже на то, что оросительная вода
обычно содержит лишь незначительные концентрации солей. Соли остаются в почве,
и их количество медленно возрастает до тех пор, пока концентрация не начнет
повреждать растения. В этот момент нужно либо прекратить сельскохозяйственное
использование почвы, либо промыть ее избыточным количеством воды для удаления
соли. Однако большие количества воды, необходимые для промывания, часто
недоступны в зонах, требующих орошения[Бигон, 1989, с. 99−100].
4. Эколого-физиологические показатели,
характеризующие водный режим организмов
Количество влаги, поступающее в растение через
корни, редко удается определить. Обычно пользуются показателем, дающим
представление о водоотнимающей силе растения, - величиной осмотического
давления клеточного сока, выражаемой в Паскалях. Как видно на рисунке 3, в
зависимости от условий оно варьируется от 500-700 до 7000-9000 кПа( в отдельных
случаях достигает 10000 кПа и более).
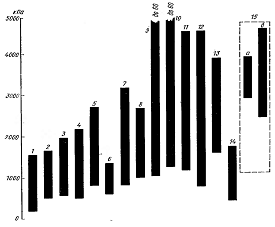
Растения: 1 - водные, 2 - весенние эфемероиды, 3 - луговые, 4 - культурные, 5 - сорняки, 6 - травы влажных лесов, 7 - травы сухих лесов, 8 - лиственные деревья и кустарники, 9 - хвойные деревья, 10 - жестколистные средиземноморские древесные породы, 11 - кустарники, 12 - растения степные, 13 - пустынные, 14 - суккуленты, 15 - галофиты (а - растения мангров, б - растения засоленных лугов).
Рисунок 3 − Амплитуды осмотического
давления клеточного сока в листьях растений различных экологических типов [по WalterH.,
1960]
В экологических работах определяется
интенсивность транспирации - количество испаренной воды за 1 ч в расчете на
единицу массы растения в граммах сырой или сухой массы или на единицу площади
листа. Экологическую значимость имеют не только величины транспирации, но и
характер во времени: дневной(суточный) ход и сезонный ход. Содержание воды у
растений разных экологических групп сильно варьируется. Здесь нет прямой связи
с водообеспеченностью местообитания, поскольку оводненность растения очень
сильно зависит от его анатомо-морфологических особенностей ( прежде всего от
количества механических, проводящих, покровных тканей). Содержание воды в
растениях не постоянно. Наиболее резко оно колеблется у пойкилогидридных
растений. В сезонном ходе содержания воды обычно отмечается падение его к концу
вегетации, которое может быть связанно как с ухудшением условий водоснабжения,
так и с возрастными изменениями листьев(старением). Вода в растениях содержится
в двух формах: свободной и коллоидно - связанной. Обычно доля связанной воды
велика у растений, испытывающих по тем или иным причинам затруднение в
пополнении расходов воды, что может рассматриваться как своего рода защитная
реакция растения против излишней транспирации [Горышина, 1979, с. 110−118;
Чернова и др., 1988].
5. Вода как среда обитания организмов. Экология
водных организмов. Хроматическая адаптация
.1 Вода как среда обитания организмов
Экологические группы растений по отношению к воде
Гидатофиты - это водные растения, целиком или почти целиком погруженные в воду. Среди них - цветковые, которые вторично перешли к водному образу жизни (элодея, рдесты, водяные лютики, валлиснерия, уруть и др.). Вынутые из воды, эти растения быстро высыхают и погибают. У них редуцированы устьица и нет кутикулы. Транспирация у таких растений отсутствует, а вода выделяется через особые клетки -гидатоды.
Гидрофиты - это растения наземно-водные,
частично погруженные в воду, растущие по берегам водоемов, на мелководьях, на
болотах. Встречаются в районах с самыми разными климатическими условиями. К ним
можно отнести тростник обыкновенный, частуху подорожниковую, вахту трехлистную,
калужницу болотную и другие виды. У них лучше, чем у гидатофитов, развиты
проводящие и механические ткани. Хорошо выражена аэренхима. В аридных районах
при сильной инсоляции их листья имеют световую структуру. У гидрофитов есть
эпидерма с устьицами, интенсивность транспирации очень высока, и они могут
расти только при постоянном интенсивном поглощении воды.Так, для зимовки
многолетних гидрофитов в реках и озерах большое значение имеет вертикальное
распределение температур подо льдом. Наиболее плотная и наименее холодная вода
с температурой 4°С располагается в придонном слое, куда опускаются зимующие
почки (турионы) роголистника, пузырчатки, водокраса и др. (рис. 4), а также
целые облиственные растения, такие, как ряска, элодея.
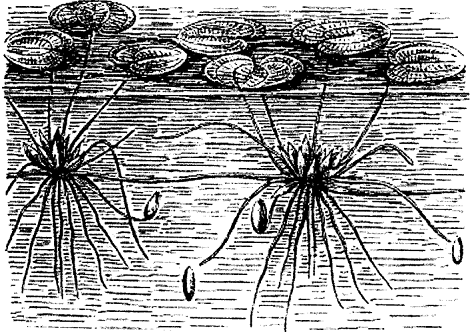
Рисунок 4 - Водокрас (Hydrochariasmorsusranae)
осенью. Видны зимующие почки, опускающиеся на дно [по Кернеру А., 1896]
Гигрофиты - наземные растения, живущие в условиях повышенной влажности воздуха и часто на влажных почвах. Среди них различают теневые и световые. Теневые гигрофиты - это растения нижних ярусов сырых лесов в разных климатических зонах (недотрога, цирцея альпийская, бодяк огородный, многие тропические травы и т. п.). Из-за высокой влажности воздуха у них может быть затруднена транспирация, поэтому для улучшения водного обмена на листьях развиваются водяные устьица, выделяющие капельно-жидкую воду. Листья часто тонкие, с теневой структурой, со слабо развитой кутикулой, содержат много свободной и малосвязанной воды. Обводненность тканей достигает 80 % и более. При наступлении даже непродолжительной и несильной засухи в тканях создается отрицательный водный баланс, растения завядают и могут погибнуть.
Мезофитымогут переносить непродолжительную и не очень сильную засуху. Это растения, произрастающие при среднем увлажнении, умеренно теплом режиме и достаточно хорошей обеспеченности минеральным питанием. К мезофитам можно отнести вечнозеленые деревья верхних ярусов тропических лесов, листопадные деревья саванн, древесные породы влажных вечнозеленых субтропических лесов, летнезеленые лиственные породы лесов умеренного пояса, кустарники подлеска, травянистые растения дубравного широкотравья, растения заливных и не слишком сухих суходольных лугов, пустынные эфемеры и эфемероиды, многие сорные и большинство культурных растений. Из приведенного перечня видно, что группа мезофитов очень обширна и неоднородна. По способности регулировать свой водный обмен одни приближаются к гигрофитам (мезогигрофиты), другие к засухоустойчивым формам (мезоксерофиты).
Ксерофитырастут в местах с недостаточным
увлажнением и имеют приспособления, позволяющие добывать воду при ее
недостатке, ограничивать испарение воды или запасать ее на время засухи.
Ксерофиты лучше, чем все другие растения, способны регулировать водный обмен,
поэтому и во время продолжительной засухи остаются в активном состоянии. Это
растения пустынь, степей, жестколистных вечнозеленых лесов и кустарниковых
зарослей, песчаных дюн. Примером приспособления к недостаточной влажности,
может служить длинный корень у растений, как на рисунке 5.
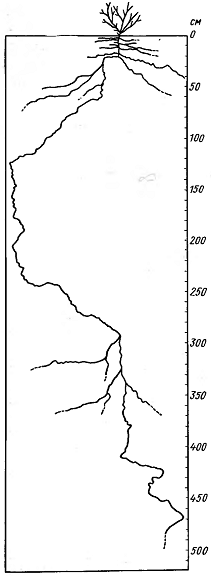
Рисунок 5 - Корневая система пустынного
кустарника Pituranthostortuosus[по
Вальтеру Г., 1968]
Ксерофиты подразделяются на два основных типа: суккуленты и склерофиты.
Суккуленты − сочные растения с сильно развитой водозапасающей паренхимой в разных органах. Стеблевые суккуленты - кактусы, стапелии, кактусовидные молочаи. Листовые суккуленты - алоэ, агавы, мезембриантемумы, молодило, очитки. Корневые суккуленты - аспарагус. В пустынях Центральной Америки и Южной Африки суккуленты могут определять облик ландшафта (рис. 6).
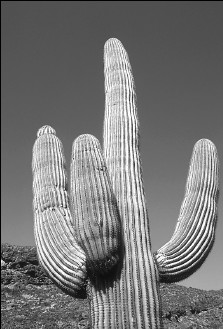
Рисунок 6 -Суккулентное растение - древовидный
кактус из пустыни Аризона
Листья, а в случае их редукции стебли суккулентов имеют толстую кутикулу, часто мощный восковой налет или густоеопушение. Устьица погруженные, открываются в щель, где задерживаются водяные пары. Водозапасающие ткани у них могут быть развиты в стеблях или листьях, поэтому они подразделяются на стеблевые суккуленты (кактусы, молочаи) и листовые суккуленты (алоэ, агава, молодило). Тело суккулентов, как правило, покрыто толстым кутинизированным эпидермисом и восковым налетом. Устьиц на поверхности тела почти нет. А если есть, то они мелкие, располагаются в ямках и большую часть времени закрыты. Открываются только на ночь. Все это предельно сокращает транспирацию. Характерной особенностью суккулентов является высокая поглощающая способность. В период дождей отдельные виды поглощают в себя большое количество воды. Накопленную влагу суккуленты в дальнейшем медленно расходуют. Суккуленты произрастают в районах с жарким сухим климатом. Там, где хотя бы изредка проходят дожди кратковременные, но обильные, ливневые.
Склерофиты (от греч. «склерос» - твердый, жесткий) не накапливают в себе влагу, а испаряют ее в большом количестве, постоянно доставая из глубоких слоев почвы. Тело этих растений жестковатое, сухое, иногда одревесневшее, с большим количеством механической ткани. При продолжительном прекращении подачи воды может наблюдаться сбрасывание листьев или части побегов, что приводит к сокращению испарения. Многие из ксерофитов переносят засушливое время года в состоянии вынужденного покоя. Примерами являются пустынная полынь, ковыль, саксаул.
Стипаксерофиты является группой узколистных
дерновинных злаков (ковыли, тонконоги, типчак и др.).Отличаются повышенными
скоростями физиологического реагирования на изменение внешних условий. Они
быстро и наиболее полно используют влагу кратковременных ливневых осадков, а
также сравнительно хорошо переносят перегрев. Весьма чувствительны к
обезвоживанию, могут переносить лишь кратковременный недостаток влаги в почве.
Характеризуются низкой транспирацией в засушливый период и могут переносить
особенно сильное обезвоживание тканей[Чернова, 2004, с. 79-83].
.2 Экология водных организмов
Водные растения называют гидрофитами. По образу жизни и строению среди них можно выделить погруженные растения и растения с плавающими листьями. Погруженные растения подразделяют на укореняющиеся в донном грунте и взвешенные в толще воды. Из высших растений к первым принадлежат полушник озерный, телорез, шильник водяной, в эту же группу водят водоросли прикрепленные к грунту. Важной особенностью адаптации растений к обитанию в водной среде является и то, что листья, погруженные в воду, как правило, очень тонкие. Часто хлорофилл в них располагается в клетках эпидермиса, что способствует усилению интенсивности фотосинтеза при слабом освещении. Такие анатомо-морфологические особенности наиболее четко выражены у водяных мхов (Riccia, Fontinalis), валиснерии (Vallisneriaspiralis), рдестов (Potamageton).
От вымывания у водных растений из клеток минеральных солей или выщелачивания защитой является выделение специальными клетками слизи и образование эндодермы из более толстостенных клеток в виде кольца.
Относительно низкая температура водной среды обусловливает отмирание вегетирующих частей у погруженных в воду растений после образования зимних почек и замену летних тонких нежных листьев более жесткими и короткими зимними. Низкая температура воды отрицательно сказывается на генеративных органах водных растений, а высокая ее плотность затрудняет перенос пыльцы. В связи с этим водные растения интенсивно размножаются вегетативным путем. Большинство плавающих на поверхности и погруженных растений выносят цветоносные стебли в воздушную среду и размножаются половым путем. Пыльца разносится ветром и поверхностными течениями. Плоды и семена, которые образуются, также распространяются поверхностными течениями. Это явление носит название гидрохории. К гидрохорным относятся не только водные, а также многие прибрежные растения. Их плоды имеют высокую плавучесть, длительное время находятся в воде и не теряют при этом всхожесть. Например, водой переносятся плоды и семена стрелолиста (Sagittariasagittofolia), сусака (Butomusumbellatus), частухи (Alismaplantago-aguatica).
Из растений, взвешенных в толще воды, можно назвать роголистник погруженный, пузырчатку обыкновенную, а также многочисленные виды планктонных водорослей. К настоящим водным растениям очень близко примыкает и обычно вместе с ним рассматривается группа гелофитов. Это виды береговых и прибрежных местообитаний с избыточным или переменным увлажнением. Примерами являются стрелолист, частуха, сусак, поручейник, ежеголовка[Степановских, 1979, с. 121−122].
5.3 Хроматическая адаптация
Так, растения, живущие на поверхности воды, не испытывают недостатка света, а погруженные и особенно глубоководные относят к «теневой флоре». Им приходится адаптироваться не только к недостатку света, но и к изменению его состава выработкой дополнительных пигментов. Это прослеживается на известной закономерности окраски у водорослей, обитающих на разных глубинах. В мелководных зонах, где растениям еще доступны красные лучи, которые в наибольшей степени поглощаются хлорофиллом, как правило, преобладают зеленые водоросли. В более глубоких зонах встречаются бурые водоросли, имеющие кроме хлорофилла бурые пигменты фикофеин, фукоксантин и др. Еще глубже обитают красные водоросли, содержащие пигмент фикоэритрин. Здесь четко прослеживается способность к улавливанию солнечных лучей с разной длиной волны. Данное явление получило название хроматической адаптации.