Дипломная (вкр): Компьютерное моделирование биологического нейрона
Прототипом для создания нейрона послужил биологический нейрон головного мозга. Биологический нейрон имеет тело, совокупность отростков - дендритов, по которым в нейрон поступают входные сигналы, и отросток иного рода - аксон, передающий выходной сигнал нейрона другим клеткам. Точка соединения дендрита и аксона называется синапсом. Упрощенно функционирование нейрона можно представить следующим образом.
Нейрон получает от дендритов набор (вектор) входных сигналов. В теле нейрона оценивается суммарное значение входных сигналов. Однако входы нейрона неравнозначны. Каждый вход характеризуется некоторым весовым коэффициентом, определяющим важность поступающей по нему информации. Таким образом, нейрон не просто суммирует значения входных сигналов, а вычисляет скалярное произведение вектора входных сигналов и вектора весовых коэффициентов. Далее нейрон формирует выходной сигнал, интенсивность которого зависит от значения вычисленного скалярного произведения. Если оно не превышает некоторого заданного порога, то выходной сигнал не формируется вовсе - нейрон "не срабатывает". И затем выходной сигнал поступает на аксон и передается дендритам других нейронов.
Поведение искусственной нейронной сети зависит как от значения весовых параметров, так и от функции возбуждения нейронов. Известны три основных вида функции возбуждения: пороговая, линейная и сигмоидальная. Для пороговых элементов выход устанавливается на одном из двух уровней в зависимости от того, стал ли суммарный сигнал на входе нейрона больше или меньше некоторого порогового значения. Для линейных элементов выходная активность пропорциональна суммарному взвешенному входу нейрона. Для сигмоидальных элементов в зависимости от входного сигнала выход варьируется непрерывно (но не линейно) по мере изменения входа. Сигмоидальные элементы имеют больше сходства с реальными нейронами, чем линейные или пороговые, но любой из этих типов можно рассматривать лишь как приближение.
Математическое моделирование на универсальных
ЭВМ дает возможность создать практически любые модели нейронных сетей, однако
из-за последовательного характера их работы в обозримое время удается
исследовать модели ограниченного размера.
.2 Синапс
Известно, что процессы выделения и распада медиатора носят экспоненциальный характер, причём процесс выделения медиатора, как правило, происходит значительно быстрее нежели процесс распада.
Следующим важным фактором является эффект пресинаптического торможения, проявляющийся в том, что при превышении концентрацией медиатора некоторого предельного значения эффект влияния синапса на ионный канал начинает ослабевать несмотря на то, что ионный канал остается полностью открытым. Достижение предельного значения концентрации возможно при стимуляции синапса импульсными потоками с высокой частотой следования импульсов.
Модель, показанная на рисунке 1.4, реализует все
три основные особенности функционирования синапса.
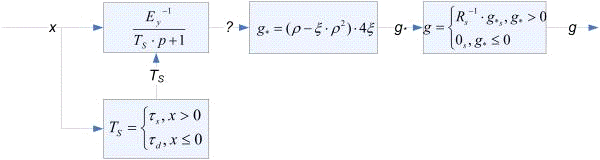 Рисунок 1.4 -
Модель синапса
Вход модели - дискретный сигнал x(t), представляющий собой последовательность импульсов длительностью 1 мс и имеющих амплитуду E. Процесс выделения и распада медиатора предлагается моделировать инерционным звеном первого порядка с логическим управлением постоянной времени. Переменная ρ характеризует концентрацию медиатора, выделившегося в ответ на импульс.
Выход g(t) модели представляет собой эффективность воздействия на ионный механизм и пропорционален проводимости синапса. Таким образом, при отсутствии входных воздействий проводимость синапса стремится к нулю, что соответствует разомкнутому ключу в эквивалентной схеме мембраны [7, 8].
Ионный механизм мембраны.
В работах [4, 5, 6] показано, что ионный канал имеет три основные характеристики - сопротивление, емкость и концентрацию ионов, поддерживаемую внутри клетки насосной функцией мембраны. Произведение Tm=RmCm характеризует инертность канала, т. е. определяет скорость восстановления нормальной концентрации ионов в клетке. Влияние синапса на ионный механизм заключается в потере эффективности насосной функции канала и в снижении концентрации ионов в клетке, причём постоянная времени данного процесса T=RICm.
Инерционные свойства модели ионного механизма
предлагается описывать апериодическим звеном с логическим управлением
постоянной времени. На рисунке 1.5 представлена модель ионного механизма,
соответствующая описанным выше свойствам.
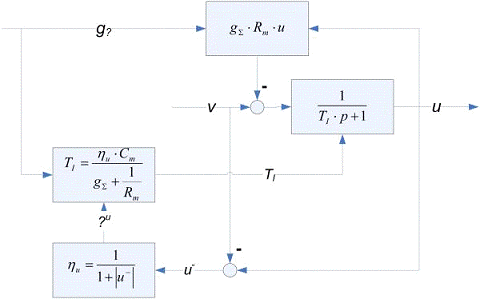
Рисунок 1.5 - Модель ионного механизма мембраны
нейрона
Здесь gΣ - суммарная эффективность влияния синапсов на ионный механизм,Rm>0 - сопротивление мембраны, Cm - емкость мембраны, ν - ожидаемый вклад модели в величину внутриклеточного потенциала при отсутствии внешнего возбуждения: данная величина определяется активностью соседних участков мембраны, u - реальный вклад модели в величину внутриклеточного потенциала.
Дополнительно в модель добавлен коэффициент скорости изменения функции ионного механизма ηu, который тем меньше, чем больше разность между выходным вкладом в мембранный потенциал и ожидаемым. Входя множителем в значение постоянной времени TI, ηu вызывает существенное изменение скорости функционирования ионного механизма при резких перепадах потенциала на соседних участках мембраны. Это существенно для перезарядки мембраны во время генерации импульса.
Генератор потенциала действия.
Как известно, суммарный мембранный потенциал
нейрона uΣ равен
алгебраической сумме выходов всех участков мембраны, моделирующих сому клетки.
На рисунке 1.6 представлена модель генератора, осуществляющая формирование
прямоугольных импульсов заданной амплитуды Ey как результат превышения
потенциалом uΣ фиксированного
порога P.
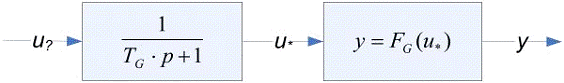
Рисунок 1.6 - Модель генератора потенциала
действия
Здесь P>0 - порог нейрона; TG - постоянная времени, определяющая время действия обратных связей перезарядки мембраны и характеризующая длительность генерируемого импульса, а вырабатываемый выходной сигнал y(t) автоматически поступает на обратные связи перезарядки сомы клетки.
Вследствие того, что построенная модель нейрона описывается нелинейной системой дифференциальных уравнений и запись полной системы уравнений, описывающей процессы в нейроне, различна для нейронов с разной структурой синаптического и дендритного аппаратов, они не имеют аналитического решения. Для оценки адекватности поведения модели биологическому прототипу следует применять процедуры численного интегрирования с последующим сравнением результатов расчётов с известными экспериментальными данными биологии.
. МАТЕМАТИЧЕСКОЕ ОПИСАНИЕ МОДЕЛИ
.1 Модели нейронов
Разработка адекватных с биологической точки зрения технических устройств, работающих по биологическим принципам, решается путем математического моделирования соответствующих биологических структур на всех уровнях организации нервной ткани. Наиболее популярным является подход нейросетевого моделирования, в котором сети со сложной пространственно-топологической организацией составляются из единичных нейронов, связанных синаптическими связями.
На данный момент разработано большое
количество моделей единичных нейронов: от пороговых моделей до
биологоправдоподобных «портретных» моделей. Самой первой пороговой моделью
нейрона считается модель, предложенная Луи Лапиком в 1907 г. [3,4]
«integrate-and-fire». Модель описывается следующими уравнениями (1):
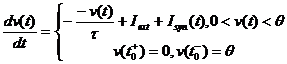 ,
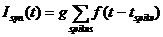 ,
|
|
|
|
|
|
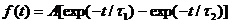 ,(1)
где V(t) - мембранный потенциал на нейроне; θ - порог генерации спайка; Iext - сумма синаптических токов; τ1 и τ2 - временные константы, характеризующие синаптические токи.
Импульс возникает тогда, когда мембранный потенциал на нейроне V(t) достигает порогового уровня θ, после которого клетка возвращается в состояние покоя. Данная модель имеет недостаток, связанный с тем, что возникает бесконечно большое линейное возрастание частоты срабатывания при линейном увеличении входного тока, что возможно только в абсолютно идеальных условиях без утечек. Уточнить модель позволяет введение рефрактерного периода, который ограничивает частоту срабатывания, запрещая срабатывание в течение некоторого времени после возникновения потенциала действия. Данная модель имеет высокую вычислительную эффективность, что позволяет ее использовать для конструирования больших искусственных нейронных сетей. Но она же имеет и главный недостаток - отсутствие учета биофизических механизмов генерации импульса.
Данный недостаток снимает
математическая модель, предложенная 1952 г. Ходжкиным и Хаксли [5].
Особенностью модели является то, что она построена с учетом экспериментальных
данных и позволяет с большой точностью описывать появление импульсов на
нейроне. Модель учитывает динамику ионных каналов, способных пропускать или не
пропускать ионы через мембрану в зависимости от разности потенциалов между
внутренним и внешним пространством клетки (трансмембранным потенциалом). В
состоянии равновесия мембранный потенциал приблизительно равен -70 мВ. Это
связано с различными концентрациями ионов разного типа внутри и снаружи клетки.
Например, ионов натрия больше снаружи, а ионов калия больше внутри. Натриевые
каналы обладают существенно более быстрой кинетикой. Деполяризация мембраны
приводит к открытию натриевых каналов. Ионы натрия устремляются внутрь, что
приводит к ещё большей деполяризации мембраны и открытию ещё большего числа
натриевых каналов. После этого открываются более медленные калиевые каналы,
натриевые же каналы при этом закрываются, прекращая натриевый ток внутрь
клетки. Ионы калия устремляются из нейрона, и нейрон постепенно возвращается к
своему исходному состоянию, после чего калиевый ток не останавливается, что
приводит к ещё большей поляризации мембраны. Данный эффект носит название
рефрактерного. В течение рефракторного периода мембрана гиперполяризуется, а в
последующем потенциал покоя восстанавливается за счет работы натрий-калиевого
насоса. Модель Ходжкина-Хаксли можно считать первой завершенной математической
моделью генерации сигнала в нейроне, причем заслуга ее создателей особенна
велика, поскольку биохимические методы для изучения ионных каналов и насосов
были разработаны нейробиологией лишь в 1980-х гг. Уравнения модели
Ходжкина-Хаксли выглядят следующим образом [1,6]:
|
|
|
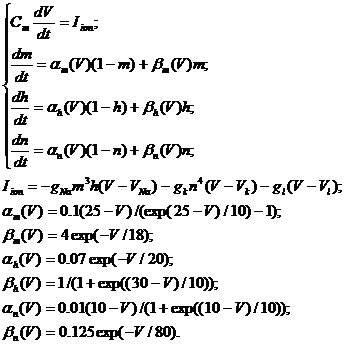 (2)
Переменная V описывает мембранный потенциал, изменения которого определяются суммой токов протекающих через мембрану: тока ионных каналов (натриевых и калиевых), тока утечки (ионы хлора). Изменения проводимости ионных каналов в зависимости от мембранного потенциала определяются, так называемыми, воротными переменными m, n, h, динамика которых описывается тремя дифференциальными уравнениями в (2), в правые части которых входят нелинейные функции α(V)и β(V). Параметры gNa, gK, gl определяют максимальные проводимости соответствующих типов каналов, VNa, VK и Vl -равновесные потенциалы по соответствующему типу ионов, значения которых определяются уравнением Нернста [1] и зависят от соотношения концентраций ионов по обе стороны от мембраны. В зависимости от амплитуды внешнего возмущения возможно появление слабого подпорогового отклика, либо генерации импульса. Динамические режимы модели Ходжкина-Хаксли изучены в литературе достаточно подробно и полно как с точки зрения биофизических механизмов генерации потенциала и протекания трансмембранных токов [1], так и с точки зрения нелинейной динамики и теории бифуркаций [6]. Данная модель хорошо подходит для детального моделирования, но из-за своей вычислительной сложности она непопулярна в моделировании сложных сетевых эффектов, наблюдаемых в нейронных сетях, состоящих из большого числа искусственных нейронов.
Модель Ходжкина-Хаксли послужила фундаментом для объяснения ионных механизмов, участвующих в возбуждении и торможении в периферическом и центральном участках мембраны нервной клетки, на её основе позднее было разработано большое количество математических моделей нервных клеток [6-15], которые используются в качестве базовых элементов при построении моделей больших нейронных сетей, и их радиотехнических реализаций [16]. Были предложены более детализированные модели, учитывающие динамику других ионных токов и обладающие качественно новыми динамическими режимами [17]. Добавление в модель кальциевого тока обеспечивает дополнительные механизмы взаимодействия различных проводимостей, что позволяет, в частности, получить бёрстовый (пачечный) режим, при котором в ответ на сверхпороговое возбуждение модельный нейрон генерирует не один, а несколько импульсов на одной волне деполяризации мембранного потенциала. Позднее были предложены другие модели с наличием бёрстовых режимов (например, [9,16]).
В дальнейшем для расширения области применимости модели при расчётах сетей, состоящих из нескольких нейронов, в первое уравнение системы (2) стали добавлять синаптические токи, возникающие при, соответственно, возбуждающем или тормозном воздействии со стороны других клеток, Iexc и Iinh. Кроме того, существует множество других модификаций с добавлением новых токов и изменением формы экспериментальных потенциал-зависимых кривых для аппроксимации данных и описания эффектов, наблюдаемых в различных нейрофизиологических экспериментах, а также для подстройки модели под определённые типы клеток [6,19]. Модифицированные и классические модели Ходжкина-Хаксли являлись предметом интенсивных исследований методами теории динамических систем и бифуркационного анализа [11-12]. Подобные биологически детализированные модели хотя и дают глубокое понимание биофизических механизмов генерации импульсных сигналов, являются достаточно сложными как для аналитических исследований, так и с точки зрения вычислительной эффективности при использовании для компьютерных симуляций.
Первой упрощенной моделью
Ходжкина-Хаксли можно назвать модель ФитцХью-Нагумо, 1961 г. [7]. Модель
включает в себя: переменную мембранного потенциала, имеющую кубическую
нелинейность в правой части описывающего ее дифференциального уравнения,
которая позволяет воспроизводить самовозбуждение через положительную обратную
связь, и переменную восстановления, соответствующее дифференциальное уравнение
для которой содержит линейную правую часть обеспечивающую отрицательную
обратную связь. Модель описывается следующими уравнениями:
|
|
|
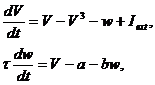 (3)
где V - переменная, описывающая динамику мембранного потенциала, входящий ток I, переменная восстановления w и экспериментально определяемые параметры, a и b.
Отметим, что в данной модели может
наблюдаться режим бистабильности при котором области притяжения двух устойчивых
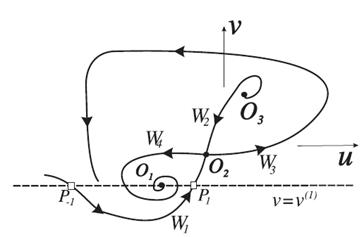
состояний равновесия разделены седлом [4,6]. Фазовый портрет модели изображён
на рисунке 2.1.
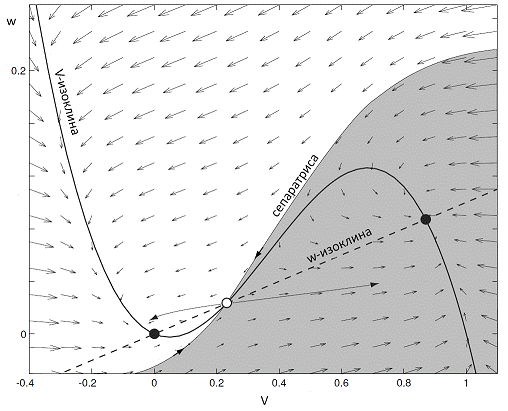
Рисунок 2.1 - Бистабильность в
модели ФитцХью-Нагумо. Адаптировано из [6]
Следующим упрощением модели Ходжкина-Хаксли является модель Моррис-Лекара, предложенная в 1981 г. [8]. Эта система уравнений описывает сложную взаимосвязь между мембранным потенциалом и активацией ионных каналов в мембране. Математически модель записывается следующим образом:
|
|
|
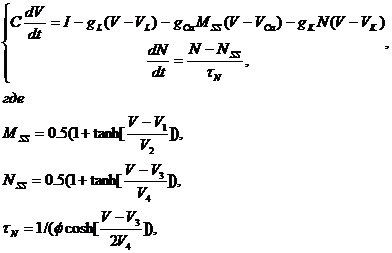 (4)
Функции вероятности открытого состояния, MSS(V) и WSS(V), получены из предположения, что в равновесии открытое и закрытое состояния каналов разграничены, согласно распределению Больцмана. Изменения внешнего тока, I, сопровождаются седло-узловой бифуркацией, приводящей к рождению предельного цикла.
В области теоретического моделирования нейронных осцилляторов исследователями из Нижегородского Государственного Университета им. Н.И. Лобачевского (ННГУ) был разработан ряд новых математических моделей нейронной динамики.
Одной из наиболее интересных разработок является модель модифицированного генератора ФитцХью-Нагумо [16], представляющего собой упрощенный вариант модели Ходжкина-Хаксли [4]. Эта модель, имеет сепаратрисное пороговое многообразие, разделяющее сигналы на подпороговые колебания и надпороговые импульсы возбуждения, которые используются далее для коммуникации между нейронами. Кроме того, модель обладает одновременно свойствами интегративного отклика, типичного для пороговых систем, и резонансными характеристиками подобно осцилляторным системам. Другими словами, имеется принципиальная возможность осуществлять одновременно как частотное, так и фазовое кодирование и декодирование информации (рисунок 2.2).