Дипломная (вкр): Компьютерное моделирование биологического нейрона
Рисунок 2.2 - Фазовая плоскость
модели ФитцХью-Нагумо с пороговым многообразием
Ранее авторами модели модифицированного генератора ФитцХью-Нагумо была предложена модель нейрона, обладающего спонтанными периодическими колебаниями ниже порога возбуждения. Такие нейроны, в частности, играют важнейшую роль в проблеме координации движений головным мозгом, задавая универсальный ритм мышечных сокращений. Модель построена на основе известных динамических систем и описывается системой дифференциальных уравнений четвёртого порядка [17,19].
На рисунке 2.3 - представлена
функциональная схема модели.
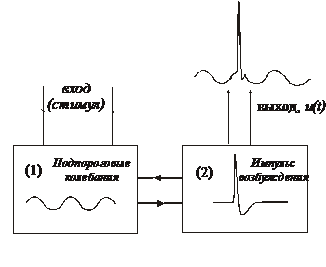
Рисунок 2.3 - Модель возбудимого элемента с подпороговыми колебаниями. Функциональная схема
Первый блок описывает подпороговые
колебания и может быть реализован в виде генератора Ван дер Поля в мягком
режиме возбуждения. Второй блок отвечает за формирование импульса и реализуется
в виде возбудимого элемента ФитцХью-Нагумо. При введении нелинейной связи между
блоками получаем, что динамика модели может быть описана следующей системой
4-го порядка:
|
|
|
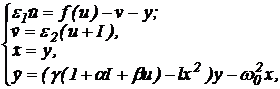 (5)
где переменные x и y описывают динамику первого блока, u и v - второго, f(u) - нелинейная функция кубической формы, e1, e2 - малые положительные параметры, I - постоянный внешний стимул g, b, l > 0, a < 0 - параметры, характеризующие динамику переменных Ван дер Поля и связь между блоками.
Заметим, что динамика переменной u в
модели (5) качественно отражает эволюцию мембранного потенциала нейрона,
переменные x, y, v - динамику ионных токов, параметр I определяет уровень
деполяризации нейрона. Введение в систему (5) двух малых параметров e1, e2 необходимо для согласования
характерных временных масштабов блоков (длительность импульса и период
подпороговых колебаний). Заметим, что в модели (5) осуществляется
взаимодействие двух нелинейных систем с принципиально различными динамическими
свойствами. Связь между блоками осуществляется следующим образом. Близкие к
гармоническим колебания с первого блока (x,y) изменяют состояние второго по
переменной u. В свою очередь изменение амплитуды подпороговых колебаний
происходит в зависимости от мембранного потенциала u и внешнего стимула I.
2.2 Модели синаптической
пластичности
В отличие от изолированной клетки объединённые в сети нейронные осцилляторы способны формировать между собой различного рода связи, от характера которых будут зависеть свойства сети в целом. Одной из характерных особенностей нейронной сети является способность к обучению, проявляющаяся в модификации параметров элементов или связей в ответ на внешнюю стимуляцию. Эта модификация может привести к изменению динамического поведения сети по мере предъявления различных входных стимулов. С другой стороны, распространение импульсной активности в таких сетях влияет на текущее состояние межэлементных связей.
Пластичными связями обладают большинство клеток нервной системы [2]. Таким образом, ясно, что синаптический контакт - это не просто место соединения нейронов между собой, а самостоятельная динамическая система с, зачастую, более сложными механизмами функционирования, чем у самих нейронов. Например, множество модельных работ, посвящённых изучению динамики пластичных сетей, состоящих из простых нейроноподобных генераторов, имеют дело с синаптическими контактами, более сложными, чем нейроны [19].
Феноменологические модели характеризуются описанием процесса, регулирующего синаптическую пластичность как "черный ящик". "Черный ящик" принимает в качестве входа набор переменных, и производит на выходе изменения в синаптической эффективности. Существует два различных класса феноменологических моделей [16], изменяющих эффективность проведения сигнала через синапс в зависимости либо от частоты импульсов, либо от соотношения времён возникновения импульсов, и различаются по типу входных переменных.
Многие из феноменологических моделей
синаптической пластичности, которые были предложены за последние годы, основаны
на зависимости свойств синаптической передачи от частоты импульсов [17]. В этих
моделях предполагается, что частота пре- и постсинаптических импульсов,
измеренных на некотором периоде времени, определяет знак и величину
синаптической пластичности. Это правило может быть сформулировано следующим
образом:
|
|
|
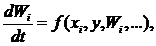 (6)
где Wi - эффективность синапса i, хi - частота импульсов пресинаптического нейрона, у является частотой постсинаптического нейрона.
Простой пример модели на основе
частоты [18] имеет следующий вид:
|
|
|
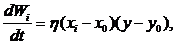 (7)
где η - скорость обучения, которая предполагается сравнительно малой, x0, y0 - некоторые константы. Обнаружение зависимости синаптической эффективности от соотношений времён прихода импульса на синапс (STDP от англ.: spike-timing dependent plastisity) вызвало интерес к созданию нового класса моделей. Большинство таких моделей зависит только от относительного времени между парами импульсов, однако в последнее время появились модели, которые зависит от времен прихода трёх импульсов [19].
При определенных предположениях о статистике появления пре- и постсинаптических импульсов, и продолжительности импульсных перекрытий, данные модели могут быть усреднены и сведены к частотным моделям [10,11].
В простейшем случае эффект STDP
описывается простой кривой, как показано на рисунке 2.4.
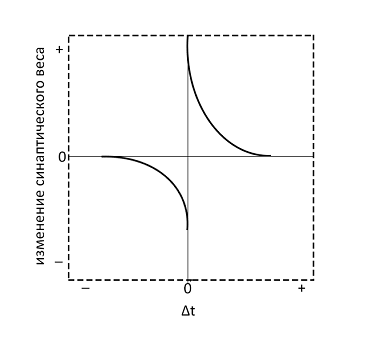
Рисунок 2.2.1 - Кривая STDP
Прямой порядок следования импульсов
"пресинаптический-постсинаптический" приводит к увеличению веса связи
(эффект потенциации LTP). Если порядок появления импульсов на синапсе обратный,
то возникает эффект депрессии (LTD).STDP также зависит от многих других
факторов, таких как частота активации нейронов, на которых возникают пары
импульсов [12,13], уровень локальной постсинаптической деполяризации или
начальное состояние синапсов. Биофизические модели, в отличие от
феноменологических моделей, основаны на моделировании биохимических и
физиологических процессов, которые приводят к синаптической пластичности.
Простой динамической системой, которая реализует гипотезу управления силой
связи с помощью изменения концентрации кальция, является:
|
|
|
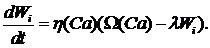 (8)
Другим важным типом синаптической пластичности является кратковременная частотно-зависимая пластичность, при которой эффективность передачи сигнала зависит от частоты следуемыхимпульсов. Модель такой пластичности была предложена в работе [11]. Она описывает кинетику выброса нейропередатчика (синаптических ресурсов) с помощью динамической системы 4-го порядка. Краткосрочная пластичность зависит от входящих импульсов на временных масштабах десятков миллисекунд. С помощью такой модели, в частности, удалось описать механизм возникновения популяционных пачечных разрядов в нейронных сетях [11]. В различных аспектах нейродинамики предлагались и другие модели краткосрочной пластичности, имеющие различную степень биофизической детализации. Опираясь, как правило, на описание конкретных экспериментальных феноменов, модели пластичности остаются по существу слабо изученными с точки зрения нелинейной динамики передачи и преобразования импульсных возбуждений между нейронами через пластичные синаптические связи.
Формально модель краткосрочной пластичности, речь о которой шла выше, записывается следующим образом:
|
|
|
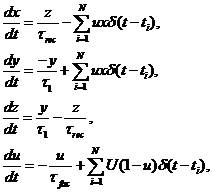 (9)
где ti - время возникновения i-го пресинаптического импульса, N - общее число импульсов, x, y, z - переменные, описывающие доли синаптических ресурсов в восстановленном, активном и неактивном состояниях соответственно. u - переменная, отвечающая за синаптическую депрессию или усиление. τ1, τrec, τfac - характерные времена динамики синапса.
Тип синапса определяется набором параметров, например, для возбуждающего типа связи между двумя возбуждающими нейронами параметры синапса предлагается брать A=1.8 мВ, U=0.5, τrec=800 мсек, τfac=0 мсек, τ1=3 мсек [11]. Постсинаптический ток в такой модели описывается с помощью взвешенной синаптической переменной y.
Каждый пресинаптический импульс вызывает скачок переменной y, после которого y спадает до нуля за сравнительно короткое время. Эффект синаптической депрессии (уменьшения эффективной силы связи) проявляется в том, что с каждым следующим входным импульсом величина скачка переменной y уменьшается, если интервал между пресинаптическими импульсами не достаточно велик для того, чтобы синапс восстановился к исходному состоянию. Следовательно, чем выше частота пресинаптических импульсов, тем сильнее и быстрее уменьшается сила связи. При этом, для случая периодического входного воздействия стационарное значение величины скачков определяется нелинейной функцией частоты входного воздействия.
Помимо синаптической пластичности в
основе динамической организации межэлементных взаимодействий в сетях нейронных
осцилляторов лежит так называемая структурная пластичность, заключающаяся в
формировании и разрушении связей между элементами сети. Так в процессе работы
нейронной системы архитектура межэлементных связей может изменяться в
зависимости от динамики всей сети. При записи новой информации новые связи
могут отражать другие пути распространения импульсных сигналов. В заключении
следует отметить, что в основе многих вычислительных свойств, поразительной
эффективности и помехоустойчивости при обработке информации и высоких
адаптационных показателей, которыми обладают нейронные сети, лежит динамическая
организация межэлементных взаимодействий, обеспечиваемая, в том числе,
различными механизмами синаптической пластичности.
.3 Компьютерная модель
Как известно, любой нейрон связывается с соседними путем образования синаптических связей [14].
Тот нейрон, который имеет наибольшее число связей принимает и обрабатывает больший объем информации gs i. В связи с этим, нейрон имеющий большее число связей с другими нейронами обладает большей значимостью, другими словами его сигналы обладают большей силой и являются более приоритетными в сравнении с другими. Сила нейрона будет зависеть от того числа синапсов, которыми аксон присоединился к следующему нейрону.
В процессе создания искусственного нейрона возникает проблема в организации искусственных синаптических связей, а также в разделении сигналов между собой от одного нейрода. Другими словами в разбиении сплошного прямоугольного импульса на ряд дискретных. Ведь если нейрод будет соединяться с последующим путем простых соединений то, вероятно, сигналы, пришедшие на вход сольются друг с другом, и последующий нейрод не различит несколько сигналов Xs i и gs i от одного.
Эта проблема решается двумя способами: аппаратно или программно. Аппаратное решение состоит в том, что в контроллере подключается таймер и сигналы от нейрода к нейроду принимаются определенными пакетами. Но это решение уменьшает частоту n2, и сказывается на работоспособности сети в целом [16].
Еще одна из существующих проблем скрыта в архитектуре самого контроллера. Он, как и вся современная вычислительная техника читает программный код последовательно, периодически обрабатывая прерывания. Последовательная архитектура мешает реализовать в одном контроллере работу нескольких нейродов организованных в сеть, т.к. работа таймера распространяется на все нейроды, и пока хотя бы один из них будет генерировать пакет импульсов, другие не смогут их принять, а будут генерировать свои.
Поэтому нейронная сеть сможет работать только с внешними источниками сигналов, что опять же сказывается на производительности сети и на актуальности разработки в целом [15].
Для разрешения этой проблемы на базе микроконтроллера реализуется не менее одного, но не более 3 нейродов с одинаковым числом возбуждающих и тормозящих входов. Выходы нейронов подсоединяются к соответственным входам последующего нейрода [16,17].
Такое решение позволяет четко прослеживать последовательность подключения нейродов между собой.
Также использовать в программе подстраиваемые весовые коэффициенты (pi) дендритов. Это позволит обойтись одним соединением между разными нейродами. Понятие «число связей между нейронами» будет заложено в параметре pi.
Так, если информация, поступающая в нейрон, имеет высокую значимость, то весовой коэффициент Ss i в процессе настройки сети (развития сети) будет возрастать до определенного максимума. Эта схема реализации, приводит к концепции приоритетного взаимодействия нейронов: когда наиболее важные задачи решаются в первую очередь; позволяет нейродам, реализованным на одном микроконтроллере, не терять информацию в период подключения таймера. Да и сама необходимость в таймере отпадает. Остается только определить сколько контактов микроконтроллера будут входными для конкретного нейрода.
Итак приступим к самому интересному,
пора запрограммировать на компьютере виртуальный кусок нервной ткани. Для этого
необходимо будет численно решать систему дифференциальных уравнений задающих
динамику мембранного потенциала нейрона. Для интегрирования будет
использоваться метод Эйлера. Программа будет писаться на языке программирования
С++,после чего результат будет получен с помощью скриптов написанных на Python,
с использованием библиотеки Matplolib.
Для этого необходимо будут создаваться двумерные массивы Vms, Ums размерности
Tsim*Nneur для хранения мембранных потенциалов и вспомогательных переменных
каждого нейрона, в каждый момент времени, Tsim это время симуляции в отсчетах,
а Nneur количество нейронов количество нейронов в каждый момент в сети.
Связи,которые также воссозданы в каждый момент времени,будут храниться в виде
двух массивов pre_con и post_con размерности Ncon, где индексами является
номера связей, а значениями являются индексы пресинаптических и
постсинаптических нейронов. Ncon - число связей.Так же нам необходимо будет
создать массив для представления переменной модулирующей экспоненциально затухающий
постсинаптический ток каждого синапса, для этого создаем массив размерности
Ncon*Tsim:float h = .5f; // временной шаг интегрирования в мс int Tsim =
1000/.5f; // время симуляции в дискретных отсчетахint Nexc = 100; // Количество
возбуждающих (excitatory) нейроновint Ninh = 25; // Количество тормозных
(inhibitory) нейронов
const int Nneur = Nexc + Ninh;
const int Ncon = Nneur*Nneur*0.1f; // Количество сязей, 0.1 это вероятность связи между 2-мя случайными нейронамиVms[Nneur][Tsim]; // мембранные потенциалыUms[Nneur][Tsim]; // вспомогательные переменные модели ИжикевичаIex[Nneur]; // внешний постоянный ток приложенный к нейронуIsyn[Nneur]; // синаптический ток на каждый нейронpre_conns[Ncon]; // индексы пресинаптических нейроновpost_conns[Ncon]; // индексы постсинаптических нейроновweights[Ncon]; // веса связейy[Ncon][Tsim]; // переменная модулирующая синаптический ток в зависимости от спайков на пресинапсе psc_excxpire_time = 4.0f; // характерное вермя спадания постсинаптического тока, мсminWeight = 50.0f; // веса, размерность пкАmaxWeight = 100.0f;
// Параметры нейронаIex_max = 40.0f; // максимальный приложенный к нейрону ток 50 пкА
float a = 0.02f;b = 0.5f;
float c = -40.0f; // значение мембранного потенциала до которого он сбрасываеться после спайка
float d = 100.0f;k = 0.5f;Vr = -60.0f;Vt = -45.0f;
float Vpeak = 35.0f; // максимальное значение мембранного потенциала, при котором происходит сброс до значения сV0 = -60.0f; // начальное значение для мембранного потенциалаU0 = 0.0f; // начальное значение для вспомогательной переменнойCm = 50.0f; // электрическая ёмкость нейрона, размерность пкФ
Как уже было сказано, информация кодируется во временах возникновения импульсов, поэтому создаются массивы для сохранения времен их возникновения и индексов нейронов где они возникли. Далее их можно будет записать в файл, с целью визуализации.spike_times[Nneur*Tsim]; // времена возникновения спайковspike_neurons[Nneur*Tsim]; // индексы нейронов на которых происходят спайки
int spike_num = 0; // номер спайка
Дальше разбрасываются случайно связи и задаются веса:init_connections(){(int con_idx = 0; con_idx < Ncon; ){ // случайно выбираем постсипантические и пресинаптические нейроны