Материал: Fiza_5
9.Детектирование сигналов
Детектированием называют избирательное выделение сенсорным нейроном того или иного признака раздражителя, имеющего поведенческое значение. Осуществляют такой анализ нейроны-детекторы, избирательно реагирующие лишь на определенные свойства стимула. Так, типичный нейронзрительной коры отвечает разрядом лишь на один из наклонов (ориентацию) световой полоски, расположенной в определенной части поля зрения. При других наклонах той же полоски ответят другие нейроны. Такие нейроны называют детекторами первого порядка, так как они выделяют наиболее простые признаки. В высших отделах сенсорной системы сконцентрированы детекторы высших порядков, ответственные за выделение сложных признаков и целых образов. Примером могут служить детекторы лица, найденные в нижневисочной коре обезьян (предсказанные много лет назад Ю. Конорским, они были названы «детекторами моей бабушки»). Многие детекторы формируются в раннем онтогенезе под влиянием внешней среды, а у части из них детекторные свойства заданы генетически.
10.Опознание образов.
Это конечная и наиболее сложная операция сенсорной системы. Она заключается в отнесении образа к тому или иному классу объектов с которыми ранее встречался организм, т.е. в классификации образов. Синтезируя сигналы от нейронов-детекторов, высший отдел сенсорной системы формирует «образ» раздражителя и сравнивает его со множеством образов, хранящихся в памяти. Опознание завершается принятием решения о том, с каким объектом или ситуацией встретился организм. В результате этого происходит восприятие, т. е. мы осознаем, чье лицо видим перед собой, кого слышим, какой запах чувствуем. Нейрофизиологические механизмы опознания сенсорных образов исследованы пока недостаточно.
Опознание часто происходит независимо от изменчивости сигнала. Мы надежно опознаем, например, предметы при различной их освещенности, окрасе, размере, ориентации и положении в поле зрения. Это означает, что сенсорная система формирует независимый от изменений ряда признаков сигнала (инвариантный к этим изменениям) сенсорный образ.
При опознании сенсорных образов возможны ошибки. Особую группу таких ошибок составляют так называемые «сенсорные иллюзии». Они основаны на некоторых побочных эффектах взаимодействия нейронов, участвующих в обработке сигналов, и приводят к искаженной оценке образа в целом или отдельных его характеристик (размер, соотношение частей и т. п.).
11. Механизмы переработки информации в сенсорной системе
Переработка информации в сенсорной системе осуществляется с помощью процессов возбудительного и тормозного межнейронного взаимодействия. Это взаимодействие осуществляется по горизонтам, т.е. в пределах одного нейронного слоя, и по вертикали, т.е. между нейронами соседних слоев. Возбудительное взаимодействие по вертикали заключается в том, что аксон каждого нейрона, приходя в вышележащий слой, контактирует с несколькими нейронами, каждый из которых получает сигналы от нескольких клеток предыдущего слоя. В результате подобного взаимодействия формируются так называемые рецептивные и проекционные поля сенсорных нейронов, играющие ключевую роль в переработке сенсорных сигналов.
Совокупность рецепторов, сигналы о которых поступают на данный нейрон, называют его рецептивным полем. В пределах рецептивного поля происходит пространственная суммация. Проекционным полем сенсорного нейрона называют совокупность нейронов более высокого слоя, которые получают его сигналы. Наличие у нейронов проекционных полей обеспечивает высокую устойчивость к повреждающим воздействиям и способность к восстановлению функций.
Рецептивные поля соседних нейронов частично перекрываются. В результате такой организации связей в сенсорной системе образуется так называемая «нервная сеть». В результате повышается чувствительность системы к слабым сигналам.
Горизонтальная переработка сенсорной информации имеет тормозной характер. Сила этого торможения тем больше, чем сильнее возбужден первый элемент и чем ближе к нему соседняя клетка. Это один из ведущих механизмов, осуществляющих большую часть операций по снижению избыточности и выделению наиболее существенных сведений о раздражителе.
12.Адаптация сенсорной системы
Сенсорная система обладает способностью приспосабливать свои свойства к условиям среды и потребностям организма. Сенсорная адаптация – это общее свойство сенсорных систем, заключающееся в приспособлении к длительно действующему (фоновому) раздражителю. Существует общая, или глобальная, и локальная, или селективная адаптация. Общая, или глобальная, адаптация проявляется в снижении абсолютной и повышении дифференциальной чувствительности всей сенсорной системы. Субъективно адаптация проявляется в привыкании к действию постоянного раздражителя (например, мы не замечаем непрерывного давления на кожу привычной одежды). Локальная, или селективная, адаптация сводится к снижению чувствительности не всей сенсорной системы, а какой-либо её части, подвергнутой длительному действию стимула.
Адаптационные процессы начинаются на уровне рецепторов, охватывая и все нейронные уровни сенсорной системы. Адаптация слаба только в вестибуло- и проприорецепторах. По скорости данного процесса все рецепторы делятся на быстро- и медленно адаптирующиеся. Первые после развития адаптации практически не посылают в мозг информации о длящемся раздражении. Вторые эту информацию передают в значительно ослабленном виде. Когда действие постоянного раздражителя прекращается, абсолютная чувствительность сенсорной системы восстанавливается. Так, в темноте абсолютная чувствительность зрения резко повышается.
В сенсорной адаптации важную роль играет эфферентная регуляция свойств сенсорной системы. Она осуществляется за счёт нисходящих влияний со стороны более высоких на более низкие её отделы. Происходит как бы перенастройка свойств нейронов на оптимальное восприятие внешних сигналов в изменившихся условиях. Кроме того, состояние разных уровней сенсорной системы контролируется также ретикулярной формацией, включающей их в единую систему, интегрированную с другими отделами мозга и организма в целом. Эфферентные влияния в сенсорных системах чаще всего имеют тормозный характер, т.е. приводят к уменьшению их чувствительности и ограничивают поток афферентных сигналов.
Общее количество эфферентных нервных волокон, приходящих к элементам какого-либо нервного слоя, как правило, во много раз меньше количества его собственных нейронов. Это определяет важную особенность эфферентного контроля в сенсорных системах: его широкий и диффузный характер. Речь идёт об общем снижении чувствительности значительной части нейронного слоя.
13.Взаимодействие сенсорных систем
Взаимодействие сенсорных систем осуществляется на спинальном, ретикулярном, таламическом и корковом уровне. Особенно широка интеграция сигналов в ретикулярной формации. В коре мозга происходит интеграция сигналов высшего порядка. В результате множественных связей с другими сенсорными и неспецифическими системами многие корковые нейроны приобретают способность отвечать на сложные комбинации сигналов разной модальности. В особенности это свойственно нервным клеткам ассоциативных областей коры больших полушарий, которые обладают высокой пластичностью, что обеспечивает перестройку их свойств в процессе непрерывного обучения опознанию новых раздражителей.
14.Обонятельная сенсорная система
Обонятельная система, также как и вкусовая, является системой химического чувства. Назначение обонятельной системы – информировать организм о присутствии в окружающей среде (воздушной или водной) определенных химических соединений, выполняющих, как правило, сигнальную функцию.
Строение обонятельной системы
Рецепторы. Обонятельные рецепторы расположены в слизистой оболочке, покрывающей верхнюю стенку носовой полости. Обонятельные рецепторы являются дистантными и способны возбуждаться на значительном расстоянии от источника запаха. Это первично чувствующие клетки, представляющие собой типичные нейроны, способные к генерации и передаче распространяющихся по нервным волокнам нервных импульсов. У человека насчитывается около 10 млн обонятельных рецепторов. Следует отметить, что обонятельные ощущения исходят не только от сенсорных клеток в обонятельной области. Дыхательная область содержит также свободные нервные окончания сенсорных волокон тройничного нерва, которые также реагируют на пахучие вещества. Поэтому даже при полном перерыве обонятельных волокон ощущение запаха до некоторой степени сохраняется.
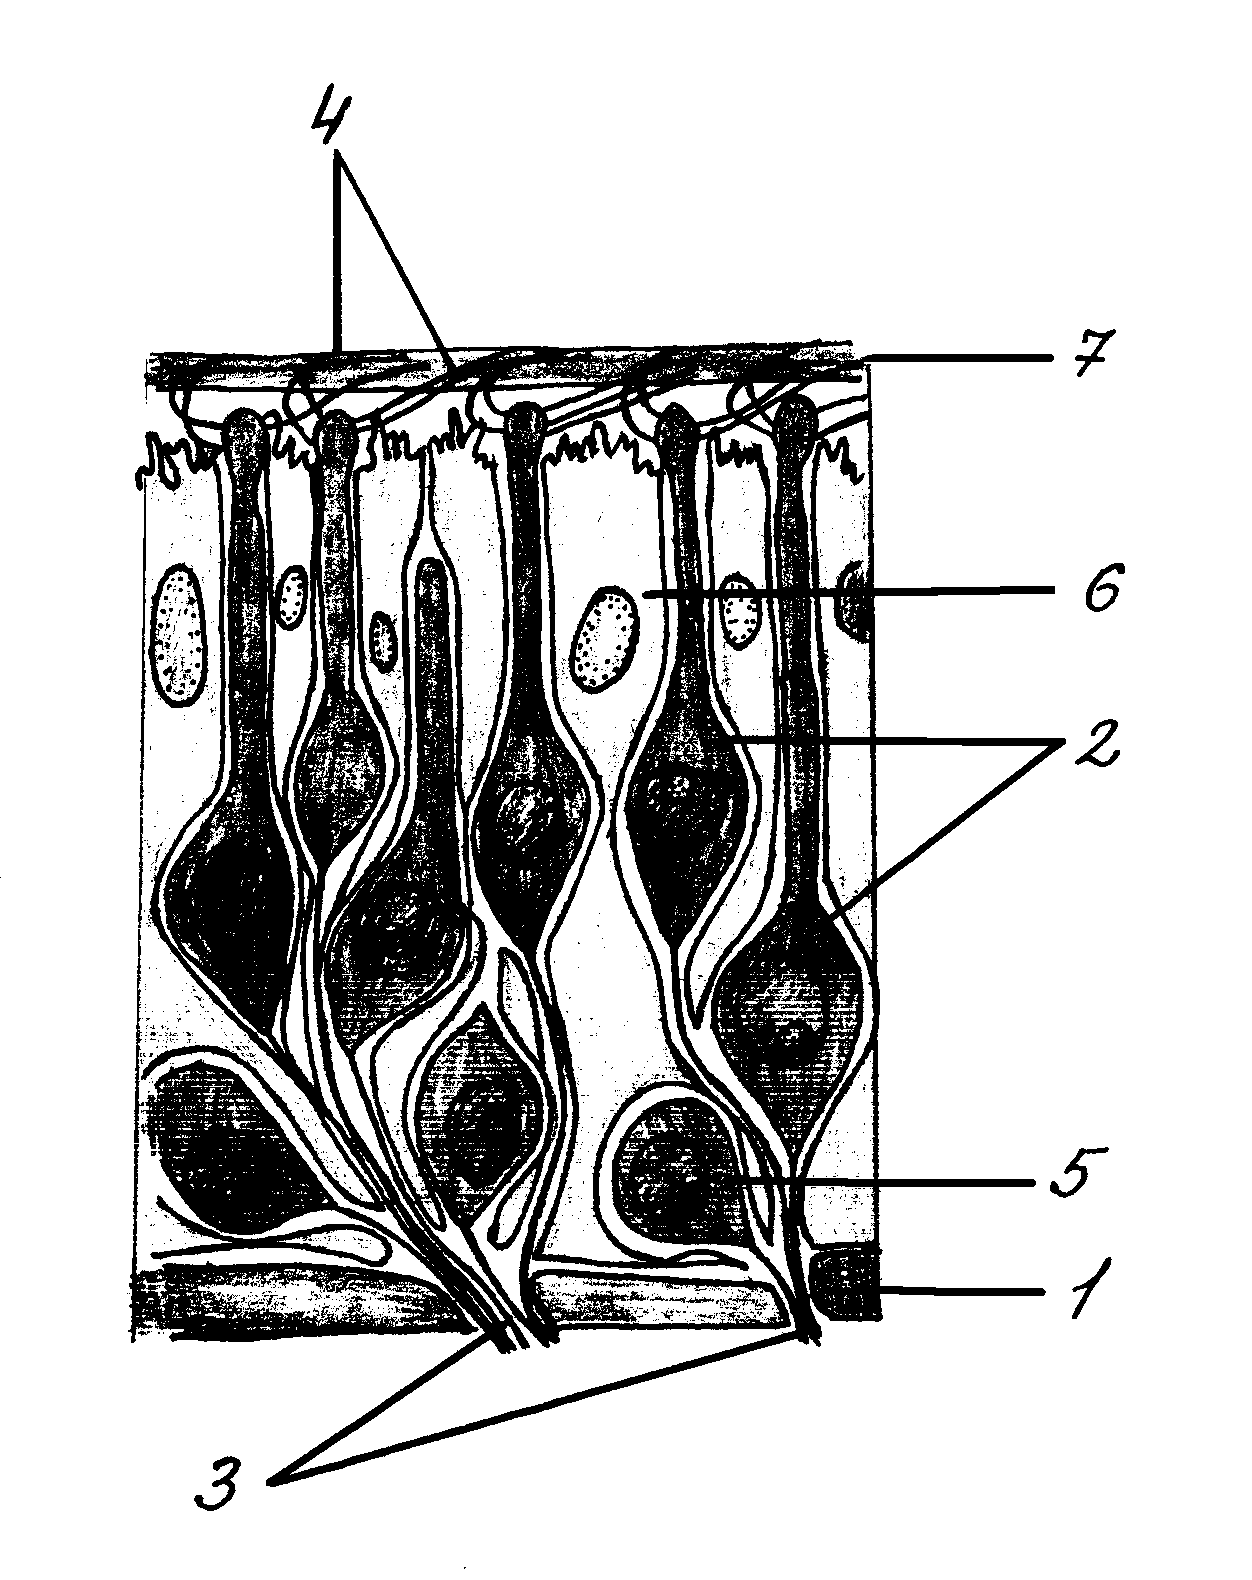
Рецепторные клетки окружены и изолированы друг от друга телами опорных клеток, выполняющих защитную и опорную функцию, и базальных клеток, представляющих собой незрелые рецепторы (рис. 11). Аксоны рецепторных и базальных клеток образуют обонятельный нерв, который в виде многочисленных (до 20) коротких нитей направляется к обонятельным луковицам мозга.
|
Рис. 11. Строение обонятельного эпителия: 1 – базальная мембрана; 2 – обонятельные (рецепторные) клетки; 3 – центральные отростки обонятельных клеток; 4 – микроворсинки рецепторных клеток; 5 – базальная клетка; 6 – опорная клетка; 7 – слизистый слой. |
Обонятельные луковицы лежат на нижней поверхности лобных долей. Имеют овальную форму и сложное слоистое строение. У животных с хорошо развитым обонянием имеются одна–две пары дополнительных луковиц. В луковицах лежат нейроны 2-го порядка, так называемые митральные клетки. Это крупные клетки, аксоны которых формируют обонятельные тракты, идущие к обонятельным центрам высшего порядка: гиппокампу, лимбической коре, миндалевидному комплексу, ядрам прозрачной перегородки и гипоталамуса и т.д. Проекций в новую кору обонятельная система не дает.
14.1Переферический отдел обонятельной сенсорной системы
Периферическим отделом обонятельной сенсорной системы являются рецепторные клетки в эпителиальной (обонятельной) выстилке носовой полости. Она расположена в верхней носовой раковине и соответствующей части носовой перегородки, отличается желтоватым цветом (из-за присутствия пигмента в клетках) и занимает в носовой полости около 2,5–5 см2.
Слизистая оболочка носовой полости в области обонятельной выстилки несколько утолщена по сравнению с остальной слизистой. Она образована рецепторными и опорными клетками (см. Атл.). Обонятельные рецепторные клетки представляют собой первичночувствующие клетки. В их апикальной части расположен длинный тонкий дендрит, заканчивающийся булавовидным утолщением. От утолщения отходят многочисленные реснички, имеющие обычное строение и погруженные в слизь. Эту слизь выделяют опорные клетки и железы, лежащие под эпителиальным пластом (Боуменовы железы).
В базальной части клетки расположен длинный аксон. Немиелинизированные аксоны многих рецепторных клеток образуют под эпителием довольно толстые пучки, называемые обонятельными волокнами (fila olfactoria). Эти аксоны проходят в отверстия продырявленной пластинки решетчатой кости и направляются к обонятельной луковице, лежащей на нижней поверхности головного мозга.
Возбуждение рецепторных клеток происходит при взаимодействии стимула с ресничками, затем оно по аксону передается в мозг. Хотя обонятельные клетки являются нейронами, они, в отличие от последних, способны к обновлению. Срок жизни этих клеток составляет примерно 60 дней, после чего они дегенерируют и фагоцитируются. Замена рецепторных клеток происходит за счет деления базальных клеток обонятельной выстилки.
14.2 Механизм возбуждения обонятельных рецепторов
Присоединение пахучих молекул к хеморецептивным белкам запускает каскад биохимических реакций, приводящих к возникновению потенциалов действия рецепторных клеток. После присоединения пахучих молекул к рецепторам происходит активация G-белков, а затем аденилатциклазы, что ведет к повышению внутриклеточной концентрации циклического аденозинмонофосфата, который активирует протеинкиназу А. Ее фосфорилирующее действие на белки мембранных каналов для катионов приводит к открытию каналов, току катионов в клетку и деполяризации мембраны, являющейся рецепторным потенциалом первичного сенсорного нейрона. При деполяризации мембраны до критического уровня в сенсорном нейроне возникают потенциалы действия, служащие для передачи информации на следующий иерархический уровень обонятельной системы.
Все первичные обонятельные нейроны имеют широкий спектр чувствительности и реагируют на многие пахучие вещества, в то же время разные рецепторные клетки отличаются индивидуальной чувствительностью к различным веществам (обонятельный профиль сенсорного нейрона). Каждый запах возбуждает одновременно большое количество рецепторов, индивидуальные особенности которых в совокупности создают неповторимую комбинацию, характерную именно для этого запаха. На этом основана способность человека к различению сложных запахов, принадлежащих, например, двум разновидностям духов.
14.3Проводниковый и корковый отдел
Проводниковый отдел представлен проводящими нервными путями в виде обонятельного
нерва, ведущие к обонятельной луковице (образование овальной формы). Проводниковый
отдел. Первым нейроном обонятельного анализатора следует считать нейросенсорную или нейрорецепторную клетку. Аксон этой клетки образует синапсы, называемые гломерулами, с главным дендритом митральных клеток обонятельной луковицы, которые представляют второй нейрон. Аксоны митральных клеток обонятельных луковиц образуют обонятельный тракт, который имеет треугольное расширение (обонятельный треугольник) и состоит из нескольких пучков. Волокна обонятельного тракта отдельными пучками идут в передние ядра зрительного бугра.
Центральный отдел состоит из обонятельной луковицы, связанной ветвями обонятельного
тракта с центрами, которые расположены в палеокортексе (древней коре больших
полушарий головного мозга) и в подкорковых ядрах, а так же корковый отдел, который локализован в височных долях мозга, извилине морского коня.
Центральный, или корковый, отдел обонятельного анализатора локализуется в передней
части грушевидной доли коры в области извилины морского коня.
Безмякотные аксоны биполярных рецепторных клеток объединяются в 15—20 пучков,
каждый из которых содержит несколько сотен или тысяч волокон. Такие пучки входят в
полость черепа через отверстия решетчатой кости и объединяются в обонятельные нервы (I пара черепных нервов). Окончания первичных сенсорных нейронов образуют синапсы с
дендритами митральных клеток обонятельных луковиц. Обонятельные луковицы
расположены в передней черепной ямке над решетчатой костью, их наружный слой
образован сплетениями волокон обонятельных нервов. Чуть глубже, в клубочковом слое,
информация передается митральным клеткам, причем каждая митральная клетка (сенсорный нейрон второго порядка) получает в одном клубочке сигналы приблизительно тысячи аксонов рецепторных клеток. Митральным клеткам свойственна ритмическая активность, изменения которой обусловлены вдыханием пахучих веществ.
Локальные интернейроны обонятельных луковиц (перигломерулярные и зернистые клетки) осуществляют латеральное торможение, способствующее контрастированию передаваемых сигналов. На локальных интернейронах оканчиваются эфферентные волокна противоположной обонятельной луковицы, лимбических структур и ретикулярной формации ствола: эфферентное влияние позволяет контролировать характер выходных сигналов обонятельной луковицы. Аксоны митральных клеток вместе с прилегающими к ним аксонами пучковых клеток, которые получают афферентную информацию от нескольких клубочков одновременно, образуют латеральный обонятельный тракт к центрам высшего порядка.
Латеральный обонятельный тракт разделяется на несколько частей, оканчивающихся в
лимбических структурах переднего мозга: переднем обонятельном ядре, перегородке,
пириформной и парагиппокампальной извилинах. Нейроны этих структур возбуждаются при поступлении афферентной информации от обонятельных рецепторов и передают ее
гиппокампу, миндалинам, орбитофронтальной коре и ретикулярной формации среднего
мозга. Большинство областей проекции обонятельного тракта не принимают
непосредственного участия в восприятии запахов, их физиологическая роль состоит в
образовании ассоциативных связей обонятельной системы с другими сенсорными системами при формировании пищевого, полового и оборонительного поведения. Активация лимбической системы создает эмоциональный компонент обонятельного восприятия, который определяет субъективное отношение к запахам.