Материал: Биохимия. Углеводы-1
ТРАНСПОРТ ЧЕРЕЗ КЛЕТОЧНЫЕ МЕМБРАНЫ
Из крови в клетки глюкоза попадает при помощи облегченной диффузии – по
градиенту концентрации с участием белков -переносчиков (глюкозных транспортеров "ГлюТ"). Различают 5 видов транспортеров глюкозы ГлюТ 1, ГлюТ 2, ГлюТ 3, ГлюТ 4,
ГлюТ 5. Глюкозные транспортеры расположены на мембранах всех влеток.
Например, на поверхности β-клеток островков Лангерганса находится ГлюТ 2, благодаря ему генерируется сигнал для увеличения или снижения вы-
работки инсулина.
В мышцах и жировой ткани находится ГлюТ 4, только эти транспортеры явля-ются чувствительными к влиянию инсулина – при действии инсулина на клетку они
поднимаются к поверхности мембраны и переносят глюкозу внутрь. Данные ткани
получили название инсулинзависимых.
РЕАКЦИИ ВЗАИМОПРЕВРАЩЕНИЯ САХАРОВ
Поскольку в кишечнике всасываются все моносахарид, поступающие с пищей, то
перед организмом встает задача превратить их в глюкозу, так как в реакциях мета-болизма используется в основном глюкоза. Этот процесс получил название взаимо-
превращение сахаров. Цель его – создание только одного субстрата для реакций
мебаболизма, а именно α-D-глюкозы, что позволяет сэкономить ресурсы, не образо-вывать множество ферментов для каждого вида сахара.
Превращение фруктозы
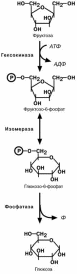
Реакции перехода фруктозы в глюкозу достаточно просты. Сначала происходит активация фруктозы посредством фос-
форилирования 6-го атома углерода, затем изомеризация и,
наконец. отщепление уже ненужного фосфата.
Превращение галактозы
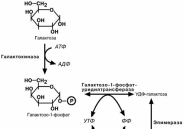
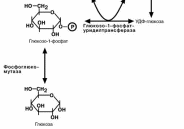
Галактоза, как и фруктоза, сначала подвергается фосфо-рилированию, хотя и по 1-му атому углерода. Еще одним
отличием от обмена фруктозы является изомеризация в глю-
козу не напрямую, а через синтез УДФ-галактозы, собственно, которая и превращается в глюкозу.
Физиологический смысл этого усложения видимо состоит
в использовании УДФ-галактозы в молочной железе для син-теза лактозы. необходимой для образования молока.
Нарушения превращения галактозы
Нарушения обмена галактозы вызваны генетическим де-
фектом нескольких ферментов:
галактокиназы, частота дефекта 1:500000;
галактозо-1-фосфат-уридил-трансферазы, частота дефекта 1:40000;
эпимеразы, частота дефекта менее 1:1000000.
Заболевание, возникающее при этих нарушениях получи-
ло название галактоземия.
Диагностика. Концентрация га-
лактозы в крови возрастает до
11,1-16,6 моль/л (норма
0,3-0,5 ммоль/л), в крови также по-
является галактозо-1-фосфат. К ла-бораторным критериям относятся
также билирубинемия, галактозурия,
протеинурия, гипераминоацидурия, накопление гликозилированного ге-
моглобина. Дети отказываются от
еды,
Патогенез. Избыток галактозы
превращается в спирт галактитол (дульцитол), накапливающийся в
хрусталике и осмотически привле-
кающий сюда воду. Изменятся соле-вой состав и белки хрусталика, что
приводит к катаракте в молодом
возрасте. Катаракта возможна даже у плодов матерей с галактоземией,
употреблявших молоко во время бе-ременности.
При дефекте галактозо-1-фосфат-уридил-трансферазы АТФ постоянно расходуется на фосфо-
рилирование галактозы и дефицит энергии "токсически" действует на нейроны, гепа-
тоциты, нефроциты, угнетает активность многих ферментов. Как результат возмож-
ны задержка психо-моторного развития , умственная отсталость, некроз гепатоцитов и цирроз печени. В почках и кишечнике избыток галактозы и ее метаболитов ингиби-
рует транспорт аминокислот.
Лечение: исключение из рациона молока и других источников галактозы позво-ляет предотвратить развитие патологических симптомов. Однако сохранность ин-
теллекта может быть достигнута только при ранней, не позднее первых 2 месяцев
жизни, диагностике и вовремя начатом лечении.
СУДЬБА ГЛЮКОЗЫ В КЛЕТКЕ
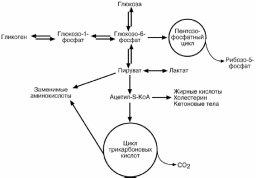
Попав в клетку, глюкоза сразу же фосфорилируется. Фосфорилирование глюко-
зы решает сразу несколько задач:
фосфатный эфир глюкозы не в состоянии выйти из клетки, так как молекула
отрицательно заряжена и отталкивается от фосфолипидной поверхности
мембраны;
наличие заряженной группы обеспечивает правильную ориентацию молеку-
лы в активном центре фермента;
уменьшается концентрация свободной (нефосфорилированной) глюкозы, что способствует диффузии новых молекул из крови.
ФОСФОРИЛИРОВАНИЕ ГЛЮКОЗЫ
Наибольшие запасы гликогена имеются в печени и скелетных мышцах , но во-обще гликоген способен синтезироваться во всех тканях. Резервы гликогена в клет-
ках используются в зависимости от функциональных особенностей клеток. Гликоген печени расщепляется при снижении концентрации глюкозы в крови,
прежде всего между приемами пищи. Через 12-18 часов голодания запасы гликогена в печени полностью истощаются. В мышцах количество гликогена снижается обычно только после физической нагрузки – длительной и напряженной. Повышение содер-
жания гликогена в мышцах отмечается в период восстановления при приеме богатой
углеводами пищи. В печени гликоген накапливается после еды.
Такие отличия печени и мышц обусловлены наличием различных изоферментов гексокиназы, фермента, который
фосфорилирует глюкозу в глюкозо-
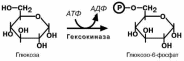
6-фосфат.
Для печени характерен изо-
фермент, получивший собственное
название – глюкокиназа. Отличия-ми этого фермента от гексокиназ
других тканей являются:
в низком сродстве к глюко-зе, что ведет к захвату глюкозы печенью только при ее высокой концентра-
ции в крови (после еды);
продукт реакции – глюкозо-6-фосфат – не ингибирует фермент, в то время как в других тканях гексокиназа чувствительна к такому влиянию.
Благодаря этим отличиям гепатоцит может эффективно захватывать глюкозу по-
сле еды и метаболизировать ее в любом направлении.
Например, при переполнении запасов гликогена накапливающийся глюкозо-6-фосфат не подавляет глюкокиназу и усвоение глюкозы, а просто идет на
окисление до ацетил-S-КоА и в пентозофосфатный цикл, что в целом увели-
чивает синтез липидов.
Регуляция глюкокиназы: активация – андрогены и инсулин, подавление – глю-кокортикоиды и эстрогены.
МЕТАБОЛИЗМ ГЛИКОГЕНА
МОБИЛИЗАЦИЯ ГЛИКОГЕНА
Мобилизация (распад) гликогена или гликогенолиз в норме активируется при недостатке свободной глюкозы в клетке, а значит и в крови (голодание, мышечная работа) . При этом уровень глюкозы крови поддерживают только печень и почки, ткани в которых имеется фермент глюкозо-6-фосфатаза, гидролизующий фосфат-ный эфир глюкозы. Образуемая свободная глюкоза выходит через плазматическую мембрану в кровь. Остальные органы используют гликоген только для собственных нужд.
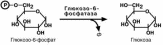
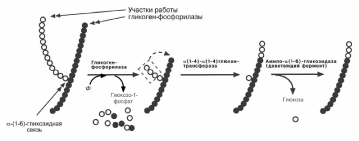
В гликогенолизе непосредственно участвуют три фермента:
Фосфорилаза гликогена – расщепляет α-1-4-гликозидные связи с образова-
нием глюкозо-1-фосфата. Фермент работает до тех пор, пока до точки ветвления
α(1-6) не останется 4 остатка глюкозы.
α(1-4)–α(1-6)-глюкантрансфераза, фермент переносящий трисахаридный
фрагмент на другую цепь с образованием новой α-1-4-гликозидной связи. При этом
на прежнем месте остается один остаток глюкозы и «открытая» доступная α-1-6-гликозидная связь.
Амило-α-1-6-глюкозидаза, «деветвящий» фермент – гидролизует
α-1-6-гликозидную связь с высвобождением свободной глюкозы. В результате обра-зуется цепь без ветвлений, служащая субстратом для фосфорилазы.
АКТИВАЦИЯ ФОСФОРИЛАЗЫ
Скорость гликогенолиза лимитируется только скоростью работы фосфорилазы гликогена. Ее активность может изменяться трямя способами.
Ковалентная модификация
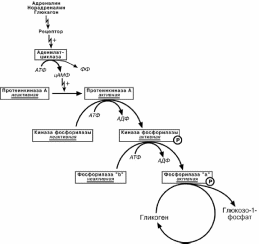
Происходит фосфорилирование фермента при действии гормонов на клетку
через аденилатциклазный механизм. Он является так называемым каскадным регу-лированием:
Молекула гормона взаимодействуя со своим рецептором, активирует фермент
аденилатциклазу.;
Аденилатциклаза превращает АТФ в циклический АМФ (цАМФ) – вторичный
посредник или мессенджер;
цАМФ аллостерически активирует фермент протеинкиназу А;
Протеинкиназа А фосфорилирует различные внутриклеточные белки. Одним из этих белков является киназа фосфорилазы, которая при фосфорилировании ак-
тивируется;
Киназа фосфорилазы фосфорилирует фосфорилазу "b" гликогена, послед-
няя в результате превращается в активную фосфорилазу "а";
Активная фосфорилаза " а" гликогена расщепляет α-1-4-гликозидные связи в гликогене с образованием глюкозо-1-фосфата.
Активация ионами кальция
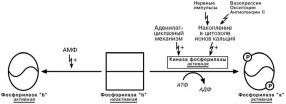
Второй способ регуляции заключается в активации киназы фосфорилазы не
протеинкиназой, а ионами Ca2+ и кальмодулином. Этот путь работает при инициа-ции кальций-фосфолипидного механизма. Такой способ оправдывает себя, напри-
мер, при мышечной нагрузке, когда гормональные влияния недостаточны, зато в ци-
топлазму под влиянием нервных импульсов поступают ионы Ca2+. Также некоторые
гормоны влияют на углеводный обмен посредством этого механизма.
Активация с помощью АМФ
Третий способ – аллостерическая активация благодаря присоединению АМФ к молекуле фосфорилазы "b". Способ работает в любой клетке – при увеличении рас-
хода АТФ и накоплении продуктов его распада.
СИНТЕЗ ГЛИКОГЕНА
Синтез гликогена начинается с обра-
зования глюкозо -6 -фосфата под действи-ем глюкокиназы в печени или других гек-
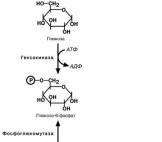
сокиназ в остальных тканях. Как уже гово-
рилось, глюкокиназа обладает низким сродством к глюкозе и в гепатоцитах глю-
коза будет задерживаться только при вы-
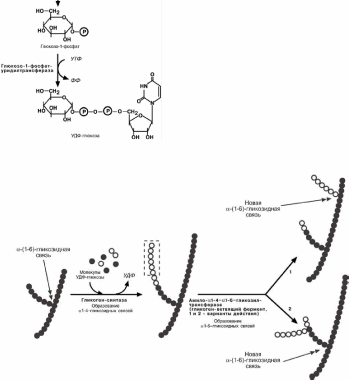
соких концентрациях ее в клетке . Непосредственно же синтез гликогена
осуществляют следующие ферменты:
Фосфоглюкомутаза – превращает глюкозо-6-фофат в глюкозо-1-фофат;
Глюкозо-1-фосфат-уридил-трансфе-
раза – фермент, осуществляющий ключе-вую реакцию синтеза. Необратимость
этой реакции обеспечивается гидролизом
образующегося дифосфата;
Гликогенсинтаза – образует α-1-4-гликозидные связи;
Амило-α-1.4-α-1,6-гликозил-транс-фераза, гликоген-ветвящий фермент –
переносит фрагмент с минимальной дли-
ной в 6 остатков глюкозы на эту же или соседнюю цепь с образованием
α-1-6-гликозидной связи.
РЕГУЛЯЦИЯ ОБМЕНА ГЛИКОГЕНА
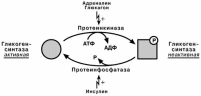
Ферменты метаболизма гликогена активны либо в фосфорилированной, либо в
дефосфорилированной форме:
фосфорилаза глико-гена активируется
после присоединения фосфатной группы
(см выше),
синтаза гликогена после присоединения
фосфата инактиви-
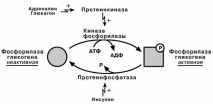
руется.
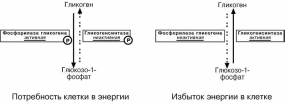
Таким образом, осуществ-
ляется реципрокная (взаи-
моисключающая) регуляция:
при работе клетки
и/или гормональных
влияниях активирует-
ся протеинкиназа и,
как следствие, акти-
вируется фосфори-
лаза гликогена и ин-
гибируется гликоген-
синтаза. Идут реак-ции катаболизма глю-
козы, и образуется
энергия.
при отдыхе или в по-
кое работают протеин-фосфатазы, которые освобождают ферменты от фос-
форной кислоты: в результате гликоген-фосфорилаза дефосфорилируется и становится не активной, активируется гликоген-синтаза. Начинается за-пасание глюкозы в виде гликогена.
ГЛИКОГЕНОВЫЕ БОЛЕЗНИ
Это наследственные заболевания, обусловленные недостаточностью каких-либо
ферментов, отвечающих за метаболизм гликогена. Средняя частота встречаемости составляет 1:40000.
Гликогенозы
Ранее гликогенозы классифицировались по номерам, однако в связи с открытием
новых видов этих болезней появилось много разночтений. В настоящее время глико-
генозы делят по патогенетическому признаку на печеночные, мышечные и сме-шанные формы. Следует отметить, что при гликогенозах количество гликогена не
всегда изменено, изменения могут быть только в структуре его молекулы.
Печеночные гликогенозы
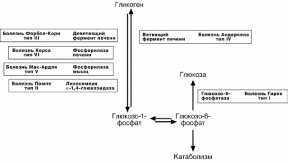
Самый частый гликогеноз I типа или болезнь фон Гирке обусловлен аутосом-
но-рецессивным дефектом глюкозо-6-фосфатазы. Из-за того, что этот фермент есть
только в печени и почках, преимущественно страдают эти органы, и болезнь носит еще одно название – гепаторенальный гликогеноз. Даже у новорожденных детей
наблюдаются гепатомегалия и нефромегалия, обусловленные накоплением гликоге-на не только в цитоплазме, но и в ядрах клеток. Кроме этого, активируется синтез липидов с возникновением стеатоза печени. Так как фермент необходим для де-фосфорилирования глюкозо-6-фосфата с последующим выходом глюкозы в кровь, у больных отмечается гипогликемия, и, как следствие, ацетонемия, метаболический ацидоз, ацетонурия.
Гликогеноз III типа или болезнь Форбса-Кори или лимит-декстриноз – это аутосомнорецессивный дефект амило-α-1-6-глюкозидазы, «деветвящего» фермен-та, гидролизующего α-1-6 -гликозидную связь. Болезнь имеет более доброкачествен-ное течение и частота ее составляет примерно 25% от всех гликогенозов. Для боль-ных характерна гепатомегалия, умеренная задержка физического развития, в подро-стковом возрасте возможна небольшая миопатия.
Еще два печеночных гликогеноза – гликогеноз IV типа (болезнь Андерсена),
связанный с дефектом ветвящего фермента и гликогеноз VI типа (болезнь Херса), связанный с дефицитом печеночной фосфорилазы гликогена встречаются довольно редко.