Материал: Биохимия. Углеводы-1
Обход первой реакции гликолиза
Последняя реакция катализируется глюкозо-6-
фосфатазой . Она имеется только в печени и почках, сле-довательно, только эти ткани могут продуцировать сво-
бодную глюкозу.
ГЛЮКОЗО- ЛАКТАТНЫЙ И ГЛЮКОЗО- АЛАНИНОВЫЙ ЦИКЛЫ
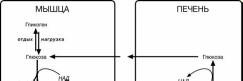
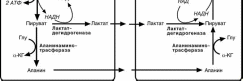
Глюкозо-лактатный цикл (цикл Кори) – это связь глюконеогенеза в печени и об-
разования лактата эритроцитах или мыш-цах из глюкозы. В эритроцитах молочная
кислота образуется
непрерывно, так как для них анаэробный
гликолиз является
единственным спосо-бом образования энер-
гии. В скелетных мыш-цах накопление лакта-та является следстви-ем гликолиза при очень интенсивной, максимальной мощно-
сти, работе, и чем более такая работа интенсивна, тем менее продолжительна По-
сле нагрузки (во время восстановления) лактат удаляется из мышцы довольно бы-
стро – всего за 0,5-1,5 часа.
Дополнение
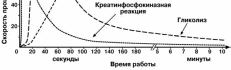
Следует отметить, что если продолжи-
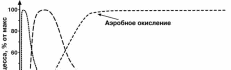
тельность нагрузки мала (до 10 секунд),
то количество АТФ пополняется пре-имущественно в
креатинфосфоки-назной реакции. В
таком режиме к при-меру работают мышцы у ттанги-
стов, прыгунов как в длину, так и в высо-
ту, метателей мо-лота, копья и т.п..
Если нагрузка не бо-лее 90 секунд – АТФ синтезируется в основном в реакциях анаэробного глико-
лиза. В спорте это бегуны-спринтеры на 100-500 м, спортсмены силовых ви-дов (борцы, тяжелоатлеты, бодибилдеры). Если напряжение мышцы длится
более двух минут – развивается аэробное окисление глюкозы в реакциях ЦТК
и дыхательной цепи.
Но, хотя мы и говорим об аэробном окислении глюкозы, необходимо знать и помнить, что лактат образуется в мышце всегда: и при анаэробной, и при аэробной работе, однако в разных количествах.
Образовавшийся лактат может утилизоваться только одним способом – превра-
титься в пировиноградную кислоту. Но, как уже указывалось, пируват токсичен для
клеток и должен быть как можно быстрее утилизован. Сама мышца ни при работе, ни во время отдыха не занимается превращением лактата в пируват из-за наличия
специфического изофермента ЛДГ-5.
Если молочная кислота поступила в миокардиоциты, она быстро превраща-ется в пируват, далее в ацетил-S-КоА и вовлекается в полное окисление до
СОB2B и НB2BО.
Большая часть лактата захватывается гепатоцитами, окисляется в пировино-
градную кислоту и вступает на путь глюконеогенеза.
Целью глюкозо-аланинового цикла также является уборка пирувата, но, кроме
этого решается еще одна немаловажная задача – уборка лишнего азота из мышцы.
При мышечной работе и в покое в миоците распадаются белки и образуемые амино-кислоты рансаминируются с α-кетоглутаратом. Полученный глутамат взаимодейст-
вует с пируватом. Образующийся аланин является транспортной формой и пирувата
и азота из мышцы в печень. В гепатоците идет обратная реакция трансаминирова-ния, аминогруппа передается на синтез мочевины, пируват используется для синте-за глюкозы
Глюкоза, образованная в печени из лактата или аланина, возвращается обратно в мышцы, восстанавливая во время отдыха запасы гликогена.
Кроме мышечной работы, глюкозо-аланиновый цикл активируется во время го-
лодания, когда мышечные белки распадаются и многие аминокислоты используются
качестве источника энергии, а их азот необходимо доставить в печень.
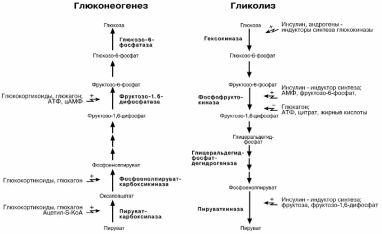
ЕГУЛЯЦИЯ ГЛИКОЛИЗА И ГЛЮКОНЕОГЕНЕЗА
МЕТАБОЛИЗМ ЭТАНОЛА
СПИРТОВОЕ БРОЖЕНИЕ
Образование этилового спирта из глюкозы происходит в дрожжах и некоторых видах плесневых грибков. Суммарное
уравнение реакции:
C6H5О10 → 2 CО2 + 2 С2Н5ОН
До стадии образования пирувата реакции спиртового броже-
ния совпадают с реакциями гликолиза, отличия заключаются
только в дальнейшем превращении пировиноградной кислоты. Цель этих превращений – удалить пируват из клетки и окислить
НАДН, который образовался в 6-й реакции.
ОБЕЗВРЕЖИВАНИЕ ЭТАНОЛА
Метаболизм поступающего этанола в организме происходит
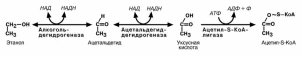
в печени двумя путями. Первый путь заключается в окислении
спирта до уксусной кислоты, которая в виде ацетил-S-КоА посту-
пает в ЦТК. Через этот путь проходит от 70% до 90% всего эта-нола. Оставшаяся часть окисляется в микросомах алкогольокси-дазой. При регулярном поступлении этанола доля микросомаль-ного окисления возрастает, количество молекул алкогольоксида-зы увеличивается.
Так как при обезвреживании этанола образуется большое количество НАДН, в клетках печени активируется реакция превращения пирувата в лактат. Это приводит к гипогликемии, так как пировиноградная кислота является субстратом глюконео-генеза. Свободное проникновение молочной кислоты в кровь обуславливает лакта-
цидемию.
Если запасы гликогена в печени изначально невелики (голодание, недоедание, астеническое телосложение) или израсходованы (после физической работы), то при приеме алкоголя натощак гипогликемия наступает быстрее и может
быть причиной потери сознания. К этому стоит добавить сильный диурети-
ческий эффект этанола, ведущий к быстрому обезвоживанию организма и снижению кровоснабжения головного мозга со всеми вытекающими последст-виями.
Этанол является энергетически ценным соединением: при метаболизме 125 г этанола количество образующегося НАДН такое же, как при окислении 500 г глюко-
зы. При полноценном питании и частом потреблении этилового спирта, например, в виде пива, "этанольный" ацетил-S-КоА не столько сгорает в ЦТК, сколько использу-
ется для синтеза холестерина и нейтральных жиров, то есть происходит переход
энергии этанола в запасную форму, что приводит к пивному ожирению и повышает риск атеросклероза.
ПЕНТОЗОФОСФАТНЫЙ ПУНТЬ
Пентозофосфатный путь окисления глюкозы не связан с образованием энергии.
Значение ПФП:
Образование НАДФН
для синтеза жирных кислот,
холестерина и других стероидов,
для синтеза глутаминовой кислоты из α-кетоглутаровой кислоты (реак-
ция восстановительного аминирования).
для систем защиты клетки от свободно-радикального окисления (анти-оксидантная защита).
2. Образование рибозо-5-фосфата, необходимого для синтеза нуклеиновых ки-
слот.
Наиболее активно реакции ПФП идут в цитозоле клеток печени, жировой ткани, эритроцитах, коре надпочечников, молочной железе при лактации, менее интенсив-
но в скелетных мышцах.
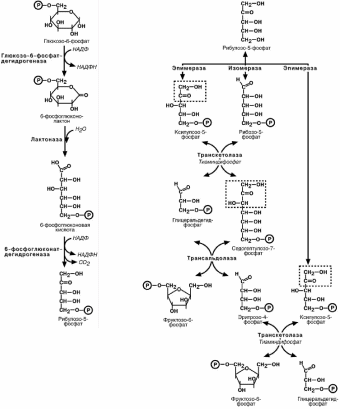
Пентозофосфатный путь включает два этапа – окислительный и неокислитель-ный.
На первом, окислительном, этапе глюкозо-6-фосфат в трех реакциях превра-
щается в рибулозо-5-фосфат, реакции сопровождаются восстановлением двух мо-лекул НАДФ до НАДФН.
Второй этап – этап структурных перестроек, благодаря которым пентозы воз-
вращаются в фонд гексоз. В этих реакциях рибулозо-5-фосфат может изомеризо-ваться до рибозо-5-фосфата и ксилулозо-5-фосфата. Далее под влиянием фермен-
тов транскетолазы и трансальдолазы происходят структурные перестройки с обра-
зованием иных моносахаридов. При реализации всех реакций второго этапа пентозы превращаются во фруктозо-6-фосфат и глицеральдегидфосфат. Из глицеральдегид-
3-фосфата при необходиости могут образоваться гексозы.
Связь пентозофосфатного пути и гликолиза
Судьба полученных фруктозо-6-фосфата и глицеральдегидфосфата различна
в зависимости от ситуации и потребностей клетки. Поэтому метаболизм глюкозо-6-фосфата может идти по 4 различным механизмам.
Механизм 1. Потребность в НАДФН и рибозо-5-фосфате сбалансирована
(например, при синтезе дезоксирибонуклеотидов). При таких условиях реак-
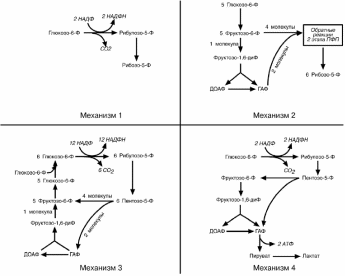
ции идут обычным порядком – образуется две молекулы NADPH и одна моле-
кула рибозо-5-фосфата из одной молекулы глюкозо-6-фосфата по окисли-тельной ветви пентозофосфатного пути.
Механизм 2. Потребность в рибозо-5-фосфате значительно превышает потребность в НАДФН (например, синтез РНК) Большая часть глюкозо-6-фосфата превращается во фруктозо-6-фосфат и глицеральдегид-3-фосфат
по гликолитическому пути. Затем две молекулы фруктозо-6-фосфата и одна молекула глицеральдегид-3-фосфата под действием трансальдолазы и
транскетолазы рекомбинируют в три молекулы рибозо-5-фосфата путем обращения реакции 2 этапа пентозофосфатного пути.
Механизм 3. Потребность в НАДФН значительно превышает потреб-
ность в рибозо-5-фосфате (например, биосинтез холестерола, жирных ки-слот). В этой ситуации по окислительным реакциям пентозофосфатного
пути образуются НАДФН и рибулозо-5-фосфат. Далее, под действием транс-кетолазы и трансальдолазы, рибулозо-5-фосфат превращается в пентозо-5-фосфаты, во фруктозо-6-фосфат и глицеральдегид-3-фосфат. В заключение
происходит ресинтез глюкозо-6-фосфата из фруктозо-6-фосфата и глице-ральдегидфосфата по пути глюконеогенеза. Подключение новых молекул
глюкозо-6-фосфата позволяет поддерживать стехиометрию процесса.
Механизм 4. Потребность в НАДФН значительно превышает потреб-ность в рибозо-5-фосфате и необходима энергия (например. антиокси-
дантная защита в эритроците). Глюкозо-6- фосфат превращается в рибозо-5-фосфат и далее во фруктозо-6- фосфат и глицеральдегид-3-фосфат, ко-торые ( в отличие от механизма 3) вступают на гликолитический путь обме-на, а не подвергаются обратному превращению в глюкозо-6-фосфат. Образо-ванный пируват вступает в ЦТК. В результате происходит одновременное генерирование НАДФН и АТФ.
Недостаточность глюкозо-6-фосфат-дегидрогеназы
Генетическая недостаточность глюкозо-6-фосфат-дегидрогеназы отмечается примерно с частотой 1:60, то есть на Земле имеется около 100 млн человек с этим заболеванием, которое, к счастью, не всегда проявляется. Следствием ферментного дефекта является снижение синтеза НАДФН в клетке. Особенно существенно это влияет на эритроциты , в которых окислительный этап пентозофосфатного цикла является единственным источником НАДФН.
Из разнообразных функций НАДФН для эритроцитов имеет значение одна – уча-
стие в работе антиоксидантной системы, а именно кооперация с глутатион-
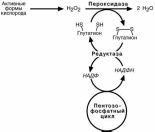
пероксидазой, ферментом, восстанавли-
вающим пероксид водорода до воды. Пе-роксид водорода в клетке образуется из
свободных кислородных радикалов (актив-
ных форм кислорода), последние являются обычным продуктом деятельности ряда
ферментов, например, цитохромоксидазы.
При употреблении некоторых лекарст-венных препаратов (сульфаниламиды, (стрептоцид, сульфацил-Na), норсульфа-зол, парацетамол, аспирин, примахин, ме-тиленовый синий, нафталин) в клетках ак-
тивируются процессы свободно-радикального окисления. Обычная клетка, и эритро-
цит в том числе, довольно легко справляются с дополнительной нагрузкой. При не-
достаточности описываемого фермента перекись водорода накапливается в эритро-ците, усиливается повреждение его мембран и гемолиз.
ГОМЕОСТАЗ ГЛЮКОЗЫ В КРОВИ
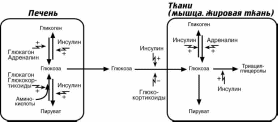
Концентрация глюкозы в крови изменяется под влиянием многих гормонов. Ос-
новными гормонами являются глюкагон, адреналин, глюкокортикоиды, сомато-
тропный гормон с одной стороны, и инсулин с другой. Инсулин является единст-
венным гормоном организма, действие которого нацелено на снижение уровня глю-козы крови. Все остальные гормоны увеличивают его.
Уменьшение инсулином концентрации глюкозы в крови достигается следующи-
ми путями:
стимуляция белков-транспортеров на цитоплазматической мембране,
повышение синтеза глюкокиназы – фермента, получившего название "ло-
вушка для глюкозы",
активация гликоген-синтазы -и стимуляция ее синтеза, что позволяет пре-
вратить излишки глюкозы в гликоген,
индукция синтеза глюкозо-6-фосфат-дегидрогеназы и 6-фосфоглюконат-дегидрогеназы,
стимуляция синтеза ферментов гликолиза – фосфофруктокиназы, пируват-киназы, что позволяет вовлечь глюкозу в окислительные процессы.
вовлечение глюкозы в синтез триацилглицеринов (см Синтез триацилглице-ролов ).
Многие ткани нечувствительны к действию инсулина, их называют инсулинне-
зависимыми. К ним относятся нервная ткань, стекловидное тело, хрусталик, сетчат-ка, клубочковые клетки почек, эндотелиоциты, семенники и эритроциты.
Глюкагон, адреналин и глюкокортикоиды повышают содержание глюкозы кро-
ви, активируя мобилизациию гликогена (гликогенфосфорилазу), стимулируя синтез ферментов глюконеогенеза (пируваткарбоксилазу, фосфоенолпируват-
карбоксикиназу, фруктозо-1,6-дифосфатазу и глюкозо-6-фосфатазу). Глюкокорти-
коиды, кроме этого, препятствуют проникновению глюкозы в клетку.
ГИПЕРГЛИКЕМИЧЕСКИЕ СОСТОЯНИЯ
Гипергликемическим является состоянием, при котором концентрация глюкозы в крови более 6 ммоль/л.
По происхождению выделяют две группы таких состояний: