Материал: Биохимия. Углеводы-1
Мышечные гликогенозы
Для этой группы гликогенозов характерны изменения ферментов мышечной тка-
ни. Это приводит к нарушению энергообеспечения мышц при физической нагрузке, болям в мышцах, судорогам.
Гликогеноз V типа (болезнь Мак-Ардля) – отсутствие мышечной фосфорила-
зы. При тяжелой мышечной нагрузке возникают судороги, миоглобинурия, хотя лег-кая работа не вызывает каких-либо проблем.
Смешанные гликогенозы
Эти заболевания касаются и печени, и мышц, и других органов.
Гликогеноз II типа (болезнь Помпе) – поражаются все гликогенсодержащие
клетки из-за отсутствия лизосомальной α-1-4-глюкозидазы. Происходит накопле-
ние гликогена в лизосомах и в цитоплазме. Заболевание составляет почти 10% всех гликогенозов и является наиболее злокачественным. Больные умирают в грудном
возрасте из-за кардиомегалии и .тяжелой сердечной недостаточности.
Агликогенозы
Агликогенозы – состояния, связанные с отсутствием гликогена.
В качестве примера агликогеноза можно привести наследственный аутосомно-
рецессивный дефицит гликоген-синтазы. Симптомами является резкая гипогликемия натощак, особенно утром, появляется рвота, судороги, потеря сознания. В результа-те гипогликемии наблюдается задержка психомоторного развития, умственная от-сталость. Болезнь несмертельна при адекватном лечении (частое кормление), хотя и опасна.
ГЛИКОЛИЗ
Путь, по которому глюкоза окисляется до пировиноградной кислоты для получе-
ния энергии, называется гликолизом. В зависимости от дальнейшей судьбы пирува-
та различают аэробный и анаэробный гликолиз.
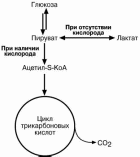
аэробном процессе пировиноградная кислота превращается в ацетил-S-КоА и
далее сгорает в реакциях тканевого дыхания до СОB2B и НB2BО.
анаэробном процессе пировиноградная кислота восстанавливается до молоч-ной кислоты (лактата), поэтому в микробиологии анаэробный гликолиз называют
молочнокислым брожением. Лактат является метаболическим тупиком и далее ни во
что не превращается, единственная возмож-ность утилизовать лактат – это окислить его
обратно в пируват.
Практически все клетки организма способ-ны к анаэробному гликолизу. Для эритроцитов
он является единственным источником энер-
гии. Клетки скелетной мускулатуры за счет бескислородного расщепления глюкозы спо-
собны выполнять мощную, быструю, интенсив-
ную работу, как, например, бег на короткие дистанции, напряжение в силовых видах спор-
та.
Анаэробный гликолиз локализуется в цито-золе и включает 2 этапа из 11 ферментатив-ных реакций.
Первый этап – подготовительный, здесь происходит
затрата энергии АТФ, активация глюкозы и образование
из нее триозофосфатов.
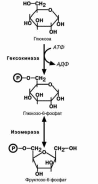
Первая реакция гликолиза, строго говоря, к гликоли-
зу не относится. Это гексокиназная реакция о которой
ранее уже говорилось ("Метаболизм гликогена"). Ее роль сводится к превращению глюкозы в реакционно способ-
ное соединение за счет фосфорилирования 6-го, не
включенного в кольцо, атома углерода.
Для печени характерен изофермент гексокиназы –
глюкокиназа. Низкое сродство этого фермента к глюко-
зе обеспечивает ее захват печенью только после приема пищи, когда создается высокая концентрация глюкозы в
крови. При обычных концентрациях глюкозы в крови пе-
чень ее не потребляет и та достается другим тканям. Вторая реакция – реакция изомеризации – необхо-
дима для выведения еще одного атома углерода из
кольца для его последующего фосфорилирования. В ней образуется фруктозо-6-фосфат.
Т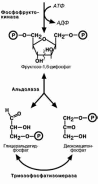 ретья
реакция –
фосфорилирование
фруктозо-6-
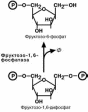
фосфата с образованием почти симметричной молекулы фруктозо-1,6-дифосфата.
В четвертой реакции фруктозо1,6-дифосфат разре-
зается пополам с образование двух фосфорилирован-ных триоз-изомеров, альдозы глицеральдегида (ГАФ) и
кетозы диоксиацетона (ДАФ).
Пятая реакция подготовительного этапа – переход глицеральдегидфосфата и диоксиацетонфосфата друг в
друга. Равновесие реакции сдвинуто в пользу диокси-
ацетонфосфата, его доля составляет 97%, доля глице-ральдегидфосфата – 3%. Эта реакция, при всей ее про-
стоте, является вершителем судьбы глюкозы:
при нехватке энергии в клетке и активации окис-
ления глюкозы диоксиацетонфосфат превраща-
ется в глицеральдегидфосфат, который далее окисляется на втором этапе гликолиза;
при достаточном количестве АТФ, наоборот, глицеральдегидфосфат изомеризуется в диоксиацетонфосфат, и последний
отправляется на синтез жиров (см "Синтез триацилглицеридов").
Второй этап гликолиза – это освобождение
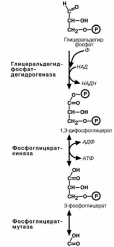
энергии, содержащейся в глицеральдегидфосфате,
и запасание ее в форме АТФ.
Шестая реакция гликолиза – окисление глице-
ральдегидфосфата и присоединение к нему фос-
форной кислоты приводит к образованию макроэр-гического соединения 1.3-дифосфоглицериновой
кислоты.
В седьмой реакции энергия фосфоэфирной связи, заключенная в 1,3-дифосфоглицерате тра-
тится на образование АТФ. Реакция получила до-
полнительное название –реакция субстратного фосфорилирования, что уточняет источник энергии
для получения макроэргической связи в АТФ (суб-
страт) в отличие от окислительного фосфорилиро-вания (электрохимический градиент ионов водоро-
да на мембране митохондрий).
Подобных реакций в клетке всего три – 1) ука-занная реакция, 2) пируваткиназная реакция, деся-тая реакция гликолиза (см ниже), 3) тиокиназная
реакция цикла трикарбоновых кислот.
Восьмая реакция – синтезированный в преды-
дущей реакции 3-фосфоглицерат изомеризуется в
2-фосфоглицерат.
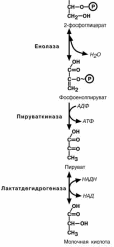
Девятая реакция – отрыв молекулы воды от
2-фосфоглицериновой кислоты приводит к образо-
ванию еще одной макроэргической фосфоэфирной связи.
Еще одна реакция субстратного фосфорили-рования – десятая реакция гликолиза – заключа-
ется в переносе макроэргического фосфата с фос-
фоенолпирувата на АДФ.
Последняя реакция , одиннадцатая, образова-ние молочной кислоты из пирувата под действием
лактатдегидрогеназы. Важно то, что эта реакция
осуществляется только в анаэробных условиях. Эта реакция необходима клетке, так как НАДН, об-
разующийся в 6-й реакции, в отсутствие кислорода не может поступать и окисляться в митохондриях.
При наличии кислорода пировиноградная ки-
слота превращается в ацетил-S-КоА.
ГЛИКОЛИТИЧЕСКАЯ ОКСИРЕДУКЦИЯ
Процесс циклического восстановления и окис-
ления НАД в реакциях анаэробного гликолиза полу-
чил название гликолитическая оксиредукция.
В анаэробных условиях образуемый в шестой, ГАФ-дегидрогеназной реакции, НАДН используется
в последней реакции для восстановления пирувата до лактата. Образуемый таким образом НАД опять возвращается в шестую реакцию.
В аэробных условиях НАДН отдает свои атомы водорода на челночные систе-
мы (см ниже) для их передачи в дыхательную цепь митохондрий.
ЭНЕРГЕТИЧЕСКИЙ ЭФФЕКТ ОКИСЛЕНИЯ ГЛЮКОЗЫ
На подготовительном этапе
на активацию глюкозы затра-
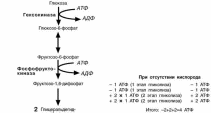
чивается 2 молекулы АТФ, ка-ждая из которых оказывается
на триозе – глицеральдегид-
фосфате и диоксиацетонфос-фате. В следующий второй
этап входит только глицераль-
дегидфосфат, но его уже две молекулы, каждая из которых
окисляется до пирувата с об-
разованием 2-х молекул АТФ
реакциях субстратного фос-
форилирования. Таким обра-
зом, суммируя, получаем, что
на пути от глюкозы до пирувата
чистом виде образуется 2
молекулы АТФ.
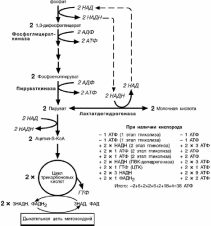
Однако надо иметь в виду
и глицеральдегидфосфат-
дегидрогеназную реакцию, из которой выходит НАДН. Если
условия анаэробные, то он
используется в лактатдегидро-геназной реакции – окисляется
для образования лактата и в
получении АТФ не участвует.
Если же имеется кислород
– НАДН направляется в мито-хондрию, на процессы окисли-
тельного фосфорилирования, и
там его окисление приносит дивиденды в форме АТФ.
ЭФФЕКТ ПАСТЕРА
Эффект Пастера – это снижение потребления глюкозы и прекращение продукции молочной кислоты клеткой в присутствии кислорода.
Луи Пастер, занимавшийся вопросами виноделия, наблюдал подобный фено-мен при производстве вина. Забегая вперед, отметим, что спиртовое броже-ние весьма похоже на гликолиз, только вместо молочной кислоты из пирува-та образуется спирт.
Биохимический механизм эффекта Пастера заключается в конкуренции между
пируватдегидрогеназой, превращающей пируват в ацетил-S-КоА, и лактатдегид-
рогеназой, превращающей пируват в лактат. При отсутствии кислорода внутрими-тохондриальные процессы дыхания не идут, цикл трикарбоновых кислот тормозится
и накапливающийся ацетил-S-КоА ингибирует ПВК-дегидрогеназу. В этой ситуации
пировиноградной кислоте не остается ничего иного как превращаться в молочную. При наличии кислорода ингибирование ПВК-дегидрогеназы прекращается и она, об-
ладая большим сродством к пирувату, выигрывает конкуренцию.
Важно то, что пировиноградная кислота является для клетки токсичным
веществом, и клетке необходимо избавиться от нее каким угодно образом. Так как через мембраны она не проходит, то обезвреживание достигается
превращением пирувата 1) в лактат; 2) в ацетил-S-КоА; 3) в аланин (см "Ала-нинаминотрансфераза"), 4) в оксалоацетат.
Иллюстрацией к сказанному служит от-личие изоферментов лактатдегидроге-наз (ЛДГ) друг от друга. Сердечный
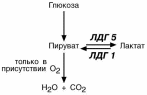
изофермент ЛДГ-1 обладает высоким сродством к молочной кислоте и "стре-
мится" поднять концентрацию пирува-та с целью его включения в ЦТК и полу-чения энергии для деятельности мио-
карда. Большое количество митохонд-
рий и поступление сюда лактата из других органов обеспечивает работу сердца при аэробных условиях. При не-хватке кислорода свойства ЛДГ-1 не из-
менятся, он по-прежнему будет сдвигать реакцию в сторону продукции пиро-
виноградной кислоты. Изофермент скелетной мышцы ЛДГ -5 обладает высо-ким сродством к пирувату, при отсутствии кислорода в клетке быстро и эффективно превращает его в лактат, легко проникающий сквозь мембраны. Таким образом, в анаэробных условиях сильнее будет страдать сердечная мышца, что, собственно говоря, и наблюдается в медицинской практике.
ЧЕЛНОЧНЫЕ СИС-ТЕМЫ
Челночные системы –
механизм доставки обра-
зованных в гликолизе ио-
нов Н+ (в составе НАДН)
из цитозоля в митохонд-рию.
Так как сама молекула
НАДН через мембрану не проходит, природа поза-
ботилась о том, чтобы
создать системы, прини-
мающие этот водород в цитоплазме и отдающие его в матриксе митохонд-рий.
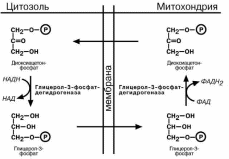
Определены две основные челночные системы – глицеролфосфатная и малат-
аспартатная.
Глицеролфосфатный челнок активен в печени и в быстрых мышечных волок-нах. Его ключевыми ферментами являются изоферменты глицерол-3-фосфат-
дегидрогеназы, цитоплазматический и митохондриальный. Они отличаются своими
коферментами: у цитоплазматической формы – НАД, у митохондриальной – ФАД. Метаболиты гликолиза – диоксиацетонфосфат и НАДН образуют глицерол-3-
фосфат, поступающий в матрикс митохондрий, где он окисляется с образованием
ФАДН 2. Далее ФАДН2 направляется в дыхательную цепь и используется для полу-чения энергии.
Малат-аспартатный челнок более сложен: постоянно идущие в цитоплазме ре-
акции трансаминирования аспартата поставляют оксалоацетат, который под дейст-вием цитозольного пула малатдегидрогеназы восстанавливается до яблочной ки-
слоты. Последняя антипортом с α-кетоглутаратом проникает в митохондрии и, явля-
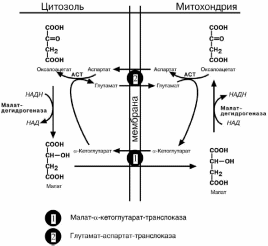
ясь метаболитом ЦТК, окисляется в оксалоацетат с образованием НАДН. Так как
мембрана митохондрий непроницаема для оксалоацетата, то он аминируется до ас-
парагиновой кислоты, которая в обмен на глутамат выходит в цитозоль.
ГЛЮКОНЕОГЕНЕЗ
Глюконеогенез – это синтез глюкозы из неуглеводных компонентов: лактата, пирувата. глицерола, метаболитов цикла Кребса, аминокислот. Все аминокислоты,
кроме кетогенных лейцина и лизина, способны участвовать в синтезе глюкозы. Неко-
торые из них – глюкогенные – полностью включаются в молекулу глюкозы, некото-рые – смешанные – частично.
организме всегда существует потребность в глюкозе:
для эритроцитов глюкоза является единственным источником энергии,
нервная ткань потребляет 120 г глюкозы в сутки, притом эта величина не за-висит от интенсивности ее работы. Только в экстремальных ситуациях (дли-
тельное голодание) она способна получать энергию из неуглеводных источ-
ников,
глюкоза играет весомую роль для поддержания необходимых концентраций
метаболитов цикла трикарбоновых кислот (в первую очередь оксалоацета-
та).
Таким образом, при определенных ситуациях – при низком содержании углево-
дов в пище, голодании, длительной физической работе – организм должен иметь
возможность получить глюкозу. Это достигается процессом глюконеогенеза. Кроме получения глюкозы, глюконеогенез обеспечивает и уборку "шлаков" – лак-
тата, образованного при мышечной работе и в эритроцитах, и глицерола, являюще-
гося продуктом липолиза в жировой ткани.
Глюконеогенез лишь отчасти повторяет реакции окисления глюкозы. Как указы-
валось ранее, в гликолизе существуют три необратимые стадии: пируваткиназная
(десятая), фосфофруктокиназная (третья) и гексокиназная (первая). На этих стадиях существуют энергетические барьеры, которые обходятся с помощью специальных реакций.
Обход десятой реакции гликолиза
На этом этапе глюконеогенеза работают два основных фермента – в митохонд-
риях пируваткарбоксилаза и в цитозоле фосфоенолпируват-карбоксикиназа.
Пируваткарбоксилаза превращает пировиноградную кислоту в оксалоацетат. Необ-
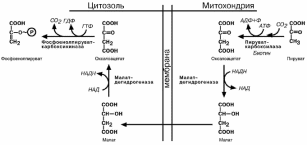
ходимо отметить, что эта реакция идет в клетке постоянно, являясь анаплеротиче-
ской (пополняюшей) реакцией ЦТК. Далее оксалоацетат должен попасть в цитозоль
и превратиться в фосфоенолпируват. Однако дело осложняется непроницаемостью мембраны для оксалоацетата. Зато через мембрану может пройти малат, предшест-венник оксалоацетата по ЦТК. Так как в условиях недостаточности глюкозы в клетке активируется липолиз и окисление жирных кислот, то повышается количество НАДН в митохондриях. Этот избыток позволяет повернуть малатдегидрогеназную реакцию ЦТК вспять. Малат накапливается, выходит в цитозоль и здесь превращается в ок-салоацетат.
В цитоплазме фосфоенолпируват-карбоксикиназа
осуществляет превращение оксалоацетата в фосфоенол-
пируват, для реакции требуется энергия ГТФ. От молеку-лы отщепляется тот же углерод, что и присоединяется.
Обход третьей реакции гликолиза
Второе препятствие на пути синтеза глюкозы – фос-
фофруктокиназная реакция – преодолевается с помощью
фермента фруктозо-1,6-дифосфатазы. Этот фермент есть в почках, печени, поперечно-полосатых мышцах. Таким
образом, эти ткани способны синтезировать фруктозо-6-
фосфат и глюкозо-6-фосфат.