Материал: 4808
11
Задача данной работы состоит в том, чтобы познакомить студентов с изучением наследуемости количественных признаков в популяциях растений.
Определение коэффициента наследуемости в широком смысле
Задание 1. Рассчитать коэффициент наследуемости в широком смысле у трех клонов тополя по темпам роста в высоту.
Материал и оборудование
Каждый студент получает параметры высот трех клонов тополя или другой породы. Тетрадь, карандаш, ЭКВМ.
Пояснения к заданию. Принципиальной основой расчета Н2 на участке, где произрастают клоны тополя, является генотипическая однородность деревьев (саженцев) внутри клона и генотипическая разнородность клонов между собой. В этом случае фенотипическая изменчивость между деревьями одного клона будет экологической и генетической, то есть,
ph2 е2 g2 ,
где е2 - средовая (паратипическая) варианса,
g2 - генотипическая варианса
Изменчивость между саженцами одного клона, выраженная фенотипической вариансой, обусловлена различиями между генотипами клонов и неоднородностью экологических условий, то есть
2ph g2 е2 . Тогда g2 2ph е2 .
Отсюда коэффициент наследуемости (Н2) равен
|
2 |
2 |
|
Н 2 |
ph |
е |
. |
|
|
||
|
2 |
||
|
|
ph |
|
Рассчитываются средние значения признака по каждому клону ( хк ) и
суммы квадратов отклонений вариант от среднего значения клона
хi хк 2 .
Фенотипическая и экологическая дисперсия определяются по формуле
хi хк 2 , n 1
где хi – значение признака в клоне; хк – средняя арифметическая;
12
n – общее число наблюдений.
Пример. Определить коэффициент наследуемости высоты клонов тополя (табл. 1).
Таблица 1
Вычисление экологической дисперсии ( е2 )
|
|
Клон № 1 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Клон № 2 |
|
|
|
|
|
|
|
|
|
|
|
|
|
Клон № 3 |
|
|
|
|
|
|||||||||||||||||||||||
Высот |
х |
i |
х |
к |
|
(х |
i |
х |
к |
)2 |
|
Высот |
|
|
х |
i |
х |
к |
|
(х |
i |
х |
к |
)2 |
Высот |
|
х |
i |
х |
к |
(х |
i |
х |
к |
)2 |
||||||||||||||||||||||||
а, м |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
а, м |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
а, м |
|
|
|
|
|
|
|
|
||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||
( хi ) |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
( хi ) |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
( хi ) |
|
|
|
|
|
|
|
|
|
|
|
|
||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||
10 |
|
|
|
|
-1 |
|
|
|
|
|
1 |
|
|
|
|
12 |
|
|
|
|
|
|
|
-1 |
|
|
|
|
1 |
|
|
|
|
|
|
13 |
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|||||||||||
13 |
|
|
|
|
+2 |
|
|
|
|
4 |
|
|
|
|
14 |
|
|
|
|
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|
|
|
11 |
|
|
|
|
-1 |
|
|
|
|
1 |
|
|
|
|||||||||||
11 |
|
|
|
|
0 |
|
|
|
|
|
0 |
|
|
|
|
13 |
|
|
|
|
|
|
|
0 |
|
|
|
|
|
0 |
|
|
|
|
|
|
10 |
|
|
|
|
-2 |
|
|
|
|
4 |
|
|
|
|||||||||
12 |
|
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|
13 |
|
|
|
|
|
|
|
0 |
|
|
|
|
|
0 |
|
|
|
|
|
|
13 |
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|||||||||||
10 |
|
|
|
|
-1 |
|
|
|
|
|
1 |
|
|
|
|
14 |
|
|
|
|
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|
|
|
12 |
|
|
|
|
0 |
|
|
|
|
0 |
|
|
|
||||||||||
10 |
|
|
|
|
-1 |
|
|
|
|
|
1 |
|
|
|
|
12 |
|
|
|
|
|
|
|
-1 |
|
|
|
|
1 |
|
|
|
|
|
|
13 |
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|||||||||||
|
х |
|
|
|
10 13 11 12 10 10 |
11 |
|
|
|
|
2 |
|
|
|
8 |
|
|
|
1,6 |
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||
1 |
|
|
|
|
|
|
|
|
|
|
|
6 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
1 |
|
6 |
1 |
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||
|
х |
|
|
|
12 14 13 13 14 12 |
13 |
|
|
|
|
|
2 |
|
|
|
|
4 |
|
|
|
0,8 |
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||||||||
|
2 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
6 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
2 |
|
|
|
6 1 |
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||
|
х |
|
|
|
13 11 10 13 12 13 |
12 |
|
|
|
|
|
3 |
|
|
8 |
|
|
|
1,6 |
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||||||||||
|
3 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
6 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
3 |
|
|
|
|
6 1 |
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||
|
|
2 |
|
1,6 0,8 1,6 |
|
1,33 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||||
|
е |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||
|
|
|
|
|
|
|
|
|
3 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Таблица 2 |
||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Вычисление фенотипической дисперсии ( ph2 ) |
|
|
|
|
|
|
|
|
|||||||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||||||||||||||||||||||
Высота, м ( хi ) |
|
|
|
х |
i |
х |
к |
|
(х |
i |
х |
к |
)2 |
|
|
Высота, м ( хi ) |
|
х |
i |
х |
к |
|
(х |
i |
х |
к |
)2 |
||||||||||||||||||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||||||||||||
10 |
|
|
|
|
|
|
|
|
|
|
-2 |
|
|
|
|
|
|
|
|
|
4 |
|
|
|
|
|
|
|
|
|
|
|
|
13 |
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|||||||||||||
13 |
|
|
|
|
|
|
|
|
|
|
+1 |
|
|
|
|
|
|
|
|
|
1 |
|
|
|
|
|
|
|
|
|
|
|
|
14 |
|
|
|
+2 |
|
|
|
|
4 |
|
|
|
|||||||||||||
11 |
|
|
|
|
|
|
|
|
|
|
-1 |
|
|
|
|
|
|
|
|
|
1 |
|
|
|
|
|
|
|
|
|
|
|
|
12 |
|
|
|
|
|
0 |
|
|
|
|
0 |
|
|
|
|||||||||||
12 |
|
|
|
|
|
|
|
|
|
|
|
0 |
|
|
|
|
|
|
|
|
|
0 |
|
|
|
|
|
|
|
|
|
|
|
|
13 |
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
||||||||||||
10 |
|
|
|
|
|
|
|
|
|
|
-2 |
|
|
|
|
|
|
|
|
|
4 |
|
|
|
|
|
|
|
|
|
|
|
|
11 |
|
|
|
|
-1 |
|
|
|
|
1 |
|
|
|
||||||||||||
10 |
|
|
|
|
|
|
|
|
|
|
-2 |
|
|
|
|
|
|
|
|
|
4 |
|
|
|
|
|
|
|
|
|
|
|
|
10 |
|
|
|
|
-2 |
|
|
|
|
4 |
|
|
|
||||||||||||
12 |
|
|
|
|
|
|
|
|
|
|
|
0 |
|
|
|
|
|
|
|
|
|
0 |
|
|
|
|
|
|
|
|
|
|
|
|
13 |
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
||||||||||||
14 |
|
|
|
|
|
|
|
|
|
|
+2 |
|
|
|
|
|
|
|
|
|
4 |
|
|
|
|
|
|
|
|
|
|
|
|
12 |
|
|
|
|
|
0 |
|
|
|
|
0 |
|
|
|
|||||||||||
13 |
|
|
|
|
|
|
|
|
|
|
+1 |
|
|
|
|
|
|
|
|
|
1 |
|
|
|
|
|
|
|
|
|
|
|
|
13 |
|
|
|
+1 |
|
|
|
|
1 |
|
|
|
|||||||||||||
Сумма |
|
|
|
|
|
|
- |
|
|
|
|
|
|
|
|
|
|
|
- |
|
|
|
|
|
|
|
|
|
|
|
216 |
|
|
|
|
|
- |
|
|
|
|
32 |
|
|
|
||||||||||||||
|
|
|
|
|
|
|
13 |
|
|
|
х |
216 |
12 ; |
|
|
|
|
|
|||
18 |
|
|
|
|
|
|||||
|
|
|
|
|
|
|
|
|
||
ph2 |
|
32 |
|
1,88 |
; |
Н 2 |
1,88 1,33 |
0,293. |
||
18 1 |
1,88 |
|
||||||||
|
|
|
|
|
|
|
||||
Вывод. Коэффициент наследуемости равен 0,293, то есть наследственные различия между клонами составляют 29,3 %; изменчивость высоты деревьев в большей степени обусловлена условиями внешней среды
(70,7 %).
Выполнение задания. Выполнить расчет Н2 на полученные от преподавателя параметры клонового потомства тополей и сделать соответствующие выводы.
Определение коэффициента наследуемости в узком смысле
Задание 2. Рассчитать коэффициент наследуемости в узком смысле у полусибового потомства плюсовых деревьев сосны обыкновенной.
Материал и оборудование:
Каждый студент получает от преподавателя параметры плюсовых деревьев сосны обыкновенной или другой породы, сеянцы (полусибовое потомство), линейка.
Пояснения к заданию. Коэффициент наследуемости в узком смысле (h2) рассчитывают для растений, размножаемых семенным путем. Найти связь количественных признаков в системе родители-потомки очень сложно, так как количественные признаки определяются аддитивным (суммарным, полигенным) действием генов. Коэффициент наследуемости (h2) может быть вычислен различными способами. Наиболее распространен способ
вычисления как удвоенный коэффициент корреляции h 2 2rор .
Пример. Рассчитать h2 высоты у однолеток сосны обыкновенной, если известны высоты материнских деревьев и средние высоты семенного потомства каждого дерева.
Рассчитываются суммы квадратов отклонений (табл. 7.3), вычисляются варианты признака у родителей
2 |
хi х 2 |
|
44,11 |
6,30 |
|
|||
|
|
|
|
|||||
х |
|
n 1 |
|
7 |
|
|
|
|
|
|
|
|
|
|
|||
и потомства |
|
|
|
|
|
|
|
|
y2 |
|
yi y 2 |
|
|
4,93 |
0,70 |
, |
|
n 1 |
|
7 |
|
|||||
|
|
|
|
|
|
|||
а также коварианса
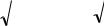
14
СOV |
|
xi x yi y |
|
3,35 |
0,48 |
, |
|
n 1 |
7 |
|
|||||
|
|
|
|
|
|
||
коэффициент корреляции между признаком родителей и потомков
rOP |
|
|
COV |
|
|
|
0,48 |
|
0,228 |
, |
||
|
|
|
|
|
|
|
||||||
X2 |
Y2 |
6,30 0,70 |
||||||||||
|
|
|
|
|
|
|
|
|||||
коэффициент наследуемости
h2 2 rop 0,456.
Вывод. Следовательно, на основании испытания материнских деревьев по их семенному потомству можно предполагать, что аддитивное участие генов в изменчивости сеянцев по их высоте довольно высоко (46 %), хотя изучению подвергалось полусибовое потомство.
Из-за сильного материнского эффекта значения h2, вычисленные таким способом, часто искажаются. Иногда получаются минусовые значения h2 и больше 1 по следующим причинам:
1)при сильном взаимодействии генотипа со средой. Если разные генотипы реагируют на изменения среды не одинаково, то потомство генотипически лучших деревьев может расти в новых условиях не лучше, а даже хуже, чем потомство минусовых деревьев. В этом случае коэффициент
корреляции между высотами родителей и потомств будет отрицательной, следовательно, отрицательный и h2;
2)при возникновении сильных эффектов от взаимодействия родительских генов в потомстве. Например, при взаимодействии генов двух
средних по росту родителей возникает гетерозисное потомство. Тогда rop и h2 также могут быть отрицательными.
Выполнение задания. На полученные от преподавателя параметры сеянцев полусибового потомства плюсовых деревьев и параметры материнских деревьев выполнять расчет коэффициента наследуемости в узком смысле (h2). Сделать вывод об обусловленности изучаемого признака наследственным фактором и условиями внешней среды.
15
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Таблица 3 |
|
|
|
|
|
|
|
|
|
Расчет сумм квадратов отклонений |
|
|
|
|
|
|
|
|
|
|
||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
Высота |
Средняя |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||
материнских |
высота |
xi x |
|
yi y |
|
xi x 2 |
|
yi |
y 2 |
|
|
|
xi x yi y |
|
|
||||||||||
деревьев |
однолеток |
|
|
|
|
|
|
|
|
||||||||||||||||
( xi ),м |
сосны ( yi ),см |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
27,6 |
5,7 |
1,2 |
|
-1,2 |
|
|
|
1,44 |
|
|
|
1,44 |
|
-1,44 |
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
28,7 |
7,8 |
2,3 |
|
0,9 |
|
|
|
5,29 |
|
|
|
0,81 |
|
2,07 |
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
27,0 |
7,2 |
0,6 |
|
0,3 |
|
|
|
0,36 |
|
|
|
0,09 |
|
0,18 |
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
15 |
|||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
35 |
|
23,0 |
7,1 |
-3,4 |
|
0,2 |
|
|
|
11,56 |
|
|
|
0,04 |
|
-0,68 |
|
||||||||||
|
|
|
|
|
|
|
|
|
|
||||||||||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
24,6 |
8,0 |
-1,8 |
|
1,1 |
|
|
|
3,24 |
|
|
|
1,21 |
|
-1,98 |
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
23,0 |
5,9 |
-3,4 |
|
1,0 |
|
|
|
11,56 |
|
|
|
1,00 |
|
3,40 |
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
28,9 |
7,2 |
2,5 |
|
0,3 |
|
|
|
6,25 |
|
|
|
0,09 |
|
0,75 |
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
28,5 |
7,6 |
2,1 |
|
0,5 |
|
|
|
4,41 |
|
|
|
0,25 |
|
1,05 |
|
|
|||||||||
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
хi 211,3 |
yi 55,5 |
|
|
xi |
|
2 44,11 |
yi |
|
2 |
4,93 |
xi |
|
|
yi |
|
3,35 |
|
||||||||
|
|
x |
y |
x |
y |
|
|||||||||||||||||||
|
|
2,64 |
|
|
6,9 |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
х |
y |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|||