Материал: 4_Lektsia_Mobilizatsia_lipidov_iz_zhirovoy_tkani
МЕТАБОЛИЗМ ЖИРНЫХ КИСЛОТ
β-Окисление жирных кислот
β-окисление – это аэробный процесс катаболизма жирных кислот,
протекающий в матриксе митохондрий путём последовательного отщепления двууглеродных фрагментов в виде ацетил-SКоА.
Окислению жирных кислот в митохондриях предшествует: 1. Активация ВЖК в цитоплазме.
2.Транспорт её через мембрану в матрикс митохондрий.
Активация жирных кислот
Активации подвергаются свободные жирные кислоты, поступающие в цитозоль из двух источников:
1.В неэтерифицированной форме (НЭЖК) в комплексе с альбумином доставляются кровью;
2.Другим источником ВЖК служат цитозольные ТАГ, расщепляющиеся под действием цитозольной ТАГ-липазы.
НЭЖК+ |
Цитозольные |
|
альбумины |
ТАГ |
ЛП |
|
липаза |
Ацетил- |
|
|
|
Свободные жирные |
SKoA |
|
|
||
кислоты |
|
|
Формирование пула свободных жирных кислот клеток
В активации принимают участие:
1.АТФ;
2.Коэнзим А (HSKoA);
3.Фермент – ацил-КоА-синтетаза (тиокиназа).
Реакция протекает в области наружной мембраны митохондрии.
Существует несколько изоформ фермента ацил-SKoA-синтетазы: одни катализируют активацию жирных кислот, содержащих 2-3 атома углерода,
другие – от 4 до 12 атомов, третьи – от 12 и более атомов углерода.
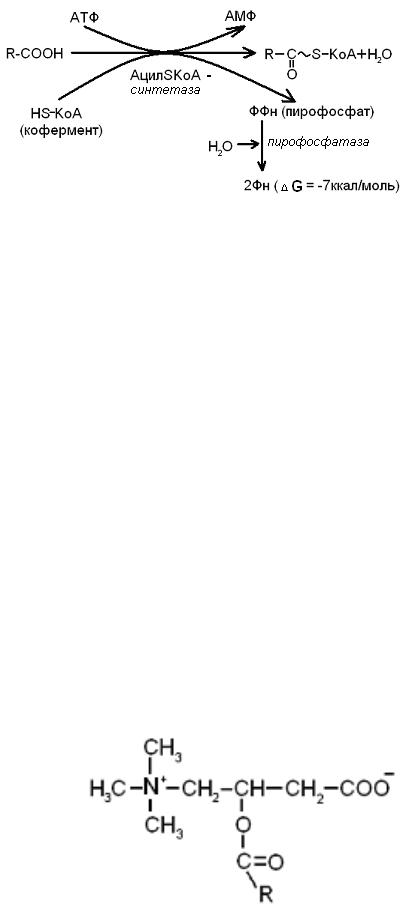
Активация высших жирных кислот
В результате активации ВЖК образуется:
1.Ацил–SКoA (общее название активированной формы жирной кислоты) с
высокоэнергетической тиоэфирной связью;
2.АМФ;
3.ФФн (пирофосфат).
На последней ступени процесс легко обратим, так как изменение свободной энергии очень мало (ΔG = 0,2 ккал/моль). Однако, присутствующая в среде пирофосфатаза расщепляет макроэргическую связь пирофосфата и обеспечивает необратимость реакции активации жирной кислоты.
Транспорт ацил-KoA в матрикс митохондрий
Переносчиком ацильных групп (ацил-KoA) из цитоплазмы в матрикс митохондрий является карнитин. Карнитин – синтезируется из лизина и метионина с участием витамина С. Он имеет заряд, что помогает карнитину двигаться между заряженными структурами мембран.
R - CO - S - KoA +(CH3)3N+ - CH2 –CH (OH) - CH2 –CO OH ↔ HSKoA +
Структура ацилкарнитина
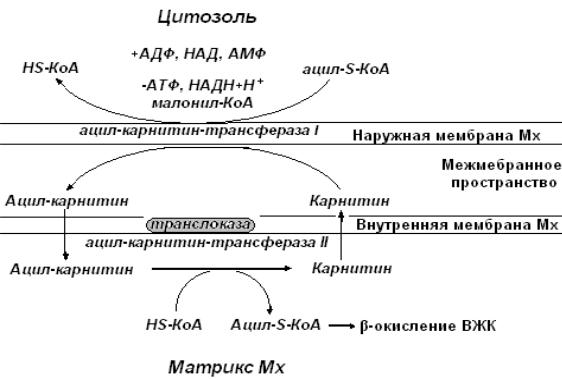
В митохондриальную ацилкарнитин – транспортную систему входят:
1.Транслоказа – белок, который встроен во внутреннюю мембрану митохондрий. Он осуществляет транспорт карнитина через эту мембрану.
2.Два фермента, катализирующие присоединение и отщепление ацильного остатка к карнитину. Это ацилкарнитинтрансфераза I, локализованная в
наружной мембране, и |
ацилкарнитинтрансфераза II, находящаяся |
на |
внутренней поверхности внутренней мембраны митохондрий. |
|
|
Карнитин соединяется |
с ацил-S-KoA с образованием ацил-карнитина (E – |
|
ацилкарнитин-трансфераза |
I) и высвобождением НS-КоА, который уходит в |
|
цитозоль. Ацил-карнитин проходит через межмембранное пространство к наружной стороне внутренней мембраны митохондрии и транспортируется с помощью транслоказы на внутреннюю поверхность внутренней мембраны митохондрий, где фермент – ацил-трансфераза II катализирует перенос ацильного остатка на внутри митохондриальный КоА-SH с образование ацил-S-KoA и
свободного карнитина. Ацил-SKoA включается в реакции β-окисления, а
свободный карнитин возвращается на наружную сторону внутренней мембраны митохондрий той же транслоказой.
Транспорт ацил-КоА через митохондриальную мембрану в матрикс

Активация низших жирных кислот (с количеством углеродных атомов от 4 до
11) и их окисление могут происходить в митохондриях независимо от карнитина.
Длинноцепочечные ВЖК не могут проникать в митохондрии, если не образуют ацилкарнитинпроизводных и они нуждаются в переносчике (карнитин).
β-окисление ЖК
Цикл β-окисления состоит их четырёх реакций.
1. Реакции дегидрирования (фермент –ацил-КоА-дегидрогеназа) происходит
отщепление двух атомов водорода от α- и β-углеродных атомов с образованием
2 транс-еноил-КоА и восстановленный ФАДН2. Его окисление в дыхательной цепи обеспечивает синтез 2-х АТФ. Природные ненасыщенные ЖК образуют
цис-конфигурацию двойной связи.
2. Реакции гидратации (фермент – гидратаза), образуется L-3-гидроксиацил-
КоА. У ненасыщенных жирных кислот образуется D-изомер.
3. Реакции дегидрирования (фермент: 3-гидроксиацил-КоА-дегидрогеназа,
кофермент – НАД+). В ходе реакции образуется 3-кетоацил-КоА. В результате НАД+ переходит в НАДН+Н+. Который в дыхательной цепи обеспечивает синтез
3 АТФ.
4. Тиолитическое расщепление 3-кетоацила-КоА, на ацетил-SКоА и укороченный ацил-SКоА (фермент – тиолаза).
Укороченный ацил-SКоА вступает в следующий цикл, а ацетил-S-КоА используется либо на синтез кетоновых тел, либо сгорает в ЦТК.
Этапы катаболизма ЖК на примере полного окисления С16:0
1 этап. β-окисление – сопряжен с переносом электорнов и протонов по дыхательной цепи от ФАДН2 и НАДН+Н+ к О2.
Ацил-SКоА
ФАДН2 → 2АТФ НАДН+Н+ → 3АТФ
Ацетил-SКоА
1 цикл β-окисления обеспечивает синтез 5 молекул АТФ.
Количество циклов вычисляется по формуле (n/2 – 1), где n = числу атомов углерода в молекуле жирной кислоты.
При распаде С16:0 число циклов = 7:
(16/2 - 1) = 8-1 = 7
7 циклов → 7×5 = 35 АТФ.
2 этап: Цикл трикарбоновых кислот Ацетил-SКоА
ЦТК
ЦПЭ
12 АТФ
3 этап. Окислительное фосфорилирование
1 молекула ацетил-КоА, проходя через ЦТК, сопряженного с дыхательной цепью, обеспечивает синтез 12 АТФ.
Количество молекул ацетил-SКоА вычисляется по формуле n/2, где n - числo
атомов углерода.
При распаде С16:0 образуется: 16/2 = 8 молекул ацетил-КоА. 8 молекул ацетил-КоА дают 8×12 = 96 АТФ.
Итого: 35 АТФ + 96 АТФ – 1 АТФ = 130 АТФ (950 ккал)
β-окисление ОПК на активацию ВЖК
Суммарная реакция β-окисления активированной пальмитиновой кислоты можно представить следующим образом.