Материал: 4_Lektsia_Mobilizatsia_lipidov_iz_zhirovoy_tkani
1 ацетил-КоА + 7 малонил –SкоА + 14 НАДФН+Н+ → С16:0 + 7СО2 + 6Н2О + 8КоА-SН + 14НАДФ+
Источники НАДФН для биосинтеза ВЖК
1. Пентозофосфатный путь окисления глюкозы (Е – глюкозо-6-фосфат-
дегидрогеназа, Е – 6-фосфоглюконат-дегидрогеназа), поставляет 40% НАДФН2;
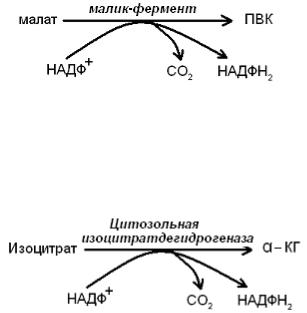
2. Дегидрирование малата малик-ферментом, поставляет 50% НАДФН2;
Реакция, катализируемая «малик-ферментом»
3. Дегидрирвание изоцитрата цитозольной НАДФ-зависимой изоцитратдегидрогеназой. Поставляет 10% НАДФН2.
Реакция, катализируемая цитозольной изоцитратдегидрогеназой
Источником изоцитрата является цитрат, поступивший из митохондрий по цитратному челночному механизму. Фермент, катализирующий превращение цитрата в изоцитрат в цитозоле – цитозольная аконитаза.
Синтез С18:0, С18:1 в организме человека
В клетках животных С16:0 служит предшественником других жирных кислот
(в основном С18:0). Удлинение С16:0 происходит с участием малонил-SКоА.
Последовательность реакций сходна с той, что происходит при синтезе С16:0.
Радикал пальмитиновой кислоты (С16:0) удлиняется на 2 углеродных атома,
донором которых служит малонил-КоА.
Ферменты, участвующие в элонгации могут использовать в качестве субстратов не только С16:0, но и другие жирные кислоты. Поэтому в организме могут
синтезироваться не только стеариновая кислота, но и жирные кислоты с большим числом атомов углерода (С22:0, С24:0).
Включение двойных связей в жирные кислоты называется десатурацией.
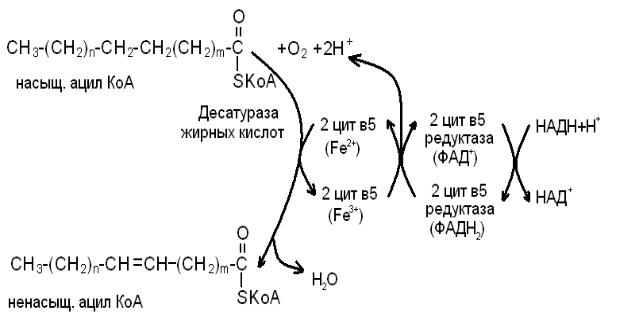
Образование двойных связей в радикалах жирных кислот происходит в эндоплазматическом ретикулуме в результате реакциях с участием:
1.Десатуразы жирных кислот; 2. Молекулярного кислорода; 3.
НАДН+Н+; 4. Цитохрома В5; 5. ФАД-зависимой редуктазы цитохрома В5.
Реакции десатурации, происходящие в микросомах
Ферменты десатуразы жирных кислот организма человека не могут образовывать двойные связи в радикалах жирных кислот дистальнее девятого атома углерода,
поэтому жирные кислоты семейства ω-3 и ω-6 не синтезируются в организме, а
являются незаменимыми.
Регуляция синтеза жирных кислот
Главный регуляторный фермент: Ацетил-КоА карбоксилаза (катализирует превращение ацетил-КоА в малонил-КоА).
|
|
|
|
|
|
|
С 16:0 |
С 16:1 |
|
|
|
|
|
|
|
|
(пальмитиновая) |
(пальмит-олеиновая) |
|
|
|
|
|
|
|
|
С 18:0 |
|
|
|
|
|
|
|
|
|
(стеариновая) |
|
|
ω-3 ряд |
|
|
ω-6 ряд |
|
ω-9 ряд |
|
|
||
α-линоленовая |
Линолевая |
|
Олеиновая |
С 18:0 |
С 16:0 |
||||
18:3 |
9,12,15 |
18:2 |
9,12 |
|
18:1 |
|
|
||
|
|
|
|
|
|
||||
|
Ингибирует |
|
|
|
Ингибирует |
|
|
||
18:4 |
6,9,12,15 |
γ-линоленовая |
20:1 |
18:2 |
|
||||
|
|
|
|||||||
Октадекатриеновая |
18:3 |
6,9,12 |
|
β-эйкозаеновая |
β-линолевая |
||||
|
|
||||||||
К-та |
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
22:1 |
20:2 |
|
α-арахидоновая |
|
Эйкозатриеновая |
β-докозамоновая |
Эйкозадиеновая |
|||||
к-та (эйкозатетраеновая) |
|
к-та |
|
|
|
|
|||
20:4 |
6,9,12,15 |
|
|
20:3 |
8,11,14 |
|
|
|
|
|
|
|
|
|
|
|
|
||
|
|
|
|
|
|
|
24:1 |
|
20:3 |
|
|
|
|
|
|
|
β-тетракозаеновая |
β-эйкозатриеновая |
|
Эйкозапентаеновая |
|
|
|
|
|
|
|
||
20:5 |
5,8,11,14,17 |
|
γ-арахидоновая |
|
|
22:3 |
|||
|
|
|
|
||||||
|
|
|
|
|
20:4 |
5,8,11,14 |
|
Докозатриеновая |
|
|
|
|
|
|
|
|
|||
|
|
E-элонгаза |
|
|
|
|
|
22:4 |
|
|
|
|
|
|
|
|
|
докозатетраеновая |
|
22:5 |
|
|
|
|
22:4 |
|
|
|
|
α-докозапентаеновая |
|
|
γ-докозатетраеновая |
|
|
||||
24:5 |
24:4 |
E-десатураза |
Тетракозатетраеновая |
24:6 |
|
E-β-оксидаза |
24:5 |
|
Тетракозапентаеновая |
22:6 |
α-докозагексаеновая |
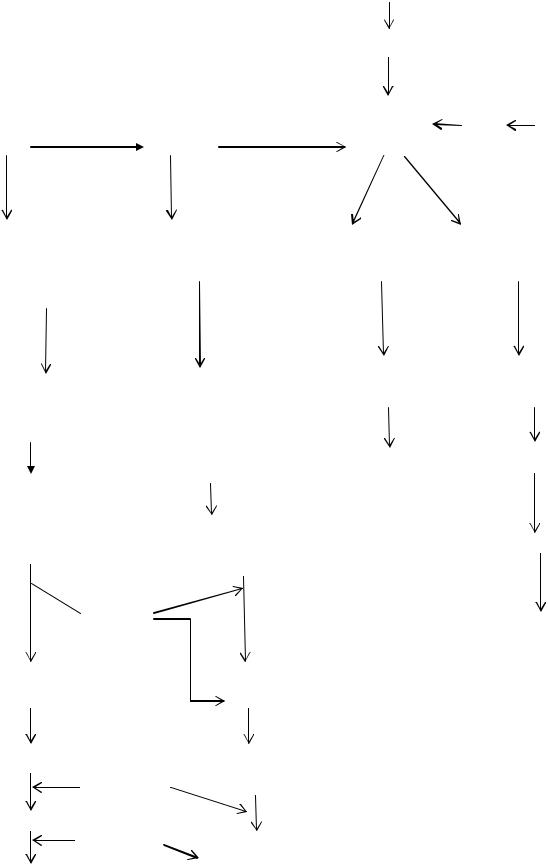
Схема синтеза жирных кислот в организме человека.
Метаболическая регуляция
1)ассоциация-диссоциация.
Внеактивной форме фермент представляет собой отдельные комплексы, каждый из которых состоит из четырех субъединиц.
Активаторы фермента: цитрат, который стимулирует ассоциацию субъединиц фермента, активируя его.
Ингибитор фермента: пальмитоил-КоА, вызывающим диссоциацию активного комплекса, и фермент ингибируется.
1)фосфорилирование-дефосфорилирование:
Фермент активен в дефосфорилированном состоянии и неактивен в фосфорилированном состоянии.
Гормональная регуляция
В постабсорбтивном периоде или при физической работе глюкагон или адреналин стимулируют фосфорилирование субъединиц фермента через аденилат-циклазную систему, действуя на протеинкиназу и синтез ЖК приостанавливается.
В абсорбтивный период инсулин активирует фосфатазу, которая дефосфорилирует фермент и начинается синтез жирных кислот.
При длительном употреблении пищи, богатой углеводами и бедной жирами,
происходит увеличение секреции инсулина, который стимулирует индукцию синтеза ферментов ацетил-КоА-карбоксилазы, синтазы жирных кислот,
цитратлиазы, изоцитрат-ДГ. Следовательно, избыток углеводов превращается в жиры.
Голодание или богатая жирами пища приводит к снижению синтеза ферментов, и соответственно, жиров.
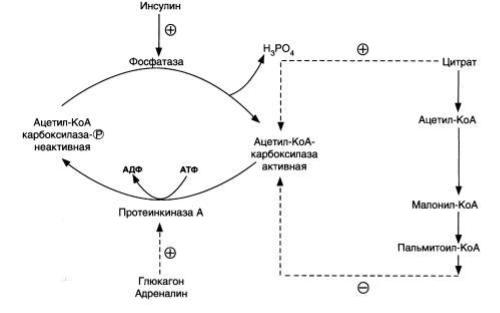
Регуляция синтеза ВЖК
Биологическое значение синтеза жирных кислот
1.Образовавшиеся жирные кислоты используются в синтезе ТАГ и ФЛ.
2.Значение биосинтеза жирных кислот заключается в трансформации избытка углеводов, поступающих в организм, и аккумулировании их энергии либо на непродолжительное время (для использования в период между приемами пищи),
либо на более длительный срок жировой тканью в составе ТАГ.