Материал: 4_Lektsia_Mobilizatsia_lipidov_iz_zhirovoy_tkani
O
βα //
R-CH2-CH2-C-SKoA |
|
ацил-SKoA |
Е1 |
ФАД |
1 |
|
|
|
ацил-КоА-дг. |
|
ЦПЭ |
|
|
|
|
ФАДН2 |
2АТФ |
O
βα //
|
R-CH=CH-C-SKoA |
2-трансеноил-SKoA |
Е2 |
Н-ОН (Н2О) |
2 |
гидратаза |
|
|
O
βα //
R-CH - CH2-C-SKoA |
L-3-гидроксиацил-SKoA |
||
׀ |
|
|
|
ОН |
НАД+ |
|
|
Е3 |
|
ЦПЭ |
|
3-гидроксиацил-КоА дг. |
НАДН+Н+ |
3АТФ |
3 |
O
βα //
R-C |
|
CH2-C-SKoA |
3-кетоацил-SKoA |
|
|||
// |
|
|
|
О |
|
|
|
Е4
тиолаза
H-SKoA |
4 |
|
|
О |
|
// |
|
СН3-С-SKоА |
синтез |
( ацетил-SКоА) |
кетоновых тел |
|
ЦТК → АТФ, СО2, Н2О |
O
//
R-C-SKoA
укороченный ацил (кетоацил-SKoA)
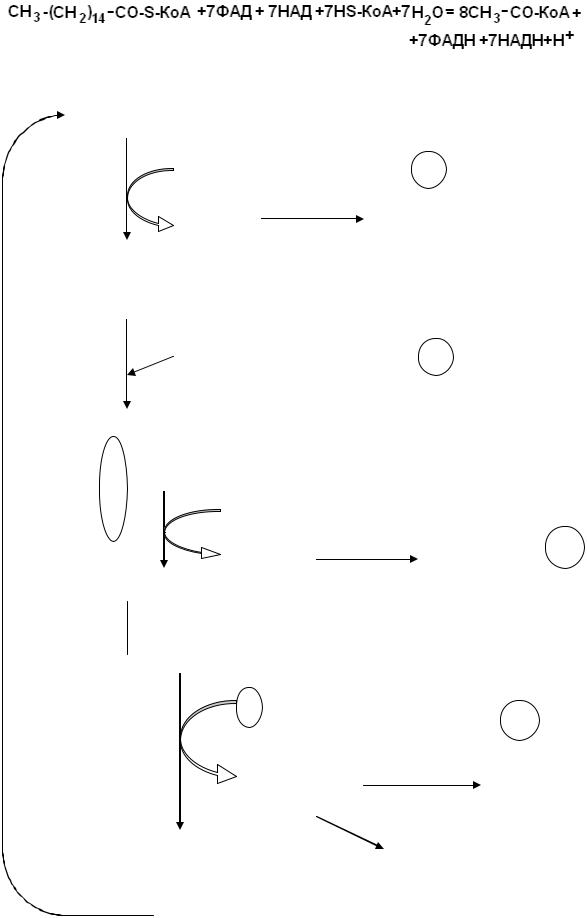
Рис. 34. Схема β-окисления ВЖК
Окисление ненасыщенных ВЖК
Окисление ненасыщенных высших жирных кислот идёт идентично этапам β-
окисления насыщенных ЖК, однако имеет некоторые особенности.
1. Если окислению подвергаются мононенасыщенные ЖК, то оборот цикла β-
окисления участка ВЖК, содержащего одну двойную связь, требует участия одного дополнительного фермента – еноил-КоА-изомеразы, который превращает цис-конфигурацию в транс-конфигурацию и одновременно смещает положение двойной связи вправо (или в α-положение). Дальнейшее окисление идёт аналогично окислению насыщенных ВЖК.
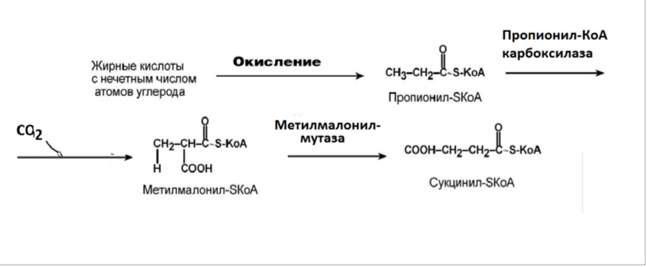
Окисление ВЖК с нечетным числом атомов углерода в молекуле.
1.Если окислению подвергаются полиненасыщенные ВЖК, то первая двойная связь подвергается окислению, аналогичному мононенасыщенным ВЖК.
2.Фрагмент углеродной цепи между двумя двойными связями подвергается дальнейшему окислению по схеме, аналогичной β-окислению
насыщенной ЖК. Каждый следующий фрагмент углеродной цепи,
содержащий двойную связь, находящуюся в цис-конфигурации, сразу подвергается гидратации под действием еноил-КоА-гидратазы. В
результате образуется стереоизомер β-гидроксиацила в D-конфигурации.
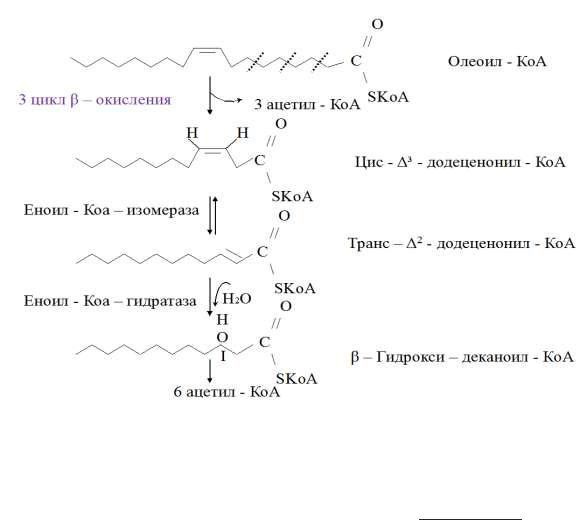
Окисление ненасыщенных ВЖК на примере олеиновой кислоты.
Для дальнейшего дегидрирования он изомеризуется в L-стереоизомер под действием второго дополнительного фермента – эпимеразы (еноил-КоА-
эпимераза).
Дальнейшее окисление идёт аналогично окислению насыщенных ВЖК.
α-окисление ВЖК
Этот путь катаболизма ВЖК характерен для ткани мозга и других отделов нервной ткани. Так окисляются ВЖК, содержащие более 20 атомов углерода. При
α- окислении ВЖК от углеводородной цепи отщепляется по одному атому углерода, выделяющемуся в виде СО2. Этот путь окисления не связан с синтезом АТФ. ВЖК с разветвлённой углеводородной цепью, например фитановая кислота
(3,7,11,15-тетраметилгексадекановая кислота), поступающая в организма с растительной пищей подвергаются α-окислению. В фитановой кислоте у каждого третьего атома углерода находится метильная группой, что делает невозможным
β-окисление данной кислоты.
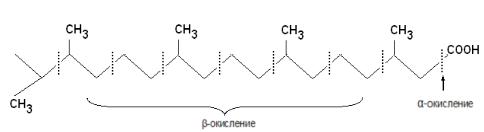
α-окисление ВЖК.
При α-окислении фитановой кислоты удаляется карбоксильная группа в виде СО2, а затем происходит цикл β-окисления.
ω-окисление жирных кислот
Этот тип окисления катализируется микросомальными гидроксилазами при участии цитохрома Р-450.
Ω-окисление жирных кислот активируется в тех случаях, когда активность β-
окисления жирных кислот снижена. Процесс ω-окисления жирных кислот протекает в эндоплазматическом ретикулуме.
Метильная группа в ω-положении превращается в СН2ОН-группу, которая затем окисляется до –COOH, в результате чего образуется дикарбоновая кислота,
которая расщепляется путем β-окисления обычно до адипиновой (С6) (НOOC- (CH2)4-COOН ) и субериновой (С8) (НOOC-(CH2)6 -COOН ) кислот, которые затем удаляются с мочой.
Регуляция β-окисления ВЖК
Регуляция процесса β- окисления ВЖК осуществляется на этапе транспорта жирных кислот через мембрану митохондрии, т.к. здесь действует регуляторный аллостерический фермент – карнитинацилтрансфераза I.
Положительными модуляторами фермента являются АДФ, АМФ, НАД+, а
отрицательными – АТФ, НАДН+Н+ и малонил-КоА - главный аллостерический ингибитор (он является субстратом удлинения цепи в синтезе жирных кислот).
Биологическое значение окисления жирных кислот
1. Процесс β-окисления используется для получения энергии клеткой (в ЦТК).
2. В процессе β-окисления образуется значительное количество ацетил-SКоА,
который может быть использован при достаточном количестве энергии для биосинтеза различных веществ (ХС и его производных, кетоновых тел и т.д.).
БИОСИНТЕЗ ВЖК
Биосинтез ВЖК происходит в период приёма пищи. Субстратом для биосинтеза жирных кислот является ацетил-КоА, который образуется из ПВК в процессе расщепления глюкозы (преимущественно углеводного происхождения)
и в меньшей мере – из глюкогенных аминокислот – аланина, цистеина, серина,
глицина и треонина, которые сначала превращаются в ПВК, а лизин – сразу в ацетил-S-КоА. Синтез ВЖК происходит в цитоплазме. В биосинтезе ВЖК выделяют 3 этапа
1. Транспорт ацетил-KoA из митохондрий в цитозоль.
Ацетил-SKoA транспортируется в цитоплазму с помощью цитратного челночного механизма. В матриксе митохондрий ацетил-S-KoA соединяется с оксалацетатом с образованием цитрата при действии цитратсинтазы.
Цитрат переносится в цитозоль при помощи специальной трикарбоксилат-
транспортной системы при условии достаточно высокой концентрации цитрата,
что возможно лишь при избытке углеводов в клетке.
В цитоплазме цитрат расщепляется при действии цитратлиазы на ОАА
(оксалоацетат) и ацетил-KoA, с затратой 1 молекулы АТФ и KoA-SH.
Цитрат + АТФ + KoA-SH → ацетил-S-KoA + АДФ + Фн + ОАА
Ацетил-КоА далее используется в синтезе ВЖК и ХС.
Образующийся в результате реакции ОАА не может вернуться самостоятельно в матрикс митохондрий, т.к. мембрана митохондрий для него непроницаема. ОАА последовательно окисляется при действии цитозольной НАД+-зависимой дегидрогеназы в малат, который либо самостоятельно попадает в матрикс митохондрий и там при действии митохондриальной НАД+-зависимой малатдегидрогеназы превращается в ОАА; либо в цитозоле подвергается окислительному декарбоксилированию при действии НАДФ+-зависимого малат-