Материал: Физиология растений лекция 1-10
До посева вносят 2/3 общей нормы удобрений. Они должны обеспечить растение на весь период развития элементами питания и повысить плодородие почвы. Припосевное удобрение в виде хорошо растворимых соединений вносят малыми дозами одновременно с посевом или посадкой растений для обеспечения минерального питания молодых растений. Послепосевные внекорневые подкормки, основанные на способности листьев поглощать минеральные соли в растворе, проводятся для усиления питания растений в наиболее важные периоды их развития.
Транспирация, ее значение для растений и методы изучения.
Транспирация — процесс движения воды через растение и её испарение через наружные органы растения, такие как листья, стебли и цветки.
Значения: Транспирация спасает растение от перегрева, который ему грозит на прямом солнечном свете; Транспирация создает непрерывный ток воды из корневой системы к листьям, который связывает все органы растения в единое целое; С транспирационным током передвигаются растворимые минеральные и частично органические питательные вещества, при этом чем интенсивнее транспирация, тем быстрее идет этот процесс.Основным транспирирующим органом является лист. Средняя толщина листа составляет 100—200 мкм. Паренхимные клетки листа расположены рыхло, между ними имеется система межклетников. Эпидермис — покровная ткань листа, состоит из компактно расположенных клеток, наружные стенки которых утолщены. Кроме того, листья большинства растений покрыты кутикулой. Удаление кутикулы во много раз повышает интенсивность испарения. Для соприкосновения листа с атмосферой имеются поры — устьица.
У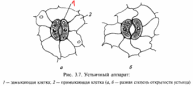 стьице —
это отверстие (щель), ограниченная двумя
замыкающими клетками. Каждая замыкающая
клетка устьица в отличие от клеток
эпидермиса имеет хлоропласта. В них
происходит фотосинтез, хотя с меньшей
интенсивностью, чем в клетках мезофилла.
Устьица — одно из оригинальных
приспособлений, обладающих способностью
открываться и закрываться в зависимости
от насыщенности замыкающих клеток
водой. Обычно устьичные отверстия
ограничены двумя замыкающими клетками,
стенки которых неравномерно утолщены.
У двудольных растений замыкающие клетки
бобовидной, или полулунной, формы, при
этом их внутренние прилегающие друг к
другу клеточные стенки более толстые,
а внешние — более тонкие.
Кутикулярная транспирация Снаружи листья имеют однослойный эпидермис, внешние стенки клеток которого покрыты кутикулой и воском, образующие эффективный барьер на пути движения воды. На поверхности листьев часто развиты волоски, которые также влияют на водный режим листа, так как снижают скорость движения воздуха над его поверхностью и рассеивают свет и тем самым уменьшают потери воды за счет транспирации.Интенсивность кутикулярной транспирации варьирует у разных видов растений. У молодых листьев с тонкой кутикулой она может составлять около половины всей транспирации. У зрелых листьев с более мощной кутикулой кутикулярная транспирация равна 1/10 общей транспирации. В стареющих листьях из-за повреждения кутикулы она может возрастать. Таким образом, кутикулярная транспирация регулируется главным образом толщиной и целостностью кутикулы и других защитных покровных слоев на поверхности листьев. Кутикулярная транспирация обычно составляет около 10% от общей потери воды листом.
Устьичная транспирация Основная часть воды испаряется через устьица. Устьица играют важную роль в газообмене между листом и атмосферой, так как являются основным путем для водяного пара, углекислого газа и кислорода. Устьица находятся на обеих сторонах листа. Есть виды растений, у которых устьица располагаются только на нижней стороне листа. В среднем число устьиц колеблется от 50 до 500 на 1 мм². Транспирация через устьица идет почти с такой же скоростью, как и с поверхности чистой воды. Это объясняется законом И. Стефана: через малые отверстия скорость диффузии газов пропорциональна не площади отверстия, а диаметру или длине окружности. Поэтому, хотя площадь устьичных отверстий мала по отношению к площади всего листа (0,5-2 %), испарение воды через устьица идет очень интенсивно
Количественные показатели транспирации: Интенсивность транспирации – это количество, г, воды, испаряемой растением в единицу времени (ч) с единицы поверхности (дм 2 ). При определении продукционных характеристик рассчитывают ко- личество воды, израсходованной растением за весь вегетационный период, и относят его к сухой массе всего растения. Транспирационный коэффициент – это количество воды (г), расходуе- мой растением на образование 1 г сухого вещества.
Сутчный ход транспирации. У всех растений наблюдается периодичность суточного хода транспирации. У деревьев, теневых растений злаков (гидростабильные виды) испарение воды достигает максимума до наступления максимума дневной температуры. В полуденные часы транспирация падает. Вечером, при снижении дневных температур транспирация снова увеличивается. Такой ход транспирации приводит к незначительным изменениям осмотического давления и содержания воды в клетках в течение дня.
У видов, способных переносить резкие изменения содержания воды в клетках в течение дня, транспирация повышается в полдень и падает ночью (гидролабильные виды) Закрывание устьиц в полдень может быть вызвано увеличением уровня углекислого газа в листьях при повышении температуры воздуха (усиление дыхания и фотодыхания), а также возможным водным дефицитом, возникающим в тканях при высоких температурах и низкой влажности воздуха. Это приводит к повышению концентрации АБК и закрыванию устьиц.
На поступление воды в растение оказывают влияние внешние условия.
1. Температура. Поступление воды в растение зависит от температуры. С понижением температуры скорость поступления воды сокращается. Это может происходить в результате следующих причин:
а) повышается вязкость воды и снижается ее подвижность;
б) Тормозится рост корней;
в) Уменьшается скорость метаболических процессов;
2. Снижение аэрации почвы (повышение углекислого газа) Повышение концентрации углекислого газа приводит к повышению вязкости воды и снижает проницаемость цитоплазмы.
3. Содержание воды в почве, концентрация почвенного раствора. Вода поступает в корень, если водный потенциал корня ниже, чем водный потенциал почвы. На засоленных почвах или на почвах, где концентрация почвенного раствора очень высокая, водный потенциал почвы ниже. Поэтому вода начнет выделяться из корня. У растений, произрастающих на этих почвах - галофитах, в процессе эволюции выработался такой приспособительный признак как высокая
концентрация клеточного сока. Это обуславливает более низкий водный потенциал клеточного сока, вследствие чего вода из почвенного раствора поступает в корни.
Методы транспирации
Чаще всего применяют или метод быстрого взвешивания, или метод инфильтрации (открытость устьиц). Первый метод связан с сильным нарушением, но все же он дает некоторые сравнительные результаты. Расчет транспирации обычно производится в миллиграммах испаряемой воды (потери массы срезанного побега) за какую-то единицу времени (час, минуту) на единицу поверхности или на сырую/сухую массу.
Расчет на сырую массу сильно меняется в течение дня. И, кроме того, надо учитывать и анатомические особенности, прежде всего выраженность в структуре листа механических тканей. Расчет транспирации на сухую массу дает так называемый транспирационный коэффициент, который указывает, сколько растение затратило воды (в граммах) на производство единицы массы сухого органического вещества (фитомассы).
Общей закономерностью является то, что при ухудшении условий транспирационный коэффициент увеличивается, т. е. растение должно «прогнать» через себя больше воды на производство фитомассы. Если мы хотим сравнить транспирацию нескольких видов сообщества, то удобно один из них выбрать за единицу (эталон) и тогда можно получить "сравнительную транспирацию". Новый метод измерения транспирации в древесных стволах в почвенно-климатических условиях хорезмской области основан на датчики теплового рассеивания. Датчики непосредственно измеряют скорость ксилемного сока, которая может быть соотнесена к транспирации дерева рассчитанной на единицу площади активного ксилема. Принцип данного метода был развит доктором Андре Граниером во Франции и был широко принят сообществом исследователей, начиная с 1996.
Величину транспирации растений также можно определить весовым или объемным методом. Массу воды, которую растение испаряет в единицу времени, определяют путем систематического взвешивания вегетационного сосуда вместе с выращиваемыми растениями. При объемном методе пользуются прибором – потометром. Для измерения фактической транспирации в естественных условиях используют почвенные испарители, или лизиметры.
Определение интенсивности транспирации при помощи торсионных весов по методу А. Л. Иванова. При определении интенсивности транспирации отрезанных листьев производят учет изменения их массы за короткие промежутки времени, обычно за 1-2 мин. Это дает возможность наблюдать транспирацию при том состоянии насыщенности водой листа, в каком он находился на растении. В основе метода лежит учет количества воды, потерянной листом за короткий промежуток времени (1-15 мин в зависимости от условий опыта) в результате транспирации. При этом изменение массы листа следует учитывать до начала его завядания.
Определение интенсивности транспирации объёмным методом (в модификации В. П. Моисеева). Основным достоинством данного метода является его точность, наглядность, возможность изучения динамики транспирации в различных условиях среды. Для выполнения работы не требуется сложной измерительной техники. Сущность метода состоит в том, что лист при помощи эластичной трубки соединяется с микропипеткой (цена деления 0,001- 0,002 мл), предварительно заполненной водой. Объем поглощенной листом воды из пипетки будет соответствовать величине транспирации.
ОСОБЕННОСТИ ПИТАНИЯ РАСТЕНИЙ АЗОТОМ
Без N не могут синтезироваться белковые в-ва, а без них не может образоваться протопласт живой клетки. В растениях 1-3% N, без достаточного кол-ва его в почве развитие растений невозможно. Низкая урожайность многих с/х культур чаще всего определяется недостатком N. В почв N содержится в виде органических соединений (белковые в-ва и аминокислоты) и минеральных соединений (аммонийные соли и соли азотной к-ты). Весь N растениями усваивается из почвы. Различают несколько видов соединений N: органические соединения (орг.N), соли аммиака (аммиачный N), соли азотной и азотистой к-т (нитратный N). Общее кол-во N в почве незначительно, в основном это органический N. Органические соединения, которые усваиваются растениями: аминокислоты, органические фосфоросодержащие соединения, антибиотики, гуминовые к-ты, витамины, ауксины. Не усваиваются растениями: белки, липиды и др.нерастворимые в воде соединения N, которые входят в состав перегноя. Лучшие источники N-аммиачные соли и соли азотной к-ты.
Аммонификация-процесс разложения белков, аминокислот, мочевины и др соединений, почвенные организмы, осуществляющие этот процесс - аммонификаторы, с их помощью белки разлагаются до аминокислот, которые дезаминируются с образованием NH3. Минерализацию орг.N завершает процесс нитрификации, осуществляемый хемосинтезирующими нитрофицирующими бактериями-аэробами. 2стадии: нитритные бактерии до нитрита, 2ст:нитратные бактерии до нитрата. Корневая система растений способна поглощать аммонийные и нитратные соли. В слабокислой среде(рН5)лучше усваиваются нитраты, в нейтр.среде(рН7)лучше усваиваются аммонийные соли.
Установлено, что высшие растения не способны усваивать молекулярный азот атмосферы. Благодаря деятельности клубеньковых бактерий бобовые растения не только обеспечиваются азотсодержащими соединениями, но и значительно обогащают почву азотом за счет корневых выделений и пожнивных остатков. Высшие растения могут поглощать растворимые азотсодержащие органические соединения — аминокислоты, амиды, короткие полипептиды, но в основном органический азот почвы усваивается после его минерализации.
В водной культуре зеленое растение представляет собой в высшей степени автотрофный организм, способный синтезировать все, в том числе и азотсодержащие, органические соединения. Основными усвояемыми формами азота для высших растений являются ионы аммония и нитрата. Физиологическая особенность процессов усвоения заключается в том, что аммоний сразу после поглощения метаболизируется в корнях, превращаясь в азот аминокислот и амидов. Аммонийная форма азота эффективна только при условии высокой фотосинтетической активности или достаточного количества запасных углеводов. При недостатке органических кислот аммиак не успевает связываться и может быть токсичным для растения. Поступившие нитраты либо запасаются в вакуолях клетках корня, либо подаются с пасокой в надземную систему. Наличие в среде одновременно обеих форм минерального азота приводит к увеличению урожая хлебных злаков. На поглощение растениями нитратов и аммония существенно влияет температура среды. Причем реакция самых разных растений на температурные воздействия оказывается очень сходной: при пониженной температуре относительно или даже абсолютно больше поглощается аммония, чем нитрата, увеличивается метаболическая нагрузка корней по ассимиляции азота
Лекция 6.
Движения растений
Движения растений. Сравнивая растительный и животный организм, обычно говорят, что в отличие от животных растения не передвигаются, прикреплены в течение всей жизни к определенному месту. Однако движение как одно из свойств живой материи характерно и для растений.
Движение – это перемещение организма или его частей в пространстве. Движение необходимо для питания, защиты и размножения растений.
Верхушечный рост. Перемещение корневых волосков и гиф грибов происходит за счет верхушечного роста. В кончиках клеток содержится много везикул, производных аппарата Гольджи и эндоплазматического ретикулума, которые доставляют материалы для формирования клеточной стенки, а также синтетазы и гидролазы. Гидролазы разрыхляют стенку, которая растягивается под давлением протопласта. Микрофибриллы целлюлозы раздвигаются и в стенку встраиваются новые компоненты.
Ростовые движения. В процессе эволюции у растений возник специфический способ движения за счет необратимого роста клеток растяжением.
Тропизмы. Это движения растений, обусловленные односторонне действующими факторами среды. Они являются следствием более быстрого роста клеток растяжением на одной стороне побега, корня, листа. В зависимости от природы фактора различают гео-, фото-, тигмо-, термо-, электро- и хемотропизмы. При положительных тропизмах движение направлено в сторону раздражителя, при отрицательных – от него. Рассмотрим несколько видов тропизма.
Геотропизм – изгибание под действием гравитационного поля Земли вследствие разной скорости роста клеток противоположных сторон органа. Восприятие силы тяжести связано с воздействием на плазмалемму и эндоплазматический ретикулум статолитов (амилопласты, хлоропласты, отложения солей). Давление статолитов на мембраны приводит к изменению мембранного транспорта, поляризации клеток. При этом нижняя часть стеблей и корней, приведенных в горизонтальное положение, приобретает суммарный электроположительный заряд. Активируется транспорт ауксина как отрицательно заряженного аниона к нижней стороне органа. У стебля это приводит к усилению роста нижней части горизонтально расположенного стебля и его изгиба вверх. У клеток корней выше чувствительность к ауксину, поэтому повышенная концентрация ИУК в нижней части корня ингибирует ее рост и верхняя половина растет быстрее, что приводит к изгибу корня вниз.
Фототропизм – изгибы растений под влиянием одностороннего освещения. Затененная сторона этиолированных проростков растет более быстро, так как туда перемещается ауксин. В зеленых проростках ауксин не транспортируется на затененную часть побега, но у них в клетках освещенной стороны накапливается ингибитор роста ксантоксин. У большинства растений листья располагаются под острым или тупым углом по отношению к световым лучам т.е. они плагиофототропны.
Хемотропизм – ростовая реакция на химические соединения. Он наблюдается у корней, пыльцевых трубок, железистых волосков насекомоядного растения росянки. Большую роль при этом играет не только природа вещества, но и его концентрация: при низкой концентрации хемотропизм положителен, а при сверхоптимальной – отрицателен.
Ростовые настии. Это движения растений, обусловленные диффузно действующими факторами среды и происходят в результате неравномерного роста клеток растяжением. При росте верхней стороны орган изгибается книзу (эпинастия), нижней стороны – кверху (гипонастия).
Фотонастия вызвана сменой света и темноты. У многих растений цветки закрываются при наступлении темноты и открываются утром. Эти движения можно вызвать, искусственно затеняя и освещая растения. Движения цветков происходят из-за разной скорости роста верхней и нижней сторон лепестков при изменении освещенности.
Тигмонастия характерна для лазящих растений, когда усик в ответ на прикосновение закручивается. Он реагирует только при создании эффекта трения. В темноте усик не закручивается, но освещение растения даже через 90 мин после прикосновения вызывает закручивание усика. Движение происходит при участии этилена и ауксина, так как обработка ими вызывает закручивание усика без механического раздражения. После прикосновения нижняя сторона усика теряет тургор и становится вогнутой. Затем начинает расти верхняя сторона усика, что приводит к его закручиванию.
Круговые нутации. Это круговые или колебательные движения органов растения, характерные, в основном, для растущих побегов и корней. Они происходят за счет идущих по кругу ускорений роста клеток в результате геотропической корректировки в гравитационном поле.
Тургорные обратимые движения. Сюда относят движения замыкающих клеток устьиц, которые мы уже изучали. Такие же движения характерны для растений, чьи листья имеют специализированные образования в сочленениях между стеблем и черешком, между черешком и пластинкой листа. В этих образованиях паренхимные клетки коры, изменяя свой тургор, приводят к складыванию и разгибанию листьев. Различают флексорные и экстензорные клетки. Повышение тургора во флексорных клетках приводит к складыванию листьев, в экстензорных – к их разгибанию. Изменения тургора в этих клетках связано с изменениями транспорта сахарозы, ионов калия и хлора в результате деятельности протонных помп. Эти движения могут происходить медленно при смене условий освещения (никтинастические или движения сна), при механическом и химическом воздействиях у росянки или с большой скоростью при сотрясении у мимозы, кислицы и других растений.