Материал: Физиология растений лекция 1-10
2) закон длительности раздражения. Чем длительнен раздражение, тем сильнее ответная реакция.
3) Закон количества радражения. Чем больше сила раздражения, тем меньше время презентации.
4)Закон градиента раздражния. Чем выше скорость нарастания силы радражителя, тем больше ответная реакция. При действии чрезмерно сильных или длительных (воздействий) раздражителей, чувствительность клеток к раздражителю снижается и клетки могут погибнуть. После прекращения действия раздражителя клетка может вернуться в своё наивное состояние. Этот процесс называется реституция- восстановление исходного состояния после раздражения. Реституция идет с затратой энергией, тормозится под действием каких-то химических веществ. Например, у растений от избытка минеральных удобренй, избытка пестицидов, при недостатке кислорода и сниженя температуры. Во время реституции клетки находятся в рефлактерном периоде, когда новое радражение не вызывает возбуждение.
Механизм передачи раздражения.
1) Восприятие или рецепция первичного сигнала.
2) Внутриклеточная передача этого сигнала и его усиление.
3) Ответная реакция клетки на молекулярном, метаболическом и физиологическом уровне.
Сигнальные системы в растительных клетках:
*Циклоаденилатная *МАР-киназная *Фисфатидокислотная *Кальциевая
*Липоксигеназная
*НАДФ*Н -оксидазная (супероксидазная)
*NO-синтазная.
В первых 5 сигнальных системах посредником между цитоплазматической частью рецептора и первым активированном ферментом являются G-белки. Эти белки локализованы на внутренней стороне плазмолеммы. Их молекулы состоят из 3 субъеденц: Альфа, Бета, Гамма. В состоянии покоя все субъеденицы образуют комплекс в котором Альфа-субъеденица связана с гуанозиндифосфатом(ГДФ). В результете конфрамационных изменений, под действием раздражителя, рецептор присоединяется к G-белку. При этом гуанозолдифосфат(ГДФ) отсоединятеся от Альфа-субъеденицы и его место занимает гуанозинтрифосфат(ГТФ). В результате Альфа- субъединица вместе с ГТФ остоединятеся от двух других субъединиц и связывается с каким либо эффекором. Например, с аденлатциклазой. В результате ГТФ гидролизуется до ГДФ, Альфа-субъединица инактивируется, отделяется от эффектора, и присоединяестя к свободным Бетта- и Гамма-субъеденицам. А активированный эффектор запускает каскад метаболических путей от сигнальных системах.
Циклоаденилатная.
Взаимодействие раздражителя с рецептором приводит к активации аденилатциклазы, которая катализирует циклическое обраование циклического аденозитмонофосфата(ЦАМФ). ЦАМФ активирует ионные каналы, может включать кальциевую сигнальную систему, и ЦАМФ-зависимые протеинкиназы. Эти ферменты активируют белки регуляторы экспрессии защитных генов путем их фосфорилирования.
МАР-киназная.
Активность у растений повышается под действием синего цвета, холода, высушивания, механического поврежения, солевого стресса, под действием этилена салициловой кислоты ил под действием патогеннов. Под действием раздражителя активируется киназа, киназы, МАР-киназы, катализируют фосфарилирование цитоплазматической киназы МАР-киназы, которая активирует при двойном фосфорилировании МАР-киназу. МАР-киназа переходит в ядро, где фосфорилируует белки регуляторы транскрипции.
Фосфатидокислотная.
Раздражители через рецептори активируют G-белки. G-белки активируют фосфолипазы. Фосфолипазы гидролизуют фосфатидилинозитол 4,5-дифосфат с обраованием глиоцилглицерол и инозитол 1,4,5 трифосфата. Инозитол освобождает ионы кальция из связанного состояния. Кальций активирует кальций-зависимые протеин киназы. Глиоциглицерол после фосфолириованя превращается в фосфатидную кислоту, которая активирует протеинкиназы с последующим фосфорированием белков, в том числе белков регуляторов транскрипции.
Кальциевая.
Воздействие различных раздражителей: красного цвета, засухи, фитогормонов и патогеннов; приводит к повышению седержания ионов кальция в цитоплазме за счет увеличения импорта из внешнй среды и выхода из внутриклеточных хранилищ (вакуолях ЭПС). Повышене концентрации ионов кальция приводит к активации растворимых и мембранно-связанных кальций зависимых протеинкиназ. Эти участвуют в фосфорилировании белковых факторов регуляции экспрессии защитных генов.
Липоксигеназная.
Взаимодействие раздражителя с рецептором на плазмолемме приводит к активации мембрано связанной фосфолипазы А2, которая катализирует выделение из фосфолипидов плазмолеммы ненасыщенных жирных кислот в том числе линолевой, и линоленовой. Эти кислоты являются субстратами для липооксигеназы. Субстратами для этого фермента могут быть не только свободные но и входяще в состав триглицеридов ненасыщенных жирных кислот.активность липоксигеназ повышается при заражении растений вирусами и грибами, за счет стимуляции экспрессии генов кодирующих эти ферменты. Липоксигеназы катализирует присоединение молекулярного кислорода к одному и атомов углерода радикала жирных кислот, промежуточные и конечные продукты липоксигеназнгого метаболизма ЖК обладают бактерицидными, фугницидными свойствами и могут активировать протеинкиназы.
НадФ Н оксигеназная.
Общая для клеток животных и астений. В клетках растений активируется при зарожении патогенамии. Образуется активная форма кислорода (О2-, атомарный) который вызывает гибель клеток патогенных. Активные формы кислорода не только токсичны для патогена инфицированые клетки растения хозяна но и являются участникаи сигнальной системы. Прежде всего активируют факторыв регуляторы транскрипции экспрессию защитных генов.
NO- синтазная.
Активируется в ответ на зарожение под действием фермента ТЩ синтазы, аминокислота Л_аргинин превращается в АК цетрулин и NO/ NO при взаимодействии с супероксидом кислорода образует очень токсичный пероксинетрил. При поышенной концентрации окиси азота активируется гуанилат циклаза которая катализирует синтез цикличекого гуанозилмонофосфата. Он активирует протеин киназы непосредственноили через образование циклической АДФ рибозы которая открывает кальциевые каналы и тем самым повышает концентрацию ионов кальция в цитоплазмею. В результате происходит активация кальций зависимых протеин киназ.
В клетках растений существует скоорденированая система сигнальных путей которые могуьт действовать незвависимо друг от дркга ил сообща. Особенносттью работы Сигнальных систем является усиление сигнала в процесссе его передачи. Направлено на адаптацию растений и повышению их устойчивости к различных воздействиям.
С помощью сигнальных стсем информация многократно усиливается..... Восприятие сигнала сопровождается трансдукцией, перевод на язык понятный клетке, именение соотношение ионов, гормонов ил др сигнальных молекул.
Внури клетки передача сигнала происходит на омпонетны внутриклеточных сигнальных путей конечными из которых явл активация работы или репрессия генов. В рде случает помимо клеточного ответа в растениях формируется оргшанизсменый или системыной ответ. Системные сигналы возникают в клетках подвергнутых повреждающему воздействию и передаются по растению индуцируя формирование защтных механизмов в частях растения пространственно удаленных от места дейстия фактора.
Транспорт веществ в расттельные клетки.
................
Метаболизм растительных клеток.
Таке как и для животнгых для растительных хараткетран разветвленна \я цепь химических реакций- метаболизмом или обменов веществ. Всю совокупность биохимических реакций можно наздленлить на реакуи протекающие собственно в клеткахх и реакции осуществялющие взаимодействие со средой. Из внешнй среды поступают вещества необходимые для жизгнедеятельности организма и выделяюе ряд определенных вещест либо не нужны либо хеморегуляторы для адаптации.
Особенность метаболизма растений вся совокупность реакци подвержена иерархической регуляции. ОСуществляется с помощью ферментов. Ферменты представляющие собой белки и РНк катализируюшие реакци.ю
Делят на катаболизм и анаболизм .Катаболизм диссимиляция распад крупных органический молекул до простх соединений с одновременным выделение энергии. Например: тканевое клеточное дыхание, окисление АК(белки), оксление ТАГ).)
Классический обмен это процессы синтеза Например отосинтез, синетз белков, липидов,)Анаболизм или асимиляция синтез сложных вещетв от простых с затратой энергии.
Метаболихзм делиться на первичный и вторичный.
Первичный обеспечивает клетк пластическим материалом и энергии(фотосинтез, дызание, матичнвй биосинтез, ситез липидов). В результате образуютс я вещества необходимые для жизннедеятельности клеток.
Вторичный метаболизм. Это совокупность биохимических реакций приводящих к синтеу низкомолекулярных веществ обеспечивающих адаптацию растений к раному условию питания. (Алкалоиды, сердечные гликозиды).
Лекция 3
ФОТОСИНТЕЗ.
-это синтез углеводов и других органических соединений из неорганических (углекислого газа и воды) под действием солнечного света при участии хлорофилла.
Уравнение фотосинтеза: 6CO2+6H2O-C6H12O6+O2|
Фотосинтез с энергетической точки зрения- это процесс поэтапного стабилизации внешней неустойчивой энергии кванта света во внутреннюю устойчивую энергию химических связей органических веществ через промежуточные формы энергии( энергия электрона, энергия дельта-ph, энергию макроэргических связей АТФ, и НАДФ Н2).
Фотосинтез осуществляется группами автотрофными организмами: цианобактериями, зелеными, пурпурными бактериями, водоросли, мхи, лишайники, папорники, голосеменные покрытосеменные, насекомоядные). Паразитные формы не синтезируют (хлорофилл не синтезируется) (Повилика).
Лист как орган фотосинтеза.
Органоиды-хлоропласты. У фотосинтезирующих бактерий фотосинтез проходит на внутрицитоплазматических мембранах ил особых структурах хлоросомы локализованные на мембраны. У водорослей есть специальное образование - хроматофоры в который сосредоточен пигмент. Пигменты это фоторецепторы, улавливают квант света. Для того чтобы свет мог оказывать влияние на растительный организм и быть использован в процессе фотосинтеза необходимо его поглощение фоторецепторами пигмента. Важнейшую роль в процессе фотосинтеза играют зеленые пигменты - хлорофиллы. У высших растений встречает хлорофилл А и хлорофилл Б. По химическому строение хлорофиллы это сложные эфиры дикарбоновой органическо кислоты хлорофилла и двух остатков спиртов фитола и метанола. Хлорофилл представляет собой азотосодержащее металлоорганическое соединение, относящее к магний порфирином и именно такой комплекс придает разные оттенки зеленого. Хлорофилл имеет 2 основные линии поглощения: в красной области спектра и в сине-фиолетовой.
Каротиноиды. Это пигменты желто-оранжевого цвета. Выполняют 2 функции:
1) Участвуют в поглощении смиине-0фиолетовых лучей в качестве дополнительных пигментов
2) Защищают молекулу хлорофилла от неизменного фотоокисления.
По химическому строению это циклически или ациклические изоприноиды. 2 основные группы
Каротины и ксантофиллы.9только желтый пигмент)
Фикобилины это красные и синие пигменты. содержащиеся в хроматофорах красных сине-зеленых водорослях. Это сложные белки, хромопротеины.
Подразделяются на фикоциалины (СИНИЕ БЕЛКИ) фикоэретрины (красные). Фикациалины поглощают в зеленой и желтой части солнечного спектра. Пример приспособления в процессе эволюции к поглощению участка солнечного спектра которые проникают сквозь толщу морской воды.
Этапы фотосинтеза.
Условно процесс подразделяется на световую и темновую фазу. Световая идет только на свету. Темновая не зависит от света
Условно в световой фазе выделяют 2 этапа.
Фотофизический.
Первый наиболее важный и самый короткий. Осуществляется переход и преобразование энергии. Начинается с поглощения кванта света наиболее подвижными электронами (которые слабее удерживаются ядром в молекуле хлорофилла). Такими подвижными являются делокализованные пироэлекторны двойных связей и электроны неподдельных электронных пар азота. Принимая внешнюю энергию, слабосвязанные электроны переходят из своего состояния в 1 и 2 синглетом состояние (возбуждённое) или триплетное состояние. Электроны долго находиться не могут в таком состоянии. Дезактивация электронов может происходить путем выделения тепла, света (или собственно излучения флюоресценция и фосфоресценция красные), передать энергию на другую молекула пигмента (энергия электронного возбуждения переносится путем индуктивного резонанса без разделения заряда), затрачивание энергии на фотохимические процессы, приводящие к образованию АТ и НАДФ Н2.
Фотохимический.
Это реакции, в которых энергия света преобразуется в энергию химических связей и в энергию фосфорных связей АТФ. Совокупность светофокусирующих или антенных молекул пигментов и реакционного центра составляют фотосистему. Реакционный центр включает хлорофилл ловушку А и первичный акцептор электронов. В процессе фотосинтеза принимают участие 2 фотосистемы. Фотосистема 1 включает светофокусирующие пигменты и реакционный центр 1. Хлорофилл ловушка 1 фотосистемы поглощает свет длинной волны 700 нм, поэтому обозначается Р700.
Фотосистема 2 светофокусирующие пигменты и реакционный центр 2. Хлорофилл ловушка фотосистемы 2 поглощает свет длиной волны 680 нм.
Свет поглощается раздельно этими двумя фотосистемами, и нормальное осуществление фотосинтеза требует их одновременного участия. Свои электроны хлорофилл ловушки передают по цепи переносчиков. Перенос по цепи переносчиков вкл ряд ОВР в ходе которых происходит перенос либо протонов водорода, либо электронов. Различают 2 типа потока электронов.
Циклический. При нем электроны, переданные от молекулы хлорофилла первичному акцептору возвращаются к ней обратно.
Нециклический.
В темновой фазе 1 этап биохимический (имеются различные варианты этого этапа).
Продолжение.
План:
Фотохимический этап. Синтез АТФ.
Биохимический этап. Цикл Кальвина.
Разновидности биохимического этапа (вопрос для самостоятельного изучения).
Значение фотосинтеза.
Влияние внешних условий на процесс фотосинтеза (вопрос для самостоятельного изучения).
Резюме.
Фотохимический этап
Данная лекция является продолжением темы «Фотосинтез». В данном вопросе мы подробнее разберем фотохимический этап. Напомню, что два этапа (фотофизический и фотохимический) включены в световую фазу и связаны с поэтапным преобразованием энергии. Возбужденная молекула хлорофилла – мощный восстановительный агент, играющий решающую роль в образовании высоковосстановленных кофакторов в реакциях фотосинтеза.
В настоящее время показано, что хлорофилл имеет две функции — поглощение и передачу энергии. При этом основная часть молекул хлорофилла (светособирающий комплекс — ССК) только поглощает свет и переносит энергию возбуждения на особые молекулы хлорофилла, которые непосредственно участвуют в фотохимическом процессе. Такое устройство позволяет значительно полнее использовать энергию света. Энергия квантов света улавливается 200—400 молекулами антенного хлорофилла ССК и как бы стекается к одной, особой его молекуле, являющейся ловушкой и входящей в реакционный центр. В улавливании и передаче энергии на молекулу хлорофилла-ловушки могут участвовать не только молекулы хлорофилла, но и каротиноиды и фикобилины.
Передача энергии между молекулами пигментов идет главным образом резонансным путем, без разделения зарядов с большой скоростью.
Перенос энергии происходит только от пигментов, поглощающих свет с меньшей длиной волны, к пигментам, поглощающим свет с большей длиной волны.
Хотя передача энергии от одной молекулы пигмента к другой идет с большой эффективностью (от хлорофилла b к хлорофиллу а — 90%, от каротиноидов к хлорофиллу — 40%), однако все же это связано с некоторой ее потерей. Вместе с тем кванты света с меньшей длиной волны обладают большей энергией. Потеря энергии приводит к превращению квантов в более мелкие (с большей длиной волны). Именно поэтому основные формы хлорофилла, к которым стекается энергия, являются более длинноволновыми (хлорофиллы П680 и П700)- Обратный перенос энергии невозможен. Фотохимические реакции фотосинтеза — это реакции, в которых энергия света преобразуется в энергию химических связей, и в первую очередь в энергию фосфорных связей АТФ. Именно АТФ является энергетической «валютой» клетки, обеспечивающей течение всех процессов. Одновременно под действием света происходит разложение воды, образуется восстановленный НАДФ и выделяется, кислород. (презентация слайды 15-17).
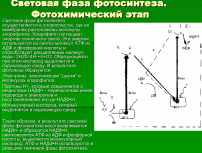
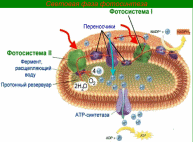
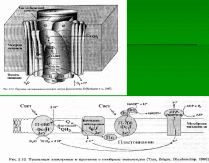
Молекула хлорофилла-ловушки, отдавая электрон акцептору, окисляется. Электрон поступает в электронно-транспортную цепь. Предполагается, что ССК состоит из трех частей: главного антенного компонента и двух фокусирующих, расположенных в двух фотосистемах . Комплекс антенного хлорофилла погружен в толщу мембраны тилакоидов хлоропластов. Совокупность светофокусирующих (антенных) молекул пигментов и реакционного центра составляет фотосистему. Реакционный центр включает хлорофилл-ловушку а и первичный акцептор электронов.
В процессе фотосинтеза принимают участие две фотосистемы.
Эмерсон показал, что эффективность света с длиной волны 680—700 нм может быть значительно повышена добавлением света с более короткой длиной волны (650—660 нм). Интенсивность фотосинтеза при освещении смешанным светом (с двумя длинами волн)
оказалась выше суммы интенсивностей фотосинтеза, наблюдаемой при освещении светом каждой длины волны в отдельности. Это явление называют эффектом усиления или эффектом Эмерсона. Был сделан вывод, что необходимо одновременное световое возбуждение пигментов, различающихся по спектру поглощения. Именно это и привело к понятию о существовании двух фотосистем. Интересно,что эффект усиления наблюдается при изучении фотосинтеза у высших растений и водорослей. У бактерий этот эффект отсутствует и, соответственно, в процессе фотосинтеза участвует одна фотосистема. Важно заметить, что при окислительно-восстановительных реакциях происходит перенос либо атома водорода, либо электрона.
Различают два типа потока электронов — циклический и нециклический. При циклическом потоке электроны, переданные от молекулы хлорофилла первичному акцептору, возвращаются к ней обратно. При нециклическом потоке происходит фотоокисление воды и передача электрона от воды к НАДФ. Выделяемая в ходе окислительно-восстановительных реакций энергия частично используется на синтез АТФ. Процесс преобразования энергии света в энергию АТФ получил название фотосинтетического фосфорилирования (Д. Арнон). Соответственно двум типам потока электронов различают циклическое и нециклическое фотофосфорилирование.
Нециклическое и циклическое фотосинтетическое фосфорилирование принято включать в световую фазу фотосинтеза, однако свет необходим только на первых этапах этих процессов.
Особенности нециклического фосфорилирования:
Участие двух фотосистем
Нециклический транспорт электронов от воды к НАДФ
Образование двух энергетических эквивалентных АТФ и НАДФН2, которые используются в темновой фазе фотосинтеза
Происходит фотоокисление воды и выделение кислорода и образуется вода.
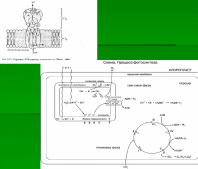
Схема нециклического фосфорилирования:
Электрон в молекуле П700 переходит на более высокий энергетический уровень (Si). В основном состоянии окислительно-восстановительный потенциал П700 составляет +0,43 В. Следовательно, тенденция к потере электрона (окислению) выражена очень слабо. Однако при поглощении кванта света молекула П700 переходит в возбужденное состояние и ее окислительно-восстановительный потенциал изменяется до —0,80 В. Поэтому в возбужденном состоянии молекула П70о легко отдает электрон (фотохимическая реакция). Энергия света изменяет распределение электронов в кольце молекулы хлорофилла 700 и делает один электрон доступным для переноса. При этом энергия квантов сначала переходит в энергию электронного возбуждения, а .затем в энергию разделения зарядов. Так, отдавая электрон, молекула П700 окисляется и остается в виде положительно заряженной молекулы Хл + hv -> Хл*, Хл* (Хл)+ + e-,
где Хл* — возбужденная форма хлорофилла, (Хл)+— окисленная
форма хлорофилла. Электрон с первого переносчика передвигается по направлению
к НАДФ через ряд переносчиков, расположенных в порядке возрастания О/В потенциала. Электроны спонтанно текут в сторону менее отрицательного окислительно-восстановительного потенциала. Переносчик, воспринимающий электрон от П7оо (неидентифицированный), передает электрон на железосерные белки. Следующим переносчиком является железосодержащий белок ФС1 поглощает кванты света, энергия которых стекается к ХЛ 700. Его электроны переходят из S0 в S1 и далее передаются по ЭТЦ: переносчик Z, ферредоксин, от него на НАДФ.
Работа второй ФС начинается с поглощения квантов света, энергия стекается к ХЛ680. затем электрон передается переносчику QC550 затем на пластохинон, для восстановления которого нужны не только электроны, но и протоны, которые берутся из внешней среды. Затем электрон передается на цитохромы, не нужные протоны водорода выбрасываются, затем переносчик уf, конечный переносчик – пластоцианин. Для заполнения дырки вместо электрона в хл 680 электрон поступает из воды, при этом происходит ее фотоокисление и выделение кислорода. (презентация слайд 18).