Материал: kompendium_po_fizike
106
внутрь
аксона
и
за
счет
активного
транспорта
выносится
из
клетки
.
Следовательно
,
основной
вклад
в
формирование
ПП
вносят
ионы
калия
и
хлора
.
Подставив
численные
значения
проницаемостей
и
концентраций
для
ионов
калия
хлора
в
формулу
Гольдмана
-
Ходжкина
-
Катца
для
температуры
t=30
0
C,
вычислим
:
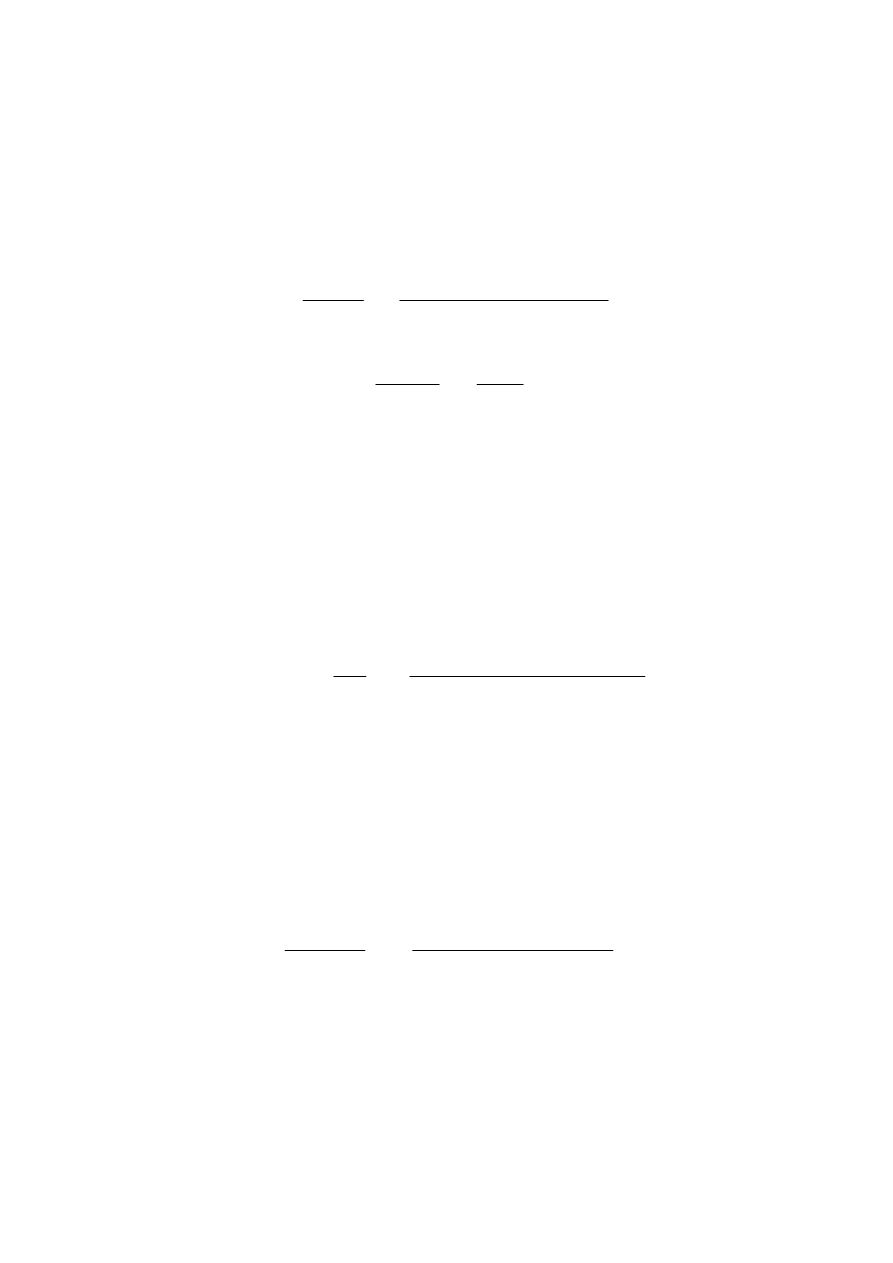
8,3 303
1 360 0,04 70 0, 45 500
ln
46
96500
1 10 0,04 420 0, 45 160
ПП
мВ
Значение
ПП
,
вычисленное
по
формуле
Нернста
,
равно
:
8,3 303
1 360
ln
93
96500
1 10
н
мВ
Формула
Нернста
дает
несколько
заниженное
значение
потенциала
покоя
,
а
формула
ГХК
приводит
к
более
реалистичным
значениям
ПП
,
измеренным
экспериментально
на
крупных
клетках
.
Следует
также
отметить
,
что
ни
формула
Нернста
,
ни
формула
ГХК
не
учитывают
механизма
активного
транспорта
.
Формула
Томаса
для
ПП
учитывает
работу
электрогенных
ионных
Na-K-
насосов
и
имеет
вид
:
0
0
ln
K
Na
i
i
T
K
Na
m P K
P
Na
RT
F
m P K
P
Na
,
где
m –
отношение
количества
ионов
натрия
к
количеству
ионов
калия
,
переносимых
натрий
-
калиевым
насосом
через
КМ
.
Наиболее
распространенный
режим
работы
Na
+
-K
+
-
АТФ
-
азы
наблюдается
при
m=3/2.
В
уравнении
Томаса
отсутствуют
члены
P
Cl
[Cl
-
],
так
как
нет
активного
транспорта
для
ионов
хлора
через
КМ
.
Численное
значение
ПП
по
формуле
Томаса
равно
:
8,3 303
1,5 1 360 0,04 70
ln
75
96500
1,5 1 10 0,04 420
ПП
мВ
.
Коэффициент
m,
применяемый
в
уравнении
Томаса
,
усиливает
вклад
градиента
концентрации
ионов
калия
в
формирование
ПП
.
Поэтому
ПП
,
рассчитанный
по
формуле
Томаса
,
по
абсолютному
значению
меньше
ПП
,
рассчитанного
по
формуле
ГХК
.
Значение
ПП
,
полученное
с
помощью
формулы
107
Томаса
,
хорошо
совпадает
со
значениями
ПП
,
измеренными
экспериментально
на
мелких
клетках
.
4.
Механизм
генерации
потенциала
действия
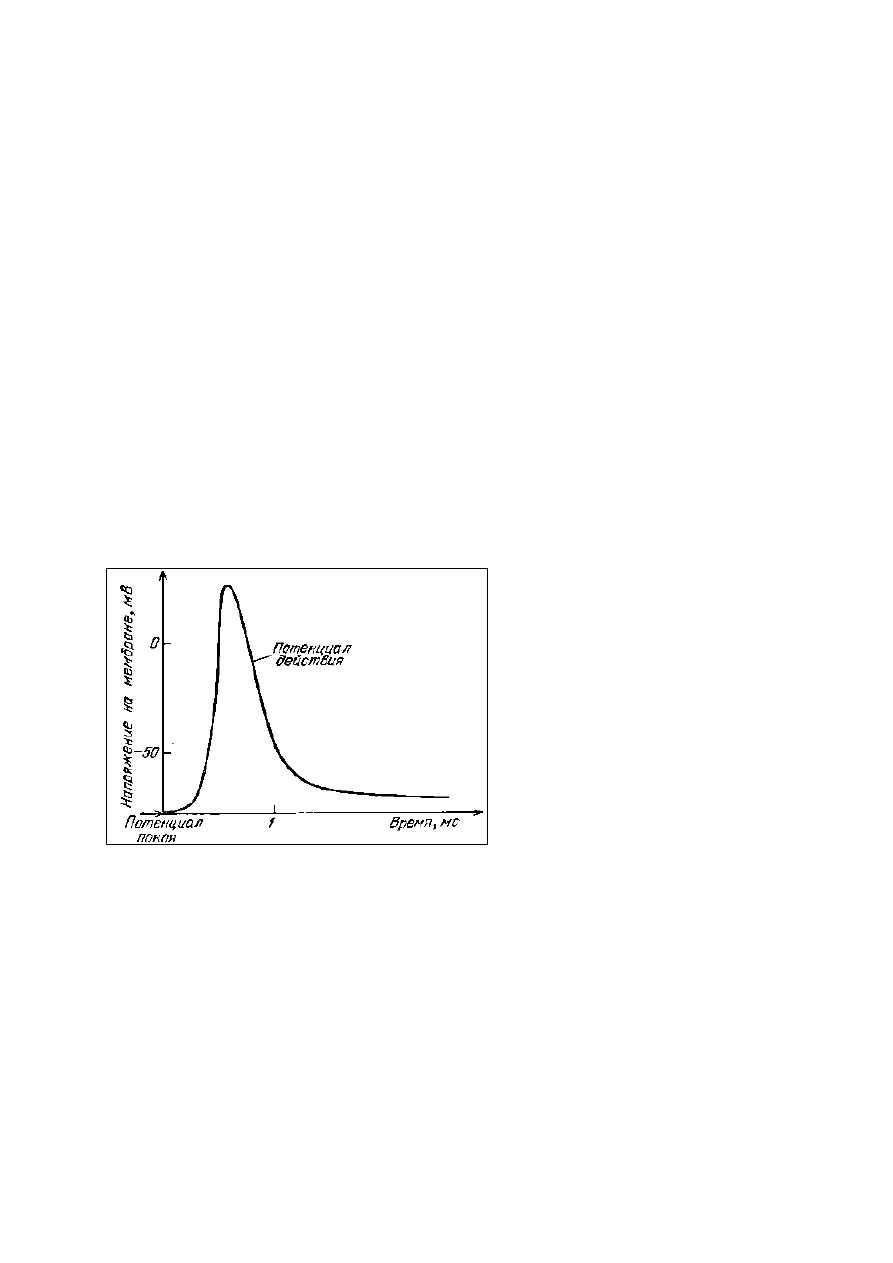
Потенциал
действия
(
ПД
).
Все
раздражители
,
действующие
на
клетку
,
вызывают
в
первую
очередь
снижение
ПП
,
когда
оно
достигает
критического
значения
(
порога
),
возникает
активный
распространяющийся
ответ
−
ПД
.
Во
время
восходящей
фазы
ПД
кратковременно
изменяется
потенциал
на
мембране
:
её
внутренняя
сторона
,
заряженная
в
покое
электроотрицательно
,
приобретает
в
это
время
положительный
потенциал
.
Достигнув
вершины
,
ПД
начинает
падать
(
нисходящая
фаза
ПД
),
и
потенциал
на
мембране
возвращается
к
уровню
,
близкому
к
исходному
,
−
ПП
(
рисунок
39).
Полное
восстановление
ПП
происходит
только
после
окончания
следовых
колебаний
потенциала
−
следовой
деполяризации
или
гиперполяризации
,
длительность
которых
обычно
значительно
превосходит
продолжительность
пика
ПД
.
Согласно
мембранной
теории
,
деполяризация
мембраны
,
вызванная
действием
раздражителя
,
приводит
к
усилению
потока
Na
+
внутрь
клетки
,
что
уменьшает
отрицательный
потенциал
внутренней
стороны
мембраны
,
−
усиливает
её
деполяризацию
.
Это
,
в
свою
очередь
,
вызывает
дальнейшее
повышение
проницаемости
для
Na
+
и
новое
усиление
деполяризации
и
т
.
д
.
В
результате
такого
взрывного
кругового
процесса
,
т
.
н
.
регенеративной
деполяризации
,
происходит
изменение
мембранного
потенциала
,
характерное
для
ПД
.
Рисунок
39.
Изменение
потенциала
КМ
при
возбуждении
108
Повышение
проницаемости
для
Na
+
очень
кратковременно
и
сменяется
её
падением
,
а
,
следовательно
,
уменьшением
потока
Na
+
внутрь
клетки
.
Проницаемость
для
К
+
,
в
отличие
от
проницаемости
для
Na
+
,
продолжает
увеличиваться
,
что
приводит
к
усилению
потока
К
+
из
клетки
.
В
результате
этих
изменений
ПД
начинает
падать
,
что
ведёт
к
восстановлению
ПП
.
Таков
механизм
генерации
ПД
в
большинстве
возбудимых
тканей
.
Существуют
,
однако
,
клетки
(
мышечные
волокна
ракообразных
,
нервные
клетки
у
ряда
брюхоногих
моллюсков
,
некоторые
растительные
клетки
),
у
которых
восходящая
фаза
ПД
обусловлена
повышением
проницаемости
мембраны
не
для
ионов
Na
+
,
а
для
ионов
Ca
+
.
Своеобразен
также
механизм
генерации
ПД
в
мышечных
волокнах
сердца
,
для
которых
характерно
длительное
плато
на
нисходящей
фазе
ПД
.
Неравенство
концентраций
ионов
К
+
и
Na
+
(
или
Ca
+
)
внутри
и
снаружи
клетки
(
волокна
)
поддерживается
специальным
механизмом
(
т
.
н
.
"
натриевым
насосом
"),
выталкивающим
ионы
Na
+
из
клетки
и
нагнетающим
ионы
К
+
в
протоплазму
,
требующим
затраты
энергии
,
которая
черпается
клеткой
в
процессах
обмена
веществ
.
Амплитуда
ПД
большинства
нервных
и
мышечных
волокон
примерно
одинакова
: 110-120
мВ
.
Длительность
ПД
варьирует
в
широких
пределах
:
у
теплокровных
животных
длительность
ПД
нервных
волокон
,
наиболее
быстро
проводящих
возбуждение
−
0,3-0,4
мс
,
у
волокон
же
мышц
сердца
– 50-600
мс
.
В
растительных
клетках
пресноводной
водоросли
хара
ПД
продолжается
около
20
с
.
Характерной
особенностью
ПД
,
отличающей
его
от
других
форм
ответа
клетки
на
раздражение
,
является
то
,
что
он
подчиняется
правилу
"
всё
или
ничего
",
т
.
е
.
возникает
только
при
достижении
раздражителем
некоторого
порогового
значения
,
и
дальнейшее
увеличение
интенсивности
раздражителя
уже
не
сказывается
ни
на
амплитуде
,
ни
на
продолжительности
ПД
.
5.
Распространение
потенциала
действия
по
миелиновым
и
безмиелиновым
нервным
волокнам
Впервые
скорость
распространения
потенциала
действия
109
(
возбуждения
)
по
нервному
волокну
была
измерена
профессором
физиологии
Кенигсбергского
университета
Германом
Гельмгольцем
в
1850
г
. –
спустя
год
после
того
как
ученый
И
.
Физо
измерил
скорость
распространения
света
.
Оказалось
,
что
скорость
распространения
возбуждения
составляет
всего
порядка
30
м
/
с
.
Значения
скорости
распространения
ПД
было
примерно
в
10 000 000
меньше
скорости
распространения
электрического
тока
по
металлическому
проводнику
и
даже
в
10
раз
медленнее
скорости
распространения
звука
в
воздухе
.
Полученные
результаты
,
с
одной
стороны
,
нанесли
удар
по
сторонникам
теории
мгновенного
распространения
возбуждения
,
но
одновременно
и
поставили
исследователей
перед
необходимостью
более
детально
изучить
различия
механизмов
проведения
электрического
потенциала
в
проводниках
и
нервном
волокне
.
Прежде
всего
,
следовало
дать
ответ
на
вопросы
:
почему
возбуждение
способно
распространяться
по
нервному
волокну
и
от
чего
зависит
скорость
распространения
нервного
импульса
.
Для
того
чтобы
ответить
на
эти
вопросы
,
рассмотрим
электрические
свойства
нервного
волокна
.
Оно
представляет
собой
цилиндр
,
боковую
поверхность
которого
образует
мембрана
,
отделяющая
внутренний
раствор
электролита
от
наружного
.
Это
придает
волокну
свойства
коаксиального
кабеля
,
изоляцией
которого
служит
клеточная
мембрана
.
Но
нервное
волокно
−
очень
плохой
кабель
.
Сопротивление
изоляции
этого
живого
кабеля
примерно
в
105
раз
меньше
,
чем
у
обычного
кабеля
,
так
как
в
первом
случае
ее
толщина
составляет
10 ~6
см
,
а
во
втором
−
около
10
см
.
Кроме
того
,
внутренняя
жила
живого
кабеля
−
это
раствор
электролита
,
удельное
сопротивление
которого
в
миллионы
раз
больше
сопротивления
металла
.
Поэтому
невозбужденное
нервное
волокно
плохо
приспособлено
для
передачи
электрических
сигналов
на
большие
расстояния
.
Было
установлено
,
что
уменьшение
электрического
потенциала
на
мембране
нервного
волокна
по
мере
удаления
от
источника
возбуждения
убывает
по
экспоненциальному
закону
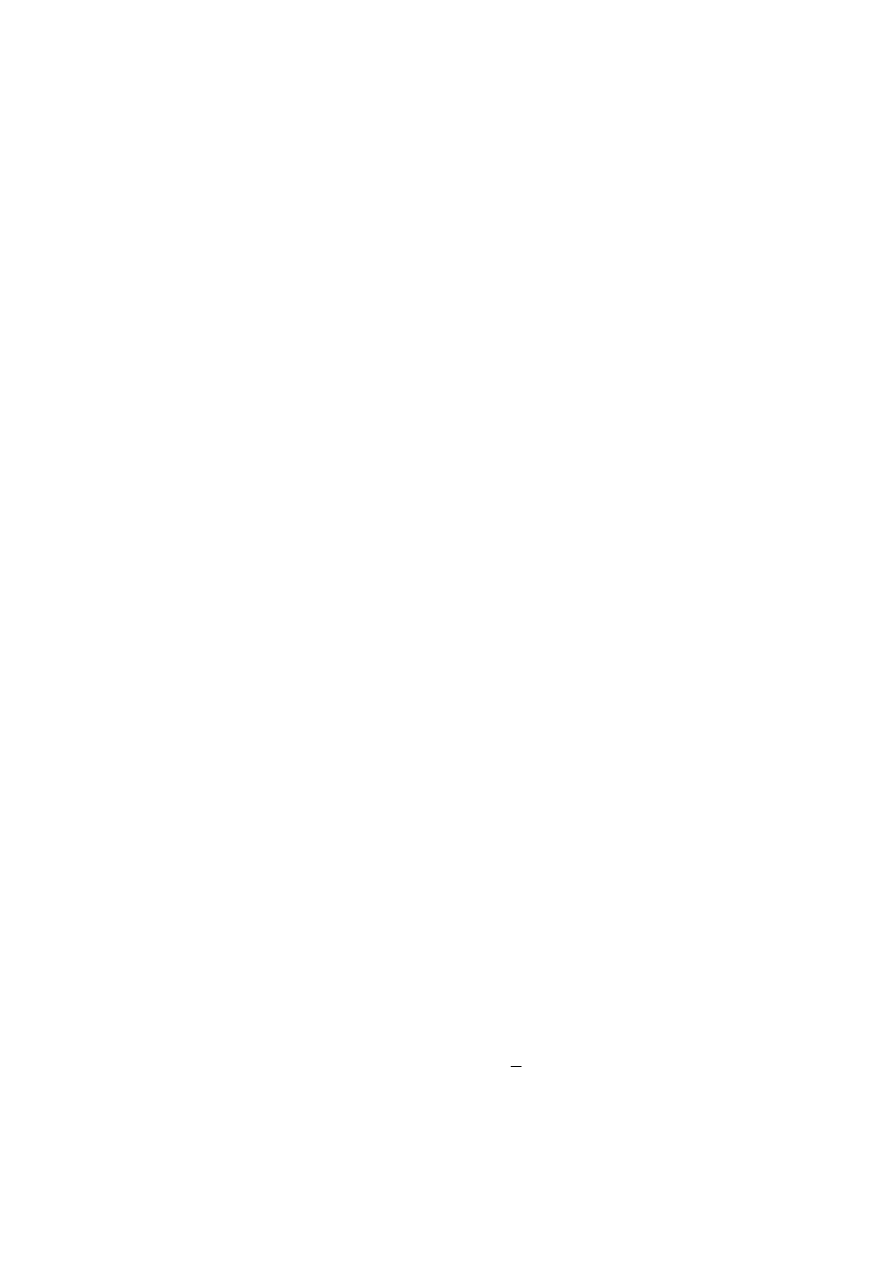
0
l
l
e
,
где
0
–
значение
потенциала
в
точке
возбуждения
,
l
–
110
значение
потенциала
в
точке
,
расположенной
на
расстоянии
l
от
источника
возбуждения
,
−
константа
длины
нервного
волокна
,
равная
расстоянию
,
на
котором
величина
потенциала
убывает
в
e
(
е
=2,718281828…)
раз
.
Константа
зависит
от
удельного
электрического
сопротивления
оболочки
нервного
волокна
m
,
удельного
электрического
сопротивления
цитоплазмы
i
,
радиуса
нервного
волокна
r:
2
m
i
r
Чем
больше
,
тем
больше
скорость
распространения
нервного
возбуждения
.
Как
следует
из
приведенной
выше
формулы
,
тем
больше
,
чем
больше
радиус
нервного
волокна
и
чем
больше
удельное
электрическое
сопротивление
мембраны
нервного
волокна
.
Для
повышения
скорости
Природа
использовала
обе
возможности
.
Для
простейших
организмов
она
создала
нервные
волокна
большого
диаметра
–
можно
вспомнить
гигантский
аксон
кальмара
,
диаметр
которого
достигает
0,5
мм
.
Для
более
развитых
животных
такой
путь
был
совершенно
неприемлем
–
слишком
много
места
в
тканях
занимали
бы
гигантские
нервные
волокна
.
Природа
пошла
по
другому
пути
:
создала
«
бронированные
»
нервные
волокна
,
покрытые
миелиновой
изоляцией
.
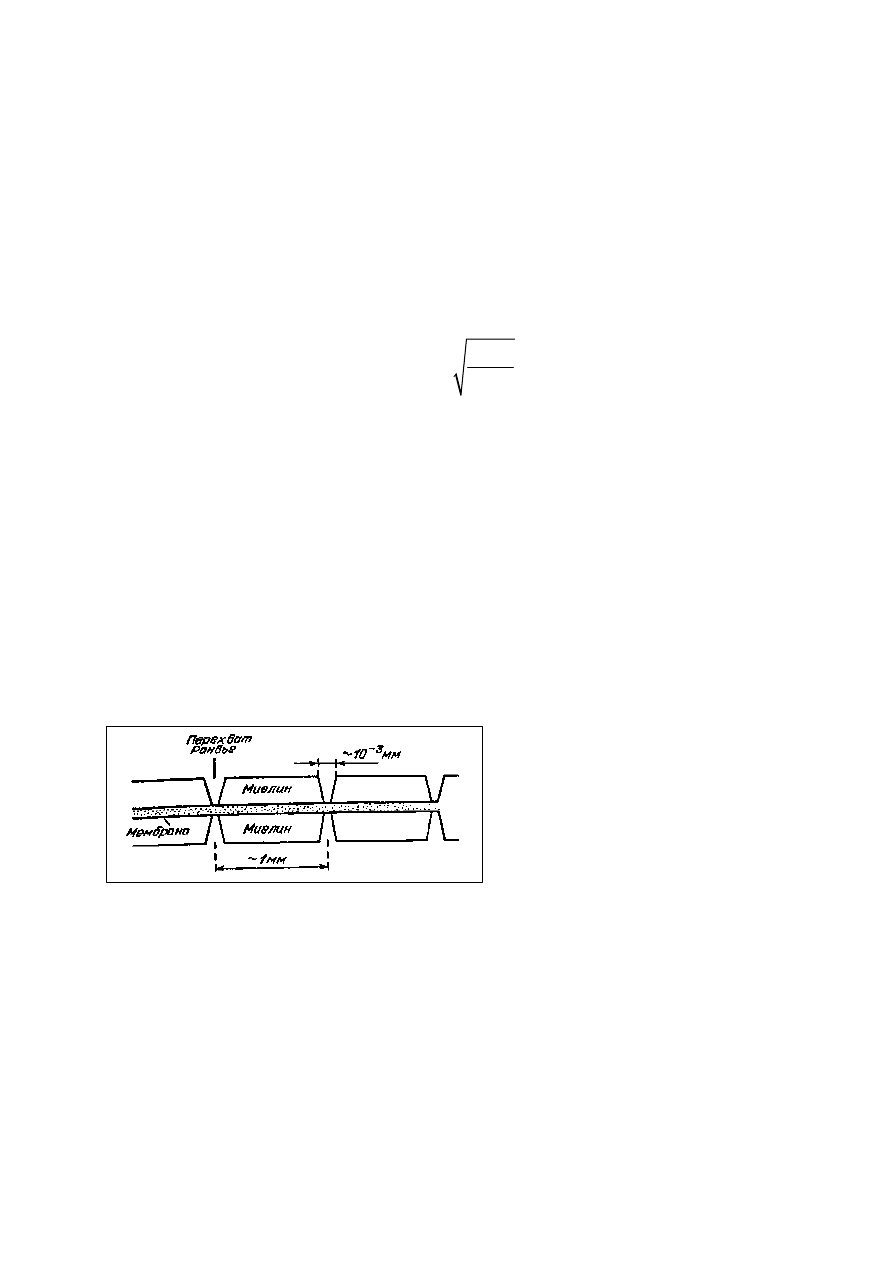
Миелин
представляет
собой
жироподобное
вещество
,
которое
повышает
электроизоляцию
нервных
волокон
(
увеличивает
удельное
электрическое
сопротивление
клеточной
мембраны
).
Причем
миелин
покрывает
нервное
волокно
сегментами
,
длиной
около
1
мм
,
а
между
сегментами
имеются
оголенные
участки
нервного
волокна
длиной
около
1
мкм
.
Участки
волокна
,
не
покрытые
миелином
,
получили
название
перехватов
Ранвье
.
В
области
перехватов
Ранвье
Рисунок
40.
Миелинизированное
нервное
волокно