Материал: kompendium_po_fizike
101
теорию
.
Таким
образом
,
за
открытием
природы
электрических
явлений
в
живых
организмах
видится
многолетний
труд
ученых
разных
направлений
:
ботаников
–
измеривших
осмотическое
давление
;
физиков
–
открывших
электрические
заряды
и
электрические
и
газовые
законы
;
химиков
–
создавших
теории
растворов
и
электролитической
диссоциации
;
математиков
–
труды
которых
позволили
создать
дифференциальное
и
интегральное
исчисление
.
2.
Мембранно
-
ионная
теория
генерации
биопотенциалов
клеткой
и
основные
опыты
,
её
подтверждающие
Свою
первую
статью
с
изложением
взглядов
на
происхождение
электричества
в
живых
организмах
Ю
.
Бернштейн
опубликовал
только
после
того
,
как
придумал
ряд
экспериментов
,
ее
подтверждающих
.
Ученый
провел
серию
эффектных
опытов
на
неповрежденной
мышце
лягушки
.
Он
показал
,
что
,
если
нагреть
один
конец
целой
неповрежденной
мышцы
,
от
нагретого
участка
к
холодному
участку
поверхности
мышцы
потечет
ток
.
Этот
результат
прямо
следовал
из
формулы
Нернста
–
в
более
теплом
месте
поверхности
возникает
больший
электрический
потенциал
,
чем
в
холодном
.
Электрический
ток
течет
по
направлению
от
точек
пространства
с
более
высоким
потенциалом
к
месту
с
более
низким
значением
электрического
потенциала
.
Некоторое
время
слабым
местом
в
теории
Бернштейна
было
отсутствие
данных
о
том
,
какой
именно
ион
создает
ПП
.
В
1905
г
.
молодой
сотрудник
В
.
Нернста
5
Гебер
обнаружил
,
что
все
соли
,
содержащие
калий
,
оказывают
на
мышцу
схожее
действие
:
участок
мышцы
,
на
который
действовал
раствор
соли
калия
,
приобретал
отрицательный
потенциал
по
отношению
к
другим
участкам
мышцы
.
Бернштейн
сразу
оценил
работы
Гебера
как
5
В
.
Нернст
в
это
время
занимал
пост
директора
Института
физики
в
Берлине
.
102
подтверждение
его
теории
.
Все
соли
калия
при
диссоциации
в
воде
повышали
наружную
концентрацию
ионов
калия
,
при
этом
отношение
0
i
K
K
уменьшается
,
соответственно
,
уменьшается
и
потенциал
той
области
мышцы
,
на
которую
действуют
соли
калия
.
В
результате
электрический
ток
тек
по
поверхности
неповрежденной
мышцы
по
направлению
к
участку
,
содержащему
повышенную
концентрацию
ионов
калия
.
Однако
эксперименты
Бернштейна
и
Гебера
были
лишь
косвенным
подтверждением
мембранной
гипотезы
о
происхождении
электрических
потенциалов
в
живых
организмах
.
Они
не
вызвали
особого
восторга
в
ученом
мире
,
и
это
было
предсказуемо
и
закономерно
.
Так
,
влияние
температуры
на
величину
потенциала
можно
было
объяснить
ускорением
химических
реакций
.
Влияние
калия
на
величину
ПП
также
могло
быть
истолковано
как
результат
химического
взаимодействия
солей
калия
с
веществом
клетки
.
Чтобы
подтвердить
правильность
гипотезы
,
требовалось
доказать
следующее
:
клетки
имеют
мембрану
,
которая
проницаема
лишь
для
одного
иона
(
или
нескольких
ионов
);
концентрация
этого
ионов
(
этих
ионов
)
по
обе
стороны
БМ
различная
;
потенциал
на
мембране
возникает
только
за
счет
проницаемости
мембраны
для
этого
иона
(
этих
ионов
)
и
он
равен
нернстовскому
потенциалу
.
Из
трех
китов
,
на
которых
покоилась
мембранная
теория
Бернштейна
,
мембрана
,
внутриклеточная
среда
и
наружный
раствор
, –
в
тот
исторический
момент
6
наиболее
изученной
была
наружная
среда
клетки
.
Гораздо
сложнее
было
определить
ионный
состав
внутриклеточной
жидкости
.
Тем
более
что
исследователям
требовалось
доказать
не
только
существование
калия
во
внутриклеточной
жидкости
,
но
и
то
,
что
калий
6
Здесь
будет
уместным
вспомнить
тот
факт
,
что
в
то
далекое
время
о
клеточных
мембранах
ученые
знали
слишком
мало
–
в
1902
г
.
ученый
Овертон
на
основании
того
,
что
в
клетку
легко
проникают
вещества
,
растворимые
в
липидах
,
предположил
,
что
клеточная
мембрана
содержит
в
своем
составе
липиды
.
103
находится
внутри
клетки
в
состоянии
свободных
ионов
.
Решить
эту
проблему
удалось
только
тогда
,
когда
был
освоена
технология
изготовления
стеклянных
микроэлектродов
,
с
помощью
которых
можно
было
проникнуть
внутрь
клетки
,
и
когда
была
обнаружена
гигантская
клетка
.
В
1936
г
.
англичанин
Дж
.
Юнг
,
специалист
по
головоногим
моллюскам
,
обнаружил
кальмара
,
у
которого
диаметр
нервного
волокна
доходил
до
миллиметра
.
Нервное
волокно
–
это
клетка
,
и
по
клеточным
масштабам
аксон
кальмара
был
гигантской
клеткой
,
хотя
сам
моллюск
вовсе
не
был
гигантом
.
Нервное
волокно
кальмара
,
будучи
выделенным
из
организма
моллюска
и
помещенное
в
морскую
воду
,
не
погибало
.
Впервые
ученые
получили
возможность
проводить
эксперименты
на
клеточном
уровне
.
В
1939
г
.
английские
ученые
А
.
Ходжкин
и
его
ученик
А
.
Хаксли
измерили
разность
потенциалов
на
аксоне
кальмара
.
Им
удалось
также
доказать
,
что
внутри
аксона
кальмара
имеется
много
ионов
калия
и
ионы
калия
образуют
своеобразный
ионный
газ
,
т
.
е
.
находятся
в
свободном
состоянии
.
3.
Потенциал
покоя
.
Уравнение
Нернста
.
Уравнение
Гольдмана
-
Ходжкина
-
Катца
Потенциал
покоя
(
ПП
,
мембранный
потенциал
покоя
).
ПП
называется
разность
потенциалов
между
внутренней
и
наружной
сторонами
клеточной
мембраны
,
возникающей
в
состоянии
покоя
клетки
.
У
живых
клеток
в
покое
между
внутренним
содержимым
клетки
и
наружным
раствором
существует
отрицательная
разность
потенциалов
(
ПП
)
порядка
60-90
мВ
,
которая
локализована
на
поверхностной
мембране
.
Внутренняя
сторона
мембраны
заряжена
электроотрицательно
по
отношению
к
наружной
.
ПП
обусловлен
избирательной
проницаемостью
покоящейся
мембраны
для
ионов
К
+
(
Ю
.
Бернштейн
, 1902, 1912;
А
.
Ходжкин
и
Б
.
Катц
, 1947).
Предположим
,
что
клетку
с
мембраной
,
проницаемой
только
для
ионов
калия
,
поместили
в
электролит
,
где
их
концентрация
меньше
,
чем
внутри
клетки
.
Сразу
после
соприкосновения
104
мембраны
с
раствором
ионы
калия
начнут
выходить
из
клетки
наружу
,
как
выходит
газ
из
надутого
шара
.
Но
каждый
ион
несет
с
собой
положительный
электрический
заряд
,
и
чем
больше
ионов
калия
покинет
клетку
,
тем
более
электроотрицательным
станет
ее
содержимое
.
Поэтому
на
каждый
ион
калия
,
выходящий
из
клетки
,
будет
действовать
электрическая
сила
,
препятствующая
его
движению
наружу
.
В
конце
концов
установится
равновесие
,
при
котором
электрическая
сила
,
действующая
на
ион
калия
в
канале
мембраны
,
будет
равна
силе
,
обусловленной
различием
концентраций
ионов
калия
внутри
и
вне
клетки
.
Очевидно
,
что
в
результате
такого
равновесия
между
внутренним
и
наружным
растворами
появится
разность
потенциалов
.
При
этом
,
если
за
нуль
потенциала
принять
потенциал
внешнего
раствора
,
то
потенциал
внутри
клетки
будет
отрицательным
.
Эта
разность
потенциалов
–
самое
простое
из
наблюдаемых
биоэлектрических
явлений
–
носит
название
«
потенциал
покоя
»
клетки
.
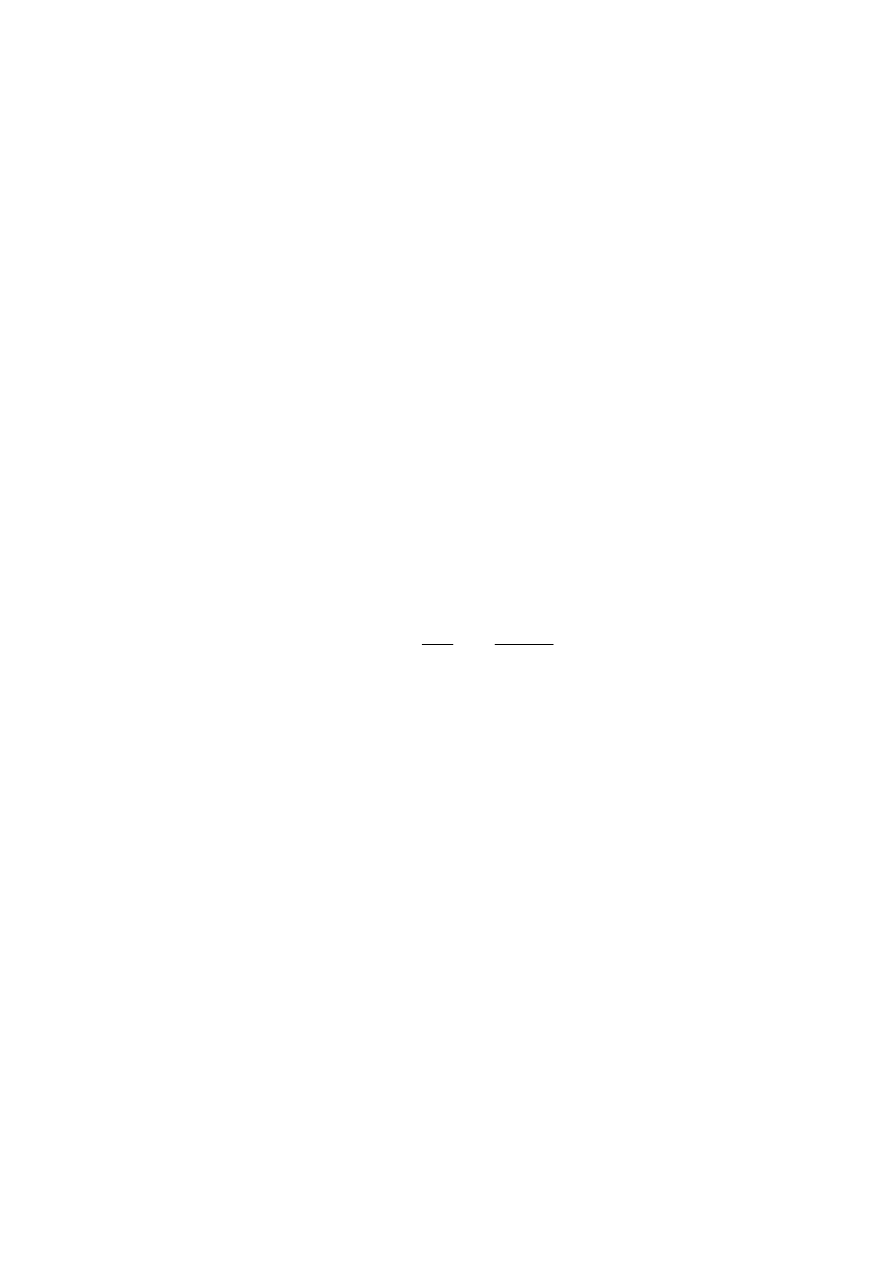
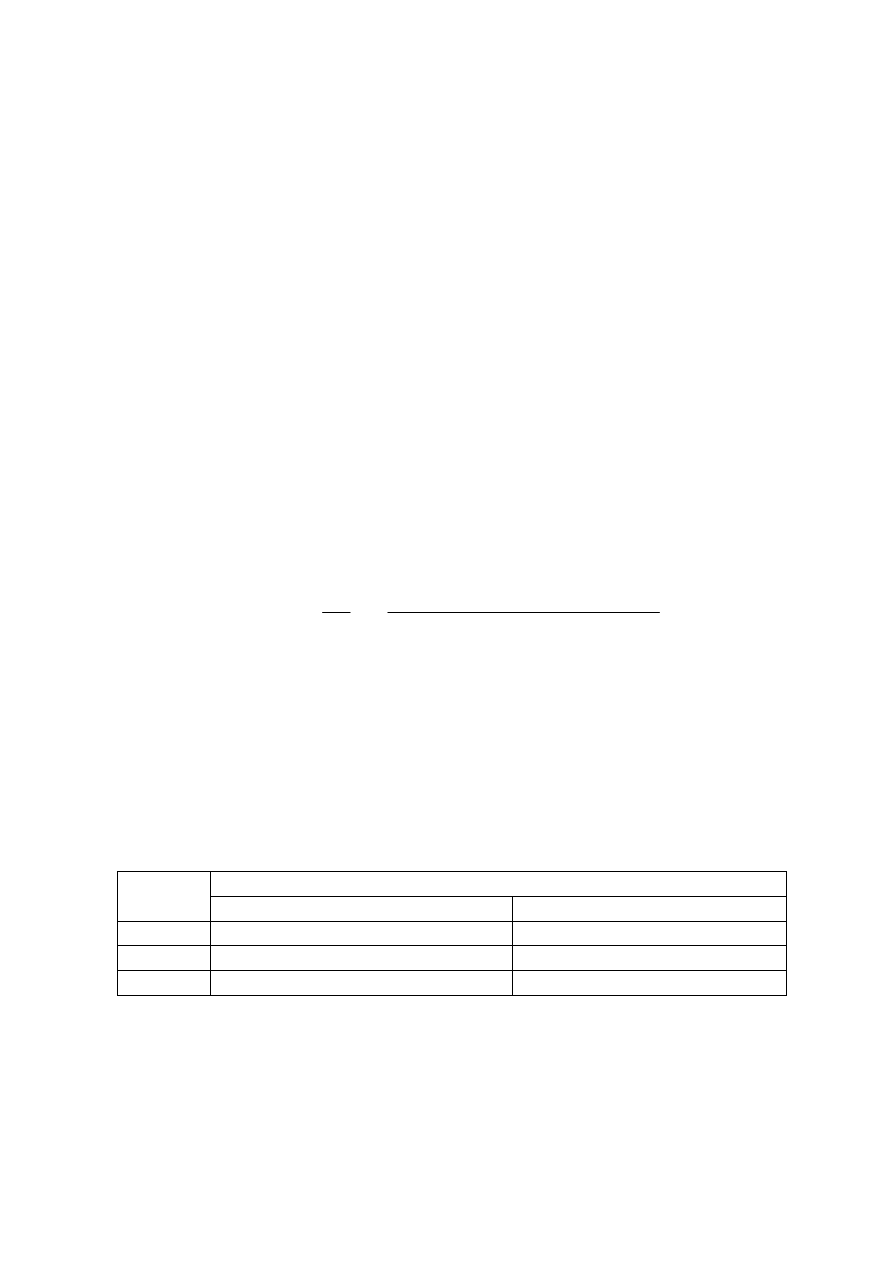
В
первом
приближении
величину
ПП
можно
рассчитать
с
помощью
формулы
Нернста
:
0
ln
i
н
K
RT
F
K
,
где
i
K
−
концентрация
ионов
калия
внутри
клетки
,
0
K
−
концентрация
ионов
калия
снаружи
клетки
.
Подставляя
численные
значения
в
формулу
Нернста
,
получим
значение
ПП
порядка
–87
мВ
,
что
весьма
близко
к
экспериментально
измеренному
значению
ПП
.
Дальнейшие
исследования
показали
,
что
вклад
в
формирование
ПП
вносят
не
только
ионы
калия
,
но
и
ионы
натрия
и
хлора
.
Концентрация
К
+
в
протоплазме
примерно
в
50
раз
выше
,
чем
во
внеклеточной
жидкости
,
поэтому
,
диффундируя
из
клетки
,
ионы
выносят
на
наружную
сторону
мембраны
положительные
заряды
,
при
этом
внутренняя
сторона
мембраны
,
практически
не
проницаемой
для
крупных
органических
анионов
,
приобретает
отрицательный
потенциал
.
Поскольку
проницаемость
мембраны
в
покое
для
Na
+
примерно
в
100
раз
ниже
,
чем
для
К
+
,
диффузия
натрия
из
внеклеточной
жидкости
(
где
он
является
основным
катионом
)
в
протоплазму
мала
и
лишь
незначительно
снижает
105
ПП
,
обусловленный
ионами
К
+
.
В
скелетных
мышечных
волокнах
в
возникновении
потенциала
покоя
важную
роль
играют
также
ионы
Cl
-
,
диффундирующие
внутрь
клетки
.
Следствием
ПП
является
ток
покоя
,
регистрируемый
между
поврежденным
и
интактным
участками
нерва
или
мышцы
при
приложении
отводящих
электродов
.
Мембраны
нервных
и
мышечных
клеток
(
волокон
)
способны
изменять
ионную
проницаемость
в
ответ
на
сдвиги
мембранного
потенциала
.
При
увеличении
ПП
(
гиперполяризация
мембраны
)
проницаемость
поверхностных
клеточных
мембран
для
Na
+
и
К
+
падает
,
а
при
уменьшении
ПП
(
деполяризация
)
она
возрастает
,
причём
скорость
изменений
проницаемости
для
Na
+
значительно
превышает
скорость
увеличения
проницаемости
мембраны
для
К
+
.
Более
точные
значения
для
ПП
вычисляются
по
формуле
Гольдмана
-
Ходжкина
-
Катца
(
ГХК
),
которая
учитывает
проницаемость
КМ
в
покое
не
только
для
ионов
калия
,
но
и
для
ионов
натрия
и
хлора
:
0
0
0
ln
K
Na
Cl
i
i
ПП
K
Na
Cl
i
P K
P
Na
P Cl
RT
F
P K
P
Na
P Cl
,
где
P
K
, P
Na
, P
Cl
–
проницаемость
КМ
для
ионов
калия
,
натрия
и
хлора
,
выражения
[…]
i
и
[…]
0
обозначают
концентрации
соответствующих
молекул
внутри
и
вне
клетки
.
В
качестве
примера
вычислим
величину
ПП
для
гигантского
аксона
кальмара
.
Концентрации
ионов
внутри
и
вне
аксона
приведены
ниже
(
таблица
3).
Таблица
3.
Концентрации
ионов
Na
+
, K
+
, Cl
-
внутри
и
снаружи
аксона
кальмара
Ион
Концентрация
(
моль
на
1
кг
воды
)
Внутри
(i)
аксона
калльмара
Вне
(0)
аксона
кальмара
Na
+
70 420
K
+
360 10
Cl
-
160 500
В
состоянии
покоя
при
физиологических
условиях
соотношение
коэффициентов
проницаемости
равно
:
Р
к
:
Р
Na
: P
Cl
= 1 : 0,04 : 0,45.
Диффузия
ионов
калия
и
хлора
идет
через
КМ
в
обе
стороны
.
Натрий
за
счет
механизма
пассивного
транспорта
проникает