Материал: Методы
Это подчеркивает большое значение пусковых рефлекторных влияний, осуществляемых преимущественно в первую фазу на желудочные железы. Во вторую фазу железы желудка испытывают в основном корригирующие влияния. Эти влияния путем усиления и ослабления деятельности желез обеспечивают соответствие секреции количеству и свойствам пищевого желудочного содержимого, т. е. осуществляют коррекцию секреторной деятельности желудка. Сокоотделение при механическом раздражении желудка возбуждается рефлекторно с механорецепторов слизистой оболочки и мышечного слоя стенки желудка. Секреция резко уменьшается после перерезки блуждающих нервов. Кроме того, механическое раздражение желудка, особенно его пилорической части, приводит к высвобождению из G-клеток гастрина. Повышение кислотности содержимого антральной части желудка тормозит высвобождение гастрина и снижает желудочную секрецию. В фундальной части желудка кислотность его содержимого рефлекторно усиливает секрецию, особенно выделение пепсиногена. Определенное значение в реализации желудочной фазы секреции имеет гистамин, значительное количество которого образуется в слизистой оболочке желудка.
Мясной бульон, капустный сок, продукты гидролиза белков при введении в тонкую кишку вызывают выделение желудочного сока. Нервные влияния с рецепторов кишечника на железы желудка обеспечивают секрецию в третью, кишечную фазу. Возбуждающие и тормозные влияния из двенадцатиперстной и тощей кишки на железы желудка осуществляются с помощью нервных и гуморальных механизмов, корригирующих секрецию. Нервные влияния передаются с механо- и хеморецепторов кишечника. Стимуляция желудочных желез в кишечную фазу является прежде всего результатом поступления в двенадцатиперстную кишку недостаточно физически и химически обработанного содержимого желудка. В стимуляции желудочной секреции принимают участие всосавшиеся в кровь продукты гидролиза питательных веществ, особенно белков. Эти вещества могут возбуждать железы желудка опосредованно через гастрин и гистамин, а также непосредственно действуя на желудочные железы. Торможение желудочной секреции в ее кишечную фазу вызывается рядом веществ в составе кишечного содержимого: продукты гидролиза жира, полипептиды, аминокислоты, продукты гидролиза крахмала, Н+ (рН ниже 3 оказывает сильное тормозное действие). Высвобождение в двенадцатиперстной кишке секретина и ХЦК под влиянием поступившего в кишечник содержимого желудка и образовавшихся продуктов гидролиза питательных веществ тормозит секрецию соляной кислоты, но усиливает секрецию пепсиногена. Желудочную секрецию тормозят и другие кишечные гормоны из группы гастронов и глюкагон, а также серотонин.
В настоящее время установлено участие и других биологически активных веществ, образующихся в слизистой оболочке желудочно-кишечного тракта, в регуляции секреторной активности поджелудочной железы. К ним относятся холецистокинин и уропанкреозимин. Холецистокинин образуется в слизистой оболочке двенадцатиперстной кишки и верхнего отдела тонкого кишечника. Освобождение этого гормона происходит под влиянием продуктов расщепления белка, HCl, желудочного сока. Холецистокинин вызывает отделение поджелудочного сока с обильным содержанием ферментов. Уропанкреозимин также стимулирует ферментообразовательную функцию поджелудочной железы.
29. Исследование секреторной деятельности слюнных желез.
Слюна выделяется в полость рта через протоки трех пар крупных слюнных желез и из множества мелких желез, находящихся на поверхности языка и в слизистой оболочке нёба и щек. Для изучения функции слюнных желез Иван Петрович Павлов предложил применять у собак операцию выведения на поверхность кожи щеки отверстия выводного протока одной из слюнных желез. После того как собака поправилась, собирают слюну, исследуют ее состав и измеряют количество.
Так И.П. Павлов установил, что выделение слюны происходит рефлекторно, в результате раздражения пищей нервных рецепторов слизистой оболочки полости рта. Возбуждение передается в центр слюноотделения, расположенный в продолговатом мозге, откуда оно направляется по центробежным нервам к слюнным железам, которые усиленно выделяют слюну. Это безусловно рефлекторное отделение слюны.
И.П. Павлов обнаружил, что слюна может выделяться и тогда, когда собака только видит пищу или ощущает ее запах. Эти открытые И.П. Павловым рефлексы были им названы условными рефлексами, т. е. они вызваны условиями, которые предшествуют возникновению безусловного рефлекса.
30. Измерение скорости клубочковой фильтрации.
Определение СКФ по клиренсу эндогенного креатинина (проба Реберга). Креатинин - конечный продукт креатин-фосфатной реакции. Креатинин образуется в мышцах и затем выделяется в кровь. Концентрация эндогенного креатинина в крови практически постоянна (в условиях покоя). Креатинин фильтруется, не реабсорбируется и обычно не секретируется. Всё количество креатинина, которое профильтровалось выделяется из организма со вторичной мочой. Значит, количество креатинина в первичной моче равно количеству креатинина во вторичной моче. В ряде случаев креатинин секретируется, поэтому результат бывает неточным (норма 90-140 мл/мин).
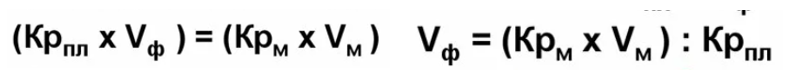
Также для определения скорости клубочковой фильтрации используется определение клиренса инулина. Клиренс – коэффициент очищения плазмы крови от инулина (мл/мин). Инулин (полимер фруктозы) вводится внутривенно. Инулин фильтруется в почечных клубочках, не реабсорбируется и не секретируется в канальцах. Все количество инулина, которое профильтровалось, выводится с конечной мочой. Зная концентрацию инулина в плазме крови, количество конечной мочи и концентрацию инулина в конечной моче, можно рассчитать объем плазмы, который профильтровался в клубочках (т.е.объем первичной мочи). Это и есть показатель скорости клубочковой фильтрации.
31. Оценка величины почечной реабсорбции.
Любые виды транспорта, требующие переносчиков (первичный активный, вторичный активный, облегченная диффузия), характеризуются насыщением. Это означает, что при относительно низких концентрациях некоторых веществ в крови (а следовательно, и в фильтрате) переносчики успевают полностью реабсорбировать такие вещества и в окончательной моче их нет. При превышении же некоторой критической, или пороговой, концентрации переносчики становятся полностью занятыми (насыщаются), вещество уже не может реабсорбироваться полностью и появляется в моче. Такие вещества называются пороговыми. К важнейшим из пороговых веществ относятся: глюкоза, аминокислоты, бикарбонат, фосфат.
Для полезных органических субстратов (глюкозы и аминокислот) пороговая концентрация намного выше нормальной концентрации в крови, поэтому в норме эти вещества с мочой не выводятся (они появляются в моче только при патологии, например при сахарном диабете, когда концентрация глюкозы в крови резко возрастает и становится выше пороговой). Для бикарбоната пороговая концентрация лишь ненамного выше нормальной концентрации в крови, поэтому обычно его в моче нет, но он выводится с мочой даже при небольшом защелачивании крови (алкалозе), что имеет первостепенное значение для поддержания кислотно-щелочного равновесия. Наконец, для фосфата пороговая концентрация ниже верхней границы нормы содержания в крови, поэтому он может содержаться в моче даже в обычных условиях, образуя одну из буферных систем мочи — фосфатный буфер (но при низком содержании фосфата в пище, а соответственно и низкой концентрации в крови, он полностью реабсорбируется и в моче не содержится).
Реабсорбционную способность почек можно исследовать по глюкозе. Глюкоза относится к пороговым веществам. Известно, что глюкоза в норме полностью реабсорбируется клетками проксимальных канальцев и в окончательной моче отсутствует. Если же ее концентрация в плазме крови возрастает столь значительно, что количество профильтровавшейся глюкозы превышает реабсорбционную способность канальцев, то она появляется в окончательной моче.
32. Принцип оценки величины почечной секреции.
Секреторная способность почечных канальцев оценивается по органическим чужеродным веществам, таким как краситель феноловый красный, диодраст, парааминогиппуровая кислота, пенициллин, холин и другие. Эти вещества фильтруются в почечных канальцах, попадая в первичную мочу, а затем еще и секретируются клетками почечных канальцев. Следовательно, в окончательной моче их должно быть больше, чем в фильтрате. Поэтому, сравнив содержание фенолрота в моче и в фильтрате, можно по разности этих произведений определить количество профильтровавшегося фенолрота.
33. Правила и условия выработки условного рефлекса.
1. Для выработки условного рефлекса необходимо наличие двух раздражителей. Один из них безусловный раздражитель, который вызывает безусловно-рефлекторную реакцию (пища, болевой раздражитель и др.), этот раздражитель является подкреплением условно-рефлекторной реакции. Второй раздражитель — условный (сигнальный) будет сигнализировать о безусловном раздражении (свет, звук, вид пищи и т. д.).
2. Необходимо многократное сочетание условного и безусловного раздражителя (хотя возможно образование условного рефлекса при однократном сочетании условного и безусловного раздражителя).
3. Условный раздражитель должен предшествовать действию безусловного. Время, в течение которого условный раздражитель действует самостоятельно, получило название времени изолированного действия условного раздражителя. Время, когда условный и безусловный раздражители действуют вместе, получило название времени совместного действия условного и безусловного раздражителя. В зависимости от длительности времени изолированного действия условного раздражителя различают: совпадающий условный рефлекс (время изолированного действия условного раздражителя 1-2 с); если время изолированного действия условного раздражителя больше 2 с, то такой рефлекс называется отставленным.
4. В качестве условного раздражителя может быть использован любой раздражитель внешней или внутренней среды, но он должен обладать следующими свойствами: должен быть по возможности индифферентным, не вызывать сам по себе оборонительной реакции; не должен быть чрезмерной силы; должен привлекать внимание животного; должен быть экологически близким животному (например, у рыб можно выработать условный рефлекс на звонок, но для этого необходимо большое количество сочетаний условного и безусловного раздражителей, а на сочетание плеска воды с подачей корма условный рефлекс вырабатывается через 2-3 сочетания).
5. При действии условного и безусловного раздражителей возбуждение от безусловного раздражителя должно быть более сильным, чем от условного.
6. Безусловное подкрепление должно соответствовать своим качествам, например, пища должна быть съедобной.
7. При выработке условных рефлексов необходимо устранить посторонние раздражители, т. к. они могут вызывать торможение условного рефлекса.
8. Животное, у которого вырабатывается условный рефлекс, должно быть здоровым и сохранять нормальное поведение.
9. У животного при выработке условного рефлекса должно быть выраженным мотивационное возбуждение, например, при выработке пищевого слюноотделительного рефлекса животное должно быть голодным, у сытого животного этот рефлекс не вырабатывается.
Типичный пример — выработка условнорефлекторного слюноотделения. Предъявление пищи — это безусловный раздражитель: у более или менее голодного животного или человека оно всегда вызывает слюноотделение. Если предъявление пищи несколько раз предварять включением лампочки, то через некоторое количество повторов в ответ на включение лампочки будет выделяться слюна.
Если безусловный раздражитель перестает подкрепляться, то условный рефлекс постепенно перестает проявляться. Например, если выработать условнорефлекторное слюноотделение на включение лампочки, а затем это включение перестать сопровождать предъявлением пищи, то через некоторое время включение лампочки перестанет вызывать слюноотделение. Это явление называется условным торможением (так как оно вырабатывается при определенном условии, а именно неподкреплении). При условном торможении связь между условным и безусловным раздражителем не стирается, а затормаживается. Например, если человек что-либо выучил, а потом полностью забыл, то для восстановления забытого ему не надо снова учиться: достаточно лишь однократного повторения материала. Существуют несколько видов условного торможения, но все они обладают главным общим свойством: возникают в ответ на неподкрепление.