Материал: Методы
3. Методика регистрации суммарной биоэлектрической активности головного мозга: виды отведений, регистрируемые ритмы.
Электроэнцефалография (ЭЭГ) - метод исследования деятельности головного мозга человека; основан на суммарной регистрации биоэлектрической активности отдельных зон, областей, долей мозга. Применяется в современной нейрофизиологии, а также в неврологии и психиатрии.
По способу регистрации ЭЭГ-отведения могут быть разделены на монополярные и биполярные. Биполярным называют отведение, при котором оба ЭЭГ-электрода расположены над мозгом. Монополярным называют отведение, которое регистрирует изменения электрического потенциала от электрода, расположенного над мозгом, относительно другого электрода, изменение потенциала под которым практически равно нулю. С этой целью в монополярном отведении используется либо электрод, расположенный на значительном удалении от мозга, либо электрод, на который подается некий усредненный потенциал, величина которого не обусловлена каким-либо одним локальным источником. Электрод, расположенный над мозгом, называют активным, реже используется наименование «рабочий». Электрод, удаленный от мозговой ткани, носит название референтного. Наиболее часто референтный электрод располагают на мочке уха.
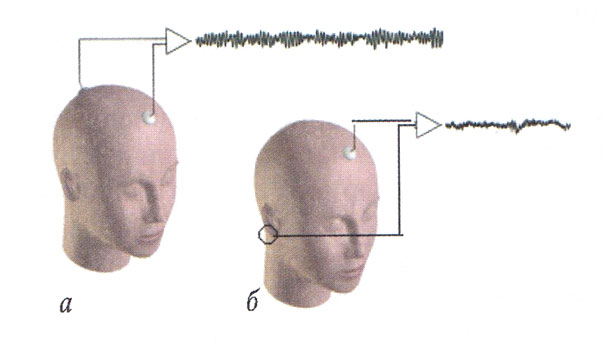
Рассмотрим происхождение ЭЭГ, получаемой при каждом варианте отведения. На ЭЭГ регистрируется разность потенциалов между двумя электродами, на положение «пишущего пера» будут в равной мере влиять изменения потенциала под каждым из пары электродов. При биполярном отведении регистрируемая кривая отражает алгебраическую сумму колебаний электрического потенциала под каждым из двух электродов. Поэтому суждение о форме колебания под каждым из электродов на основе одного биполярного отведения невозможно. Для этого выполняется анализ активности, зарегистрированной от нескольких пар электродов в различных комбинациях, что позволит выявить локализацию источника активности.
В случае идеального монополярного отведения под активным электродом генерируется переменный потенциал, соответствующий электрической активности мозга. Под референтным электродом, который находится вдали от мозга, имеется некий постоянный потенциал, который не влияет на «положение пера». Следовательно, суммарный электрический процесс будет отражать колебания электрического потенциала, генерируемого мозгом под активным электродом. Таким образом, монополярное отведение в большей степени регистрирует электрическую активность определенного участка коры. Тем не менее ЭЭГ представляет собой отражение суммарной активности, и, соответственно, даже отдельный электрод отображает активность не какого-то ограниченного источника, а многочисленных генераторов и даже весьма удаленных от электрода. Таким образом, при монополярном отведении зарегистрированная ЭЭГ отражает не только активность какого-то локального источника, а представляет суммарную активность большого объема мозговой ткани в области рабочего электрода.
4. Представление о микроэлектродной технике.
Микроэлектрод – это миниатюрный электрический проводник, по которому электрический ток поступает в какую-либо среду (или регистрирующий прибор) или уходит из нее. Микроэлектрод находится в непосредственном контакте с поверхностью биологической ткани. В электрофизиологии микроэлектроды используются для регистрации биопотенциалов с возбудимых клеток (нервных, мышечных), либо для электрической стимуляции этих клеток.
Для клеток ЦНС микроэлектродную технику впервые стали применять в лаборатории австралийского нейрофизиолога Дж. Экклса в 1951 году. Благодаря работам сотрудников этой лаборатории, а затем и работам многих и многих ученых в других лабораториях мира, к настоящему времени мы знаем уже очень многое о физиологических процессах, протекающих в отдельных нервных клетках ЦНС. И тем не менее до сих пор любой исследователь, приступая к изучению свойств нервных клеток высших отделов ЦНС, таких, например, как кора больших полушарий мозга, натыкается на целый ряд объективных трудностей, связанных в первую очередь с особенностями строения этих отделов.
Во-первых, структура нервной ткани такова, что даже в маленьком ее участке могут быть расположены десятки и сотни нейронов, обладающих различными характеристиками, имеющих различную структуру ветвлений своих отростков. Поэтому, погружая электрод в глубину коры, исследователь неизбежно разрушает какие-то связи между клетками, разрушает и сами клетки, попадающиеся на пути следования электрода к необходимому участку мозга. А это, в свою очередь, не может не сказаться на активности тех клеток, которые подлежат изучению.
1. Метод электроэнцефалографии. Ритмы ээг.
ЭЭГ – регистрация суммарной электрической активности головного мозга с помощью электродов, расположенных на поверхности головы.
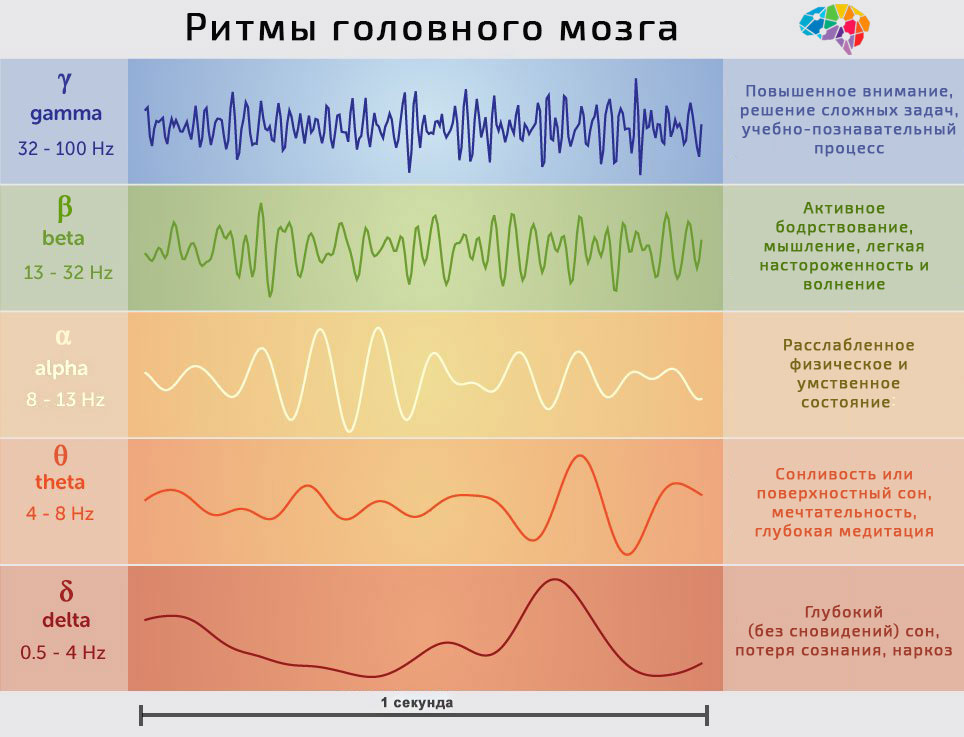
Ритм ЭЭГ – регулярный (имеющий постоянную частоту) тип электрической активности, соответствующий некоторому определенному состоянию мозга и связанный с определенными церебральными механизмами. При описании ритма указывается его частота, типичная для определенного состояния и области мозга, амплитуда и некоторые характерные черты его изменений во времени при изменениях функциональной активности мозга. Основные ритмы ЭЭГ связаны с различными состояниями человека.
Альфа-ритм — регулярный, синусоидальной формы, с частотой 8-13 Гц (колебаний в 1 с) и амплитудой 20-80 мкВ (микровольт). Альфа-ритм регистрируется при отведении биопотенциалов от всех зон коры большого мозга, но более постоянно — от затылочной и теменной областей. Альфа-ритм регистрируется у человека в условиях физического и умственного покоя, обязательно при закрытых глазах и отсутствии внешних раздражений.
Бета-ритм имеет частоту колебаний 14-35 Гц. Амплитуда 10-30 мкВ. Может быть зарегистрирован в любых областях мозга, но более выражен в лобных долях. При открывании глаз, умственной работе и других раздражителях альфа-ритм быстро сменяется бета-ритмом. Это явление смены редкого ритма на более частый получило название реакции активации (или десинхронизации).
Тета-ритм имеет частоту 4-7 Гц и амплитуду 100-150 мкВ. Наблюдается в состоянии неглубокого сна, при кислородном голодании мозга, наркозе.
Дельта-ритм характеризуется медленными колебаниями с частотой 0,5-3 Гц, высокой амплитудой 250-300 мкВ, вплоть до 1000 мкВ. Обнаруживается во всех зонах мозга, во время глубокого сна, а также при наркозе. У детей до 7 лет дельта-ритм может быть зарегистрирован и в бодрствующем состоянии.
Гамма-ритм — частота колебания выше 30 Гц, иногда достигает 100 Гц, амплитуда обычно не превышает 15 мкВ. Регистрируется в прецентральной, фронтальной, височной и теменной зонах коры головного мозга. Обычно очень хорошо наблюдается при решении задач, которые требуют максимального сосредоточения и внимания.
2. Представление о методе вызванных потенциалов.
Если ЭЭГ – это регистрация спонтанной электрической активности мозга, то вызванные потенциалы (ВП) – это электрические отклики мозга на отдельные стимулы. ВП – это биоэлектрические колебания в нервных структурах в ответ на раздражение рецепторов или эффекторных путей, находящиеся в строго определенной временной связи с моментом предъявления стимула. Так как на фоне спонтанной активности ВП трудно различимы, их запись осуществляется специальными техническими средствами, позволяющими выделить сигнал из шума. Для этого суммируют некоторое число отрезков ЭЭГ, находящихся в одинаковой временной связи с моментом стимуляции. В результате такого наложения получается, как бы усиление (умножение) интересующего эффекта. Отсюда другое название метода – метод усредненных ВП.
К настоящему времени с помощью ВП удалось зарегистрировать колебания, связанные с активностью двигательной зоны коры головного мозга (моторный потенциал), с завершением движения, с состоянием намерения произвести какое-либо действие (Е-волна).
Форма, амплитуда и латентный период ВП зависят от места приложения электрода (т. е. участка мозга), модальности и интенсивности стимула, состояния субъекта и его индивидуальных особенностей.
Вторая трудность состоит в том, что размеры сомы клеток, как уже указывалось, чрезвычайно малы, а для того, чтобы зарегистрировать электрические реакции в отдельной клетке без помех со стороны рядом расположенных нейронов, нужно, чтобы кончик электрода (его регистрирующая поверхность) был на два порядка меньше, чем поверхность самой клетки. То есть если размер сомы клетки, активность которой нужно зарегистрировать, составляет 100—150 мк, то кончик электрода не должен превышать 1—1,5 мк. При этом электрод не должен сгибаться при введении в мозг и должен иметь не очень высокое сопротивление.
Третья трудность состоит в том, что электрод должен быть изолирован от мозга на всем протяжении, кроме кончика, который призван регистрировать активность клетки, и места его соединения с регистрирующим прибором.
Для того чтобы хоть в какой-то мере обойти эти трудности, физиологи стали использовать металлические электроды, изготовленные из твердых металлов или их сплавов (платина, иридий, вольфрам, нихром) и покрытые лаком, который применяется для изоляции проводов. Кончики таких электродов затачивали электрохимическим способом.
Однако такие электроды можно было использовать в основном для внеклеточной регистрации активности, поскольку кончик металлического электрода, истонченный до 0,1 мк, оказывался слишком гибким, из какого бы металла его ни изготовили, а лаковое покрытие как изолятор — слишком грубым для внутриклеточных регистраций. Поэтому для внутриклеточных регистраций стали использовать стеклянные электроды, заполненные раствором электролита. Как это делается? Из прочного стекла вытягивается микропипетка с очень тоненьким (0,2—0,3 мк) кончиком, который заполняется токопроводящим раствором. Кончик такого электрода очень прочен и поэтому достаточно легко проходит через мозговую ткань, прокалывает поверхность клетки и проникает в нее. Поскольку прокол очень тонкий, мембрана клетки довольно плотно охватывает электрод, и клетка в таком состоянии может работать часами. Конечно, есть опасность, что раствор электролита путем диффузии может проникнуть внутрь клетки и повлиять на ее химический состав, а следовательно, в какой-то мере и на ее функции — создать так называемый диффузный потенциал, сравнимый по величине с электрическими потенциалами самой клетки. Чтобы этой опасности избежать или свести ее к минимуму, для заполнения стеклянных микропипеток используют растворы, которые дают минимальный диффузный потенциал. Таким свойством обладают электролиты, у которых подвижность анионов и катионов очень близка. Наиболее удобным из них является хлористый калий. Поэтому стеклянные электроды заполняют, как правило, раствором хлористого калия. Его концентрация должна быть достаточно высокой, чтобы снизить собственное сопротивление электрода. В микропипетку, заполненную трехмолярным солевым раствором, погружают тонкий металлический электрод и соединяют его с электроизмерительным прибором — осциллографом с усилителем постоянного тока. Можно начинать регистрацию электрических процессов в клетке.
Однако такой вид регистрации пригоден только для работы с нервной тканью «ин витро», то есть извлеченной из организма и помещенной в специальный раствор, поддерживающий ее жизнеспособность, или в так называемых острых экспериментах, при которых животное обездвиживают специальными препаратами (например, приготовленными на основе яда кураре) и наркотизируют. Все эти процедуры призваны обеспечить неподвижность и целостность кончика электрода в ткани. В хронических экспериментах, при проведении которых животное свободно передвигается по экспериментальной камере или подвергается нежесткой фиксации в специальном станке, используют, как правило, металлические электроды, позволяющие проводить внеклеточную регистрацию активности сразу нескольких клеток. В результате экспериментатор получает так называемую мультинейронную активность, из которой он выделяет импульсы отдельных нейронов, и имеет возможность анализировать импульсные потоки сразу нескольких, одновременно зарегистрированных клеток при разных формах поведения животных или при воздействии на нервную ткань различных раздражителей. Такой способ регистрации значительно расширяет возможности ученого, поскольку предоставляет информацию не только об активности клеток, но и об их взаимной удаленности, пространственном расположении. Появляется шанс изучить работу небольших нейронных объединений, а в случае одновременного применения нескольких таких электродов — и достаточно широко распространенных нейронных сетей.
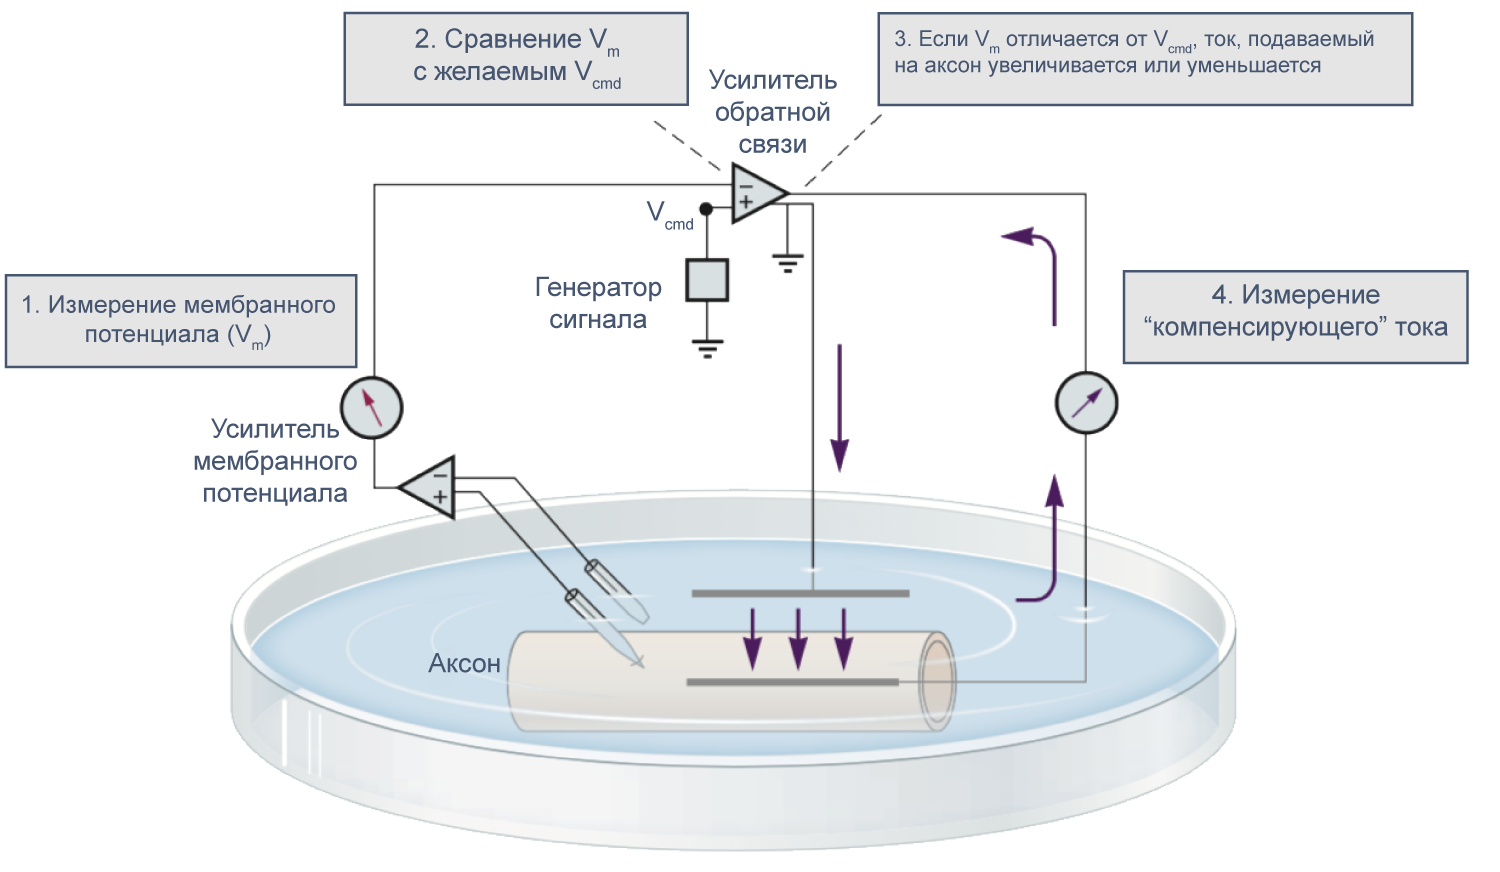
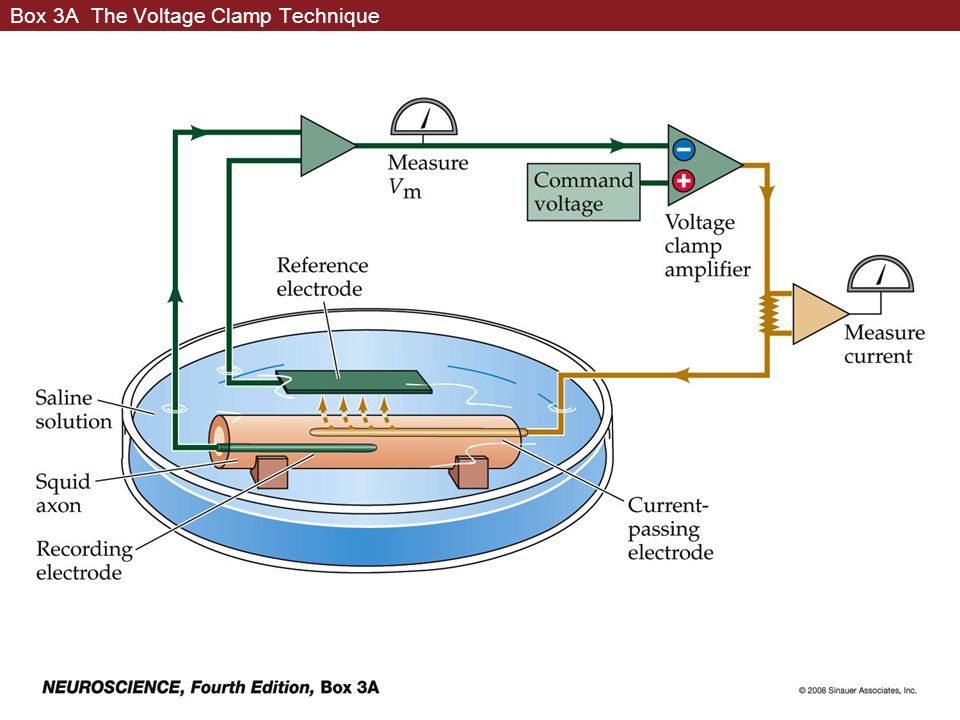
5. Метод фиксации потенциала. Сущность метода. Принципиальная измерительная электрическая схема.
Настоящий прорыв в исследованиях мембран клеток вызвал так называемый метод patch-clamp, который был создан на основе метода внутриклеточного диализа клеток. В настоящее время все электрофизиологические исследования мембран клеток производят при помощи данного метода.
Метод patch-clamp позволяет регистрировать на изолированных клетках их потенциалы, токи или одиночные ионные каналы посредством специальной стеклянной пипетки (patch-пипетки), напоминающей микроэлектрод, но имеющей сопротивление от 2 до 10 МОм в зависимости от типа исследуемых клеток. Кроме того, метод позволяет регистрировать ионные каналы с изолированного кусочка мембраны, который может быть расположен по отношению к отверстию пипетки либо внешней, либо внутренней стороной.
Для исследований методом patch-clamp существует несколько практически одинаковых приборов, которые позволяют в режиме current-clamp (фиксация тока) регистрировать потенциалы клеток и осуществлять их электрическое раздражение, а в режиме voltage-clamp (фиксация потенциала) – измерять суммарные ионные токи клетки или токи через одиночные ионные каналы.
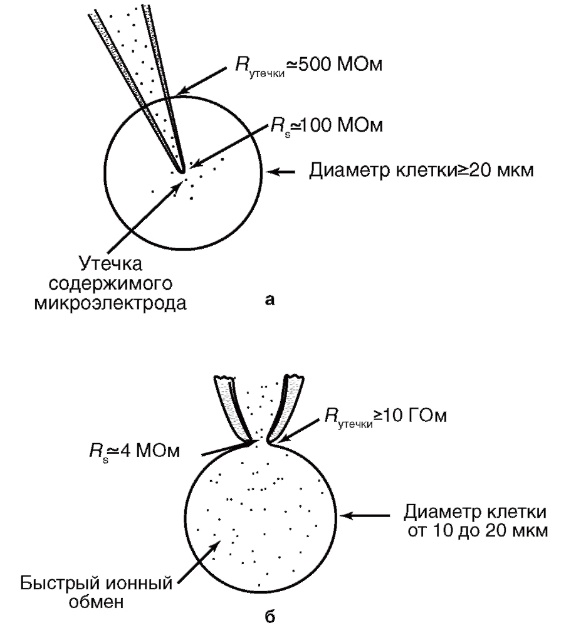
По сравнению с методами микроэлектродной техники и классической фиксации потенциала применение пипетки имеет ряд положительных моментов. Во-первых, техническая поддержка метода позволяет при помощи одного прибора исследовать клетки как в режиме фиксации тока, так и в режиме фиксации потенциала. Во-вторых, метод patch-clamp позволяет изучать мелкие клетки без существенного повреждения их мембран, тогда как даже один микроэлектрод, а тем более – два, существенно повреждают мембрану. Далее, сопротивление утечки микроэлектрод-мембрана не превышает 500 МОм, а при использовании метода patch-clamp и, соответственно, patch-пипетки – более 10 ГОм, что существенно влияет на качество регистрации. Наконец, микроэлектроды имеют сопротивление, достигающее 100 МОм, а patch-пипетки – от 2 до 10 МОм, что позволяет не только качественно регистрировать потенциалы и токи клетки, но и вводить в клетки без особых проблем любые соединения.
На рисунке показаны различные конфигурации patch-clamp по отношению к клетке или фрагменту ее мембраны. Сначала пипетку подводят вплотную к мембране изолированной клетки (см. рис. 2, а) и создают в ней небольшое отрицательное давление (см. рис. 2, б). Это приводит к тому, что мембрана плотно закупоривает отверстие пипетки, и формируется высокоомный контакт – конфигурация cell-attached или, иначе, переход пипетка-мембрана с сопротивлением утечки более 1 ГОм. После нормализации давления в пипетке конфигурация cell-attached близка к физиологической ситуации, поскольку зона мембраны, захваченная пипеткой, с внутренней стороны контактирует с внутриклеточной жидкостью, а с внешней стороны – со стандартным внеклеточным раствором, которым заполняют patch-пипетку. Эта конфигурация, с одной стороны, позволяет регистрировать одиночные ионные каналы под пипеткой, а с другой – является промежуточной для других конфигураций. Она позволяет изучать на одиночном канале роль вторичных мессенджеров, которые включаются через рецепторы плазматической мембраны.
Конфигурация cell-attached позволяет сформировать другую конфигурацию, называемую inside-out patch. К ее образованию приводит резкое отрывание пипетки от клетки (см. рис. 2, в). В этом случае на пипетке находится лишь фрагмент мембраны, внутренняя сторона которой смотрит в омывающий раствор перфузионной камеры, а внешняя контактирует с содержимым пипетки. Данную конфигурацию используют для изучения вклада соединений цитоплазмы в канальную активность.