Материал: GISTOLOGIYa-VANLAV_33

Кроветворение в красном костном мозге. Эмбриональное кроветворение в красном костном мозге начинается на 11-12 неделе, постэмбриональное – после рождения.
Согласно современным представлениям все клетки крови развиваются из одной СКК. Эти представления соответствуют унитарной теории кроветворения, которую выдвинул А. А. Максимов. По мнению А. А. Максимова, клетка, из которой развиваются все форменные элементы крови, по морфологическим признакам соответствует лимфоциту. Кроме унитарной теории кроветворения существовали полифилитические теории. Согласно одной из них все клетки крови развиваются из 3 изначальных клеток, согласно другой – из 5. В настоящее время полифилитические теории не получили подтверждения.
Кроветворение в красном костном мозге называется миелопоэзом, так как его ткань представлена миелоидной. Исходя из того, что морфология СКК сходна со структурой малого темного лимфоцита, в мазке крови невозможно отличить СКК от лимфоцита. Идентифицировать СКК оказалось возможно при посеве ее в селезенку смертельно облученной мыши. СКК, посеянные в такую селезенку, образуют характерные колонии, а лимфоциты колоний не образуют. Благодаря такому способу идентификации СКК было установлено, что в красном костном мозге на 100000 гемопоэтических клеток приходится около 50 СКК, в селезенке – около 3, в периферической крови – 1-2.
Классы гемопоэтических клеток. Гемопоэтические клетки делятся на 6 классов: клетки I класса – стволовые, клетки II класса – полустволовые, клетки III класса – унипотентные предшественники, клетки IV класса – бласты (унипотентные), клетки V класса – дифференцирующиеся, клетки VI класса – зрелые (дифференцированные).
Морфофункциональные признаки клеток I класса: 1) морфологически сходны с малыми темными лимфоцитами; 2) митотически малоактивны (редко делятся); 3) полипотентны (дают начало всем клеткам крови); 4) не детерминированы; 5) способны к самрподдержанию; 6) при посеве в селезенку смертельно облученной мыши образуют характерные колонии.
Морфофункциональные признаки клеток II класса: 1) морфологически сходны с малыми темными лимфоцитами; 2) митотически не активны; 3) полипотентны; 4) частично детерминированы; 5) образуют характерные колонии. Существует 2 клетки II класса: 1) КОЕ-ГЭММ, образуются из СКК и 2) общая клетка – предшественница лимфоцитов.
Морфофункциональные признаки клеток III класса: 1) морфологически сходны с малым темным лимфоцитом; 2) митотически не активны; 3) монопотентны (дают начало только одной разновидности клеток крови); 4) полностью детерминированы (заранее известно, какая разновидность клеток будет развиваться); 5) образуют характерные колонии.
Исходя из морфофункциональной характеристики гемопоэтических клеток первых трех классов совершенно очевидно, что в мазке крови их невозможно узнать, т. е. отличить от малого темного лимфоцита.
Морфофункциональная характеристика клеток IV класса – бластов: содержат круглое или овальное ядро с рыхлым хроматином и ядрышками, цитоплазма окрашивается слабо базофильно, диаметр 18-20 мкм, из них развивается толька одна разновидность клеток крови.
Развитие нейтрофильных гранулоцитов до стадии миелобластов начинается со СКК, от которой берет начало цепочка дифференцирующихся клеток: КОЕГЭММ КОЕ-ГМ КОЕ-Гн3 миелобласт нейтрофильный (IV класс).
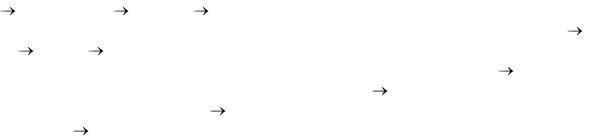
Развитие эозинофильных гранулоцитов до стадии миелобластов начинается с
СКК |
КОЕ-ГЭММ КОЕ-Эо миелобласт эозинофильный. |
|
Развитие |
базофильных гранулоцитов тоже начинается с СКК КОЕ- |
|
ГЭММ |
КОЕ-Б |
миелобласт базофильный. |
Вдальнейшем от миелобластов продолжается цепочка:- промиелоциты (нейтрофильные, эозинофильные, базофильные) миелоциты (нейтрофильные, эозинофильные, базофильные) метамиелоциты (нейтрофильные, эозинофильные,
базофильные) палочкоядерные (нейтрофильные, эозинофильные) зрелые (нейтрофильные, эозинофильные, базофильные).
Миелобласты (клетки IV класса) по строениию сходны со всеми бластами, т. е. клетками крови IV класса. Их диаметр – около 18-20 мкм, форма круглая, содержат круглое ядро с рыхлым хроматином и ядрышками. В цитоплазме содержатся рибосомы, поэтому она окрашивается базофильно. Нейтрофильные, эозинофильные и базофильные миелобласты не отличаются друг от друга.
Промиелоциты нейтрофильные, эозинофильные и базофильные (клетки V класса)
тоже не отличаются друг от друга. Имеют круглую форму, круглое или овальное ядро с ядрышками, базофильную цитоплазму. В цитоплазме хорошо развиты клеточный центр, комплекс Гольджи, лизосомы – неспецифические (первичные) гранулы.
Миелоциты нейтрофильные, эозинофильные и базофильные (клетки V класса)
имеют овальную форму, овальное ядро без ядрышек, размеры 12-18 мкм, в цитоплазме имеются органеллы общего значения и появляются специфические гранулы. В нейтрофильных миелоцитах эти гранулы нейтрофильные (окрашиваются и основными,
икислыми красителями); в эозинофильных – эозинофильные (окрашиваются кислыми красителями); в базофильных – базофильные (окрашиваются основными красителями). Миелоциты активно делятся. Все миелоциты, особенно нейтрофильные, способны к фагоцитозу.
Метамиелоциты нейтрофильные, эозинофильные и базофильные образуются в результате пролиферации и дифференцировки миелоцитов. Они утрачивают способность к митотическому делинию. Их ядро приобретает бобовидную форму, в цитоплазме увеличивается содержание специфической зернистости. Если нейтрофильный метамиелоцит поступает в периферическую кровь, то он называется юным. Метамиелоциты относятся к клеткам V класса и приобретают способность к подвижности.
Палочкоядерные нейтрофильные и эозинофильные гранулоциты относятся к клеткам V класса. Среди базофильных гранулоцитов палочкоядерных не существует. Палочкоядерные гранулоциты характеризуются тем, что их ядро приобретает форму изогнутой палочки в виде русской буквы (С) или латинской буквы (S).
Сегментоядерные нейтрофильные и эозинофильные гранулоциты (клетки VI класса) характеризуются тем, что их ядра начинают сегментироваться. В эозинофильных гранулоцитах ядро состоит из 2 сегментов, в то время как в нейтрофильных – из 2 и более. В зрелых базофильных гранулоцитах ядро чаще всего имеет овальную форму.
Уровень зрелых гранулоцитов поддерживается за счет деления миелоцитов. При значительных кровопотерях начинают делиться более молодые клетки вплоть до стволовых.
Впроцессе гранулоцитопоэза отмечаются следующие тенденции: 1) начиная с миелобласта уменьшается объем клеток; 2) изменяется форма и структура ядра (в миелобластах – круглое, в зрелых гранулоцитах – сегментированное); 3) в цитоплазме,
начиная с миелоцита, появляется специфическая зернистость; 4) утрачивается способность к митотическому делению (метамиелоциты не могут делиться).
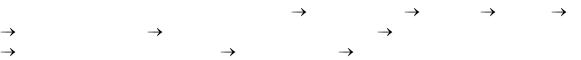
Эритропоэз начинается с |
СКК, |
от которой |
начинается цепочка |
|
дифференцирующихся клеток: СКК КОЕ-ГЭММ БОЕ-Э6 |
КОЕ-Э |
эритробласт |
||
проэритробласт базофильный |
эритробласт |
полихроматофильный |
эритробласт |
|
оксифильный эритробласт ретикулоцит эритроцит.
БОЕ-Э - бурстообразующая единица (burst - взрыв) относится к унипотентным предшественникам (клеткам крови III класса). Эта клетка характеризуется тем, что она менее дифференцирована, по сравнению с КОЕ-Э, способна быстро размножаться и в течение 10 дней осуществляет 12 делений и образует колонию, состоящую из 5000 эритроцитарных клеток. БОЕ-Э мало чувствительна к эритропоэтину и активируется под влиянием ИЛ-3, который вырабатывается моноцитами, макрофагами и Т- лимфоцитами. БОЕ-Э содержатся в малом количестве в красном костном мозге и периферической крови.
КОЕ-Э7 являются основными продуцентами эритроцитов. Они образуются из БОЕ- Э. Под влиянием эритропоэтина КОЕ-Э подвергаются пролиферации и дифференцировке и превращаются в клетки IV класса – эритробласты.
Эритробласты практически не отличаются от остальных бластов. Они имеют круглую форму, диаметр около 20 мкм, круглое ядро, содержащее рыхлый хроматин и ядрышки. Их цитоплазма окрашивается слабо базофильно.
Проэритробласты (клетки V класса) образуются в результате пролиферации и дифференцировки эритробластов, имеют диаметр 14-18 мкм, большое круглое ядро с рыхлым хроматином и ядрышками. Цитоплазма окрашивается базофильно, содержит рибосомы, полисомы, комплекс Гольджи и гранулярную ЭПС.
Базофильные эритробласты (клетки V класса) развиваются в результате пролиферации и дифференцировки проэритробластов. Их диаметр колеблется от 13 до 16 мкм, ядро круглое, содержит грубые глыбки хроматина. Цитоплазма резко базофильна, так как в ней увеличивается содержание рибосом. В рибосомах начинается синтез гемоглобина.
Полихроматофильные эритробласты (клетки V класса) образуются в результате пролиферации и дифференцировки базофильных эритробластов, имеют круглую форму, диаметр около 10-12 мкм. Ядра круглые, в них много гетерохроматина. На рибосомах синтезируется и накапливается гемоглобин, который окрашивается оксифильно. Поэтому цитоплазма таких эритробластов окрашивается, базофильно и оксифильно, т. е. полихроматофильно.
Оксифильные эритробласты (клетки V класса) развиваются в результате пролиферации и дифференцировки полихроматофильных эритробластов. Их диаметр около 8-10 мкм, ядро мелкое гиперхромное, потому что подверглось пикнозу. В цитоплазме много гемолобина, поэтому она окрашивается оксифильно. Оксифильный эртробласт утрачивает способность к митотическому делению.
Ретикулоциты (клетки VI класса) образуются в результате дифференцировки оксифильных эритробластов, утративших ядро. В цитоплазме ретикулоцитов содержатся остатки митохондрий и рибосом, способных окрашиваться базофильно, которые в совокупности образуют ретикулофиламентозную субстанцию (гранулы и филаменты, которые переплетяясь, образуют сеть). В ретикулоцитах содержится много гемоглобина. Ретикулоциты дозревают в капиллярах красного костного мозга или, циркулируя в периферических сосудах, в течение 1-2 суток.
Эритроциты (клетки VI класса) образуются в результате дифференцировки ретикулоцитов, имеют диаметр около 7-8 мкм.
В нормальных условиях постоянный уровень эритроцитов в крови обеспечивается за счет размножения полихроматофильных эритробластов. Однако при больших кровопотерях в процесс деления включаются более молодые клетки вплоть до стволовых.
Тенденции, наблюдаемые при эритроцитопоэзе, сводятся к: 1) уменьшению объема клеток; 2) накоплению гемоглобина; 3) изменению структуры и утрате ядра; 4) утрате способности к митотическому делению после полихроматофильного эритробласта.
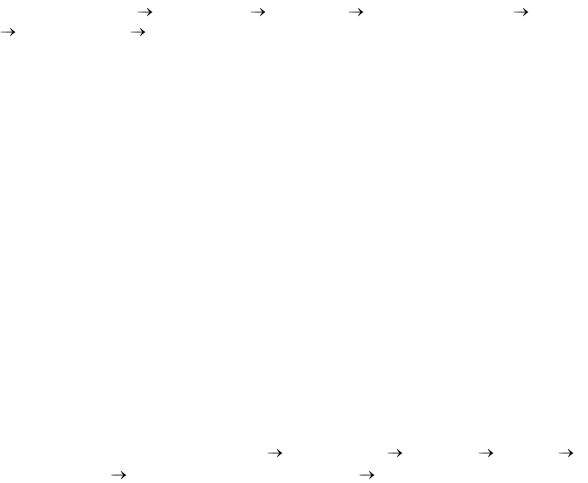
Мегакариоцитопоэз складывается из следующей цепочки дифференцирующихся
клеток: СКК |
КОЕ-ГЭММ КОЕ-МГЦ мегакариобласт |
промегакариоцит |
мегакариоцит |
тромбоцит. |
|
Мегакариобласт (megacaryoblastus) имеет диаметр 15-25 |
мкм, ядро с |
|
инвагинациями, окруженное тонким слоем цитоплазмы. Мегакариобласт способен к митотическому делению.
Промегакариоцит (promegacaryocytus) образуется в результате пролиферации и дифференцировки мегакариобласта, утрачивает способность к митотическому делению и приобретает способность к эндомитозу. В результате эндомитоза ядро становится многоплоидным (4n, 8n), многолопастным и увеличивается в размере, возрастает масса цитоплазмы, в которой накапливаются азурофильные гранулы.
Мегакариоцит (megacaryocytus) представлен двумя разновидностями: 1) резервными, не образующими тромбоцитов, с набором хромосом 16-32 n и размером 5070 мкм; 2) зрелыми, активированными мегакариоцитами с набором хромасом до 64 n и размером 50-100 мкм. Из цитоплазмы этих мегакариоцитов образуются тромбоциты.
В цитоплазме мегакариоцита много расположенных в ряд микровезикул. Из микровезикул формируются, грапницы, разделяющие цитоплазму на отдельные участки. В каждом таком участке содержатся по 1-3 гранулы. Эти участки отделяются от общей массы цитоплазмы по пограничным линиям и превращаются в тромбоциты. После отделения тромбоцитов (кровяных пластинок) вокруг дольчатого ядра остается тонкий слой цитоплазмы. Такая клетка называется резидуальным мегакариоцитом, который затем разрушается.
Моноцитопоэз складывается из ряда следующих дифференцирующихся клеток: СКК КОЕ-ГЭММ КОЕ-ГМ КОЕ-М монобласт
(monoblastus) промоноцит (promonocytus) моноцит (monocytus). Из красного костного мозга моноцит поступает в периферическую кровь, где циркулирует 2-4 суток, и потом мигрирует в ткани, где дифференцируется в макрофаг.
1КОЕ-ГМ – колониеобразующая единица гранулоцитарно-эритроцитарно- моноцитарно-мегакариоцитарная. 2КОЕ-ГМ – КОЕ-гранулоцитарно- моноцитарная. 3КОЕ-Гн – КОЕ-гранулоцитарная. 4КОЕ-Эо – КОЕэозинофилоцитарная. 5КОЕ-Б – КОЕ-базофилоцитарная. 6БОЕ-Э – бурстообразующая единица эритроцитарная. 7КОЕ-Э – КОЕ-эритроцитарная. 8КОЕ-МГЦ. КОЕ-мегацитарная. КОЕ-М – КОЕ-моноцитарна
Лекция 19
ЛИМФОИДНЫЕ ОРГАНЫ. ЛИМФОПОЭЗ . ТИМУС
Развитие. Тимус (thymus) начинает развиваться на 4-5 неделе эмбриогенеза из выпячивания эпителия глотки на уровне III-IV жаберных карманов. Правое и левое выпячивания растут в каудальном направлении. Затем эти выпячивания сливаются, образуя общую эпителиальную (ретикулоэпителиальную) строму. Вокруг этой стромы из окружающей мезенхимы формируется соединительнотканная капсула. От которой вглубь отходят трабекулы вместе с кровеносными сосудами. Трабекулы разделяют строму на дольки. По периферии дольки формируется корковое вещество, внутри – мозговое вещество. В мозговом веществе эпителиальные клетки стромы подвергаются ороговению и наслаиваются друг на друга, формируя тельца тимуса (тельца Гассаля). Кроветворение в тимусе начинается на 8,5-10 неделе.
Строение. Тимус снаружи покрыт сединительнотканной капсулой, от которой отходят прослойки соединительной ткани, разделяющие тимус на дольки. В каждой дольке имеется корковое и мозговое вещество. Стромой долек тимуса является эпителиальная (ретикулоэпителиальная) ткань. Эпителиальные клетки стромы имеют отростки, при помощи которых соединяются друг с другом, образуя сеть (reticulum). Ретикулоэпителиальные клетки стромы лежат на базальной мембране, которая прилежит к капсуле и трабекулам. На базальной мембране лежат базальные клетки. По мере приближения стромальных клеток к центру дольки они подвергаются ороговению, наслаиваются друг на друга и образуются тельца тимуса.
Корковое вещество долек тимуса имеет темный цвет, так как в петлях эпителиальной стромы находятся лимфоциты в большом количестве. Из красного костного мозга с током крови в корковое вещество поступают предшественники Т- лимфоцитов. Под воздействием тимозина, выделяемого макрофагами и тимоцитами предшественники Т-лимфоцитов подвергаются бласттрансформации, пролиферации и антигеннезависимой дифференцировке. Что такое бласттрансформация? Это преобразование предшественников Т-лимфоцитов в Т-лимфобласты. Пролиферация – это размножение Т-лимфобластов при помощи митоза. Антигеннезависимая дифференцировка – это дифференцировка при незначительном количестве антигенов. Почему же в корковом веществе долек мало антигенов? Дело в том, что здесь вокруг капилляров и синусоидов имеется гематотимусный барьер. В состав этого барьера входят 5 компонентов: 1) эндотелий капилляров; 2) их базальная мембрана; 3) перикапиллярное пространство, заполненное жидкостью, где находятся макрофаги и лимфоциты; 4) базальная мембрана эпителиальной стромы; 5) клетки эпителиальной стромы.
В случае, если нарушается гематотимусный барьер, то противоантигенная защита коркового вещества долек усиливается нейтрофильными лейкоцитами, выполняющими фагоцитарную функцию, плазмоцитами, которые содержат антитела, и тканевыми базофилами, регулирующими проницаемость капиллярной стенки. При выделении