Материал: Физиология растений лекция 1-10
При переносе электронов создается разность потенциалов, там где она достаточна синтезируется АТФ.
Циклическое фосфорилирование:
Циклический транспорт электронов
Участие только одной фс1
Энергия запасается только в виде АТФ
Начинается оно также как и нециклическое, но на уровне ферредоксина через переносчиков цит, уf вновь возвращаются к молекуле ХЛ 700. При переносе электронов создается разность потенциалов, там где она достаточна синтезируется АТФ.
Синтез АТФ объясняет хемиосмотическая теория Митчелла (презентация слайд 17, 18).
Существует несколько теорий, объясняющих механизм фосфорилирования АТФ, сопряженный с транспортом электронов, но наибольшим признанием пользуется хемиосмотическая теория Митчелла. Ее суть заключается в том, что пластохинон, присоединив два электрона от П680, присоединяет два протона из стромы хлоропласта и переносит их через мембрану во внутритилакоидное пространство. Протоны накапливаются внутри тилакоида и в результате фотоокисления воды. Благодаря неравномерному распределению протонов по обе стороны мембраны создается разность химических потенциалов протонов, и возникает электрохимический мембранный потенциал ионов водорода (Н). Он включает в себя две составляющие: концентрационную (рН), возникающую в результате неравномерного распределения протонов по обе стороны мембраны, и электрическую (), обусловленную возникновением противоположного заряда на поверхности мембран, т.е. образованием мембранного потенциала. Энергия рН и используется для обратного транспорта протонов из внутритилакоидного пространства в строму хлоропласта по особым каналам. С оратным транспортом протонов сопряжено фосфорилирование АДФ. Сопряжение обратного транспорта протонов и фосфорилирование АДФ обеспечивает Н+-АТФ-синтетаза. Расположенная в тилакоидных мембранах и состоящая из двух частей: каталитической водорастворимой F1, обращенной к строме хлоропласта, мембранной части F0, пронизывающий бислой липидов – это протонный канал, по которому протоны могут возвращаться в строму хлоропласта.
АДФ и фосфат соединяются с ферментом в его каталитической части F1. Два протона, перемещаясь по градиенту концентрации электрохимического потенциала по протонному каналу F0, соединяются с кислородом фосфата, образуя воду. Потеря кислорода активирует фосфатную группу, и она присоединяется к АДФ с образованием АТФ. фермент Н+-АТФ-синтетаза активен, пока транспортируются протоны. Протоны двигаются, если их концентрация во внутритилакоидном пространстве больше. На каждые два электрона, переданных по электрон-транспортной цепи, внутри тилакоида накапливается 4Н+. при возвращении обратно в строму хлоропласта двух протонов синтезируется АТФ – одна молекула.
Темновая фаза фотосинтеза – комплекс биохимических реакций, в результате которых происходит восстановление поглощенного листом СО2, за счет продуктов световой фазы АТФ, НАДФН.
3.Разновидности биохимического этапа.
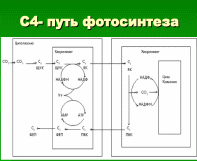
C4- путь фотосинтеза.
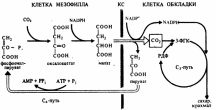
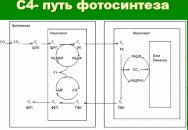
Существует большая группа растений (500 видов покрытосеменных), у которых первичными продуктами фиксации СО2 и восстановления являются четырехуглеродные соединения. Их называют С4-растениями. Основы для биохимического исследования фотосинтеза у _С4-растений были заложены в работах Л. А. Незговоровой (1956-1957), К. С. Карпилова и И. А. Тарчевского (1960-1963). В 1966 г. Хетч и Слэк (австрал.) предложили законченную схему цикла темповых реакций у С4-растений, которая получила название цикла Хетча и Слэка.
К С4-растениям относится ряд культурных растений преимуественно тропического и субтропического происхождения: кукуруза, просо, сорго, сахарный тростник и многие злостные сорняки - свинорой, сыть округлая, ежовник крестьянский, просо куриное, просо крупное, гумай (сорго алепское), щирица, щетинник и др. Как правило, это высокопродуктивные растения, устойчиво осуществляющие фотосинтез при значительных повышениях температуры и в засушливых условиях.
Для листьев С4-растений характерно анатомическое строение кранц-типа (от нем. Kranz - венок, корона), т. е. наличие явно отличающихся друг от друга фотосинтезирующих клеток двух типов, которые располагаются концентрическими кругами: радиально расположенные вокруг проводящих пучков клетки обкладки и основной мезофилл (рис. 40).
Клетки обкладки проводящего пучка содержат крупные, лишенные гран (агранальные) хлоропласты. В клетках мезофилла находятся более мелкие гранальные хлоропласты. Эти два типа клеток физиологически не равноценны и специализируются на выполнении разных звеньев фотосинтеза.
C4-цикл можно разделить на две стадии: карбоксилирование (в клетках мезофилла) и декарбоксилирование и синтез углеводов (в клетках обкладки проводящих пучков). Общим для всех С4-растений является то, что карбоксилированию подвергается фосфоенолпировиноградная кислота (ФЕП) при участии ФЕП-карбоксилазы и образуется щавелевоуксусная кислота (ЩУК), которая восстанавливается до яблочной кислоты или аминируется с образованием аспарагиновой кислоты.
ЩУК, яблочкая и аспарагиновая кислоты являются C4 соединениями.
По способу декарбоксилирования при участии НАДФ-Н или НАД-малатдегидрогеназы (МДГ), называемой также малик-энзимом и яблочным ферментом) или ФЭП-карбоксикиназы (ФЕП-КК) у С4-растений можно выделить три группы: НАДФ-МДГ, НАД-МДГ и ФЕП-КК-типы соответственно.
У НАДФ-МДГ-растений главными метаболитами, вовлеченными в обмен между клетками, являются малат и пируват (ПВК), у НАД-МДГ-растений - аспартат и аланин и у ФЕП-КК-растений - аспартат и ФЕП.
Важнейшие с-х культуры (кукуруза, сорго, сахарный тростник) и такие сорняки, как сыть, ежовник, щетинник, гумай относятся к НАДФ-МДГ-типу.
Рассмотрим С4-цикл восстановления СО2 на примере этих растений (рис.).
СО2, поступающий в лист через устьица, попадает в цитоплазму клеток мезофилла, где при участии ФЕП-карбоксилазы вступает в реакцию с ФЕП, образуя ЩУК(оксалоацетат).
Затем в хлоропластах ЩУК восстанавливается до яблочной кислоты (малата) за счет НАДФН, образующегося в ходе световой фазы фотосинтеза; ЩУК в присутствии NH4 может превращаться также в аспартат.
2.Биохимический этап. Цикл Кальвина. (слайд 21)
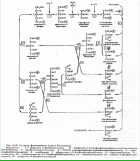
Этот путь ассимиляции СО2 является самым распространенным и был назван циклом Кальвина в честь американского биохимика М. Кальвина, который с сотрудниками открыл и изучил его в 1946-1956 годах с помощью метода меченых атомов и хроматографии. Цикл состоит из трех этапов:
карбоксилирования,
восстановления,
регенерации первичного акцептора СО2 и синтеза конечного продукта фотосинтеза.
1. Карбоксилирование. Фосфорибулокиназа фосфорилирует при участии АТФ рибулозо-5-фосфат с образованием АДФ и рибулозо-1,5-дифосфата. Последний является акцептором СО2 и под действием рибулозобифосфаткарбоксилазы (РуБФК) присоединяет СО2. В результате образуются 2 молекулы 3-фосфоглицериновой кислоты (3-ФГК). ФГК является первичным продуктом ассимиляции углерода, так как в ее молекуле содержится 3 атома углерода, то этот цикл получил второе название С3.
2. Восстановление. Фосфоглицераткиназа при участии АТФ фосфорилирует 3-ФГК и образовавшаяся 1,3-дифосфоглицериновая кислота восстанавливается с помощью НАДФН и дегидрогеназы фосфоглицеринового альдегида до 3-фосфоглицеринового альдегида (3-ФГА).
3. Регенерация. После фиксации трех молекул СО2 и образования шести молекул 3-ФГА пять из них используются для синтеза рибулозо-5-фосфата, а одна молекула 3-ФГА – для образования глюкозы.
Триозофосфатизомераза превращает 3-ФГА в фосфодиоксиацетон. Затем альдолаза образует из 3-ФГА и фосфодиоксиацетона фруктозо-1,6-дифосфат. Он теряет один остаток фосфорной кислоты под влиянием фруктозо-1,6-дифосфатазы и превращается во фруктозо-6-фосфат. Транскетолаза переносит гликолевый альдегид от фруктозо-6-фосфата на 3-ФГА с образованием эритрозо-4-фосфата и ксилулозо-5-фосфата. Альдолаза присоединяет фосфодиоксиацетон к эритрозо-4-фосфату с образованием седогептулозо-1,7-дифосфата. Он дефосфорилируется фосфатазой и под влиянием транскетолазы соединяется с 3-ФГА. Продуктами этой реакции являются ксилулозо-5-фосфат и рибозо-5-фосфат. Две молекулы ксилулозо-5-фосфата при участии рибулозофосфатэпимеразы и одна молекула рибозо-5-фосфата под действием рибозофосфатизомеразы превращаются в три молекулы рибулозо-5-фосфата.
Если цикл проходит три раза, то образуется 6 молекул ФГА. Пять из шести молекул триозофосфата образуют три молекулы РУбФ, а шестая молекула ФГА является продуктом ассимиляции СО2. Она может превратиться в хлоропласте в первичный крахмал или снова включиться в цикл, или, выйдя в цитозоль, использоваться для образования сахарозы.
Шестая молекула 3-ФГА используется для синтеза фруктозо-1,6-дифосфата при повторении цикла. Из двух молекул фруктозо-1,6-дифосфата образуются фруктозо-6-фосфат и глюкозо-1-фосфат. Последний, взаимодействуя с уридинтрифосфатом, дает уридинфосфоглюкозу. Она и фруктозо-6-фосфат образуют сахарозофосфат, который после дефосфорилирования превращается в сахарозу. Следовательно, для образования одной молекулы сахарозы необходимо прохождение четырех циклов Кальвина. Крахмал синтезируется из уридинфосфоглюкозы под влиянием амилосинтетазы.
Среди продуктов фотосинтеза обнаружены аминокислоты. При недостатке НАДФН 3-ФГК превращается не в 3-ФГА, а в пировиноградную кислоту. Она, присоединяя аммиак, образует аланин. Из пировиноградной кислоты в цикле Кребса образуются органические кислоты, которые в ходе реакций аминирования и переаминирования дают аминокислоты.
С3-путь – основной, но не единственный путь восстановления двуокиси углерода.
Опыты с радиоактивной меткой (14С) показали, что после освещения растений в течение 1 с более 90 % радиоактивности обнаруживается в составе С4-кислот.
Затем малат переносится в хлоропласты клеток обкладки сосудистого пучка, где он подвергается окислительному декарбоксилированию, продуктом которого является ПВК. Последняя снова диффундирует в мезофилл, где при участии АТФ, образованной в световой фазе, происходит регенерация ФЕП, после чего цикл карбоксилирования повторяется с участием новой молекулы СО2. Образовавшиеся в результате окислительного декарбоксилирования малата СО2 и НАДФ-Н поступают в цикл Кальвина, что приводит к образованию ФГК и других продуктов, свойственных С3-растениям. Следовательно, именно клетки обкладки выполняют роль основной ассимилирующей ткани, поставляющей сахара в проводящую систему. Клетки мезофилла выполняют вспомогательную функцию - подкачку СО2 для цикла Кальвина.
Таким образом, С4-путь обеспечивает более полное усвоение СО2, что особенно важно для тропических растений, где основным лимитирующим фактором фотосинтеза является концентрация СО2. Эффективность усвоения СО2 С4-растениями увеличивается также за счет подачи НАДФ-Н в хлоропласты клеток обкладки. Эти хлоропласты имеют агранальное строение и специализируются на темповой фазе фотосинтеза, здесь практически не происходит НЦФФ. На один агранальный хлоропласт в среднем приходится 8-10 гранальных хлоропластов, осуществляющих первичную фиксацию СО2 и НЦФФ. Такая компартментация процессов и кооперация функционирования тканей обеспечивают повышение продуктивности растений и позволяют накапливать СО2 в органических кислотах для осуществления фотосинтеза даже при закрытых устьицах в наиболее жаркое время дня. Это сокращает потери воды на транспирацию. Эффективность использования воды С4-растениями вдвое выше, чем у С3-растений.
В 1965 г. было обнаружено, что первыми продуктами фотосинтеза у сахарного тростника (растение тропиков) являются органические кислоты, в состав которых входят 4 атома углерода (яблочная, щевелевоуксусная и аспарагиновая), а не 3С-кислота (фосфоглицериновая), как у большинства растений умеренного климата. С тех пор выявили множество растений, в основном тропических и субтропических, и имеющих порой важное экономическое значение, у которых фотосинтез протекает по такому же пути. Они получили название С4-растений. Примерами могут служить кукуруза, сорго, сахарный тростник и просо. Растения, в которых первым продуктом фотосинтеза является трехуглеродная фосфоглицериновая кислота, носят название С3-растения.
Биохимию именно С3-растений мы рассматривали до сих пор в этой главе.
В 1966 г. австралийские исследователи Хэтч и Слэк (Hatch, Slack) показали, что С4-растения значительно эффективнее, чем Сграстения, поглощают диоксид углерода: они способны удалять СО: из экспериментальной атмосферы вплоть до концентрации 0,1 части на миллион, тогда как для С3-растений это значение составляет 50—100 Ч*млн-1. Хэтч и Слэк описали новый путь метаболизма углерода у Сграсгений, получивший название путь Хэтча—Слэка. Далее мы изучим этот процесс на примере типичного Сграстения — кукурузы.
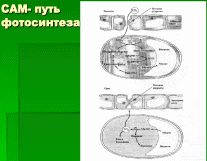
У С4-растений листья имеют характерную особенность строения: вокруг каждого проводящего пучка у них расположены два ряда клеток. У клеток внутреннего кольца — обкладки проводящего пучка — хлоропласты по своей форме отличаются от хлоропластов клеток мезофилла внешнего кольца. Различие в строении хлоро-пластов у С4-растений получило название диморфизма (наличие двух форм). На рисeyrt, Ли Б показана так называемая «кранц-анатомия» (Kranz — корона, ореол; таким образом описываются те два ряда клеток, которые окружают проводящие пучки и имеют в сечении вид двух колец). Биохимические превращения, протекающие в этих клетках, описаны ниже.
Путь Хэтча—Слэка предназначен для транспортировки диоксида углерода и водорода из клеток мезофилла в клетки обкладки проводящих пучков. Из клеток обкладки проводящих пучков диоксид углерода высвобождается и поступает в обычный С3-путь фотосинтетических превращений.
Захват (фиксация) диоксида углерода в клетках мезофилла.
Диоксид углерода фиксируется в цитоплазме клеток мезофилла. Механизм этого процесса приведен в следующем уравнении: Акцептором диоксида углерода служит фосфоенолпируват (ФЕП) вместо РиБФ у С3-растений, а вместо фермента РиБФ-карбоксилазы у С4-растений участвует фермент ФЕП-карбоксилаза. Фермент ФЕП-карбоксилаза работает значительно более эффективно, чем фермент С3-растений по двум причинам. Во-первых, ФЕП-карбоксилаза обладает большим сродством к диоксиду углерода, а во-вторых, ее работа не подвергается конкурентному ингибированию кислородом. Образовавшаяся щавелево-уксусная кислота далее превращается в малат, 4С-кислоту.
Малатный обходной путь (шунт)
Пройдя через плазмодесмы в клеточных стенках, малат попадает в хлоропласты клеток обкладки проводящего пучка, где он, соединяясь с диоксидом углерода, превращается в пируват (ЗС-кислоту). При этом выделяется водород, который используется для восстановления НАДФ. Обратите внимание, что в клетки мезофилла диоксид углерода и водород поступают извне, а затем в клетках обкладки проводящего пучка они вновь удаляются. Суммарным эффектом этих процессов является перемещение диоксида углерода и водорода из клеток мезофилла в клетки обкладки проводящего пучка.
Регенерация акцептора диоксида углерода
Пируват возвращается в клетки мезофилла, где в результате присоединения фосфатной группы от АТФ используется для регенерации ФЕП. На это расходуется энергия двух высокоэнергетических фосфатных связей.
CAM- путь фотосинтеза
С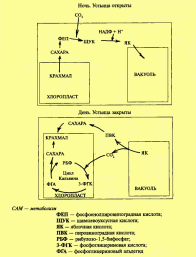 уществует
еще одна группа растений, имеющая
особенности в осуществлении первичной
фиксации С02. Это суккуленты, в частности
кактусы и растения семейства Толстянковые
(Crassulaceae). Поэтому этот тип фотосинтеза
получил название Crassulaceae acid metabolism или
САМ-метаболизм (САМ-путь). При
функционировании САМ-пути устьица
растений закрыты днем, когда интенсивность
транспирации максимальна, и открыты
ночью, когда потери воды минимальны.
Это предохраняет растения от излишней
потери воды, повышает их устойчивость
к засухе. Химизм фиксации С02 при САМ-пути
сходен с С4-путем, однако если у С4-растений
фотосинтез разделен в пространстве, то
при САМ-пути — во времени. У САМ-растений
фиксация С02 происходит в ночное время,
когда устьица открыты. С02 поступает в
клетки листа и в цитоплазме при участии
ФЕП-карбоксилазы присоединяется к
фосфоенолпировиноградной кислоте (ФЕП)
с образованием органических кислот
(щавелевоуксусной кислоты). ЩУК
восстанавливается до яблочной кислоты,
которая накапливается в вакуолях клеток
листа. Реакция идет при участии фермента
малатдегидрогеназы (малик-фермент).
Днем на свету, когда устьица закрыты,
яблочная кислота транспортируется из
вакуолей в цитоплазму, где происходит
декарбоксилирование ЩУК с образованием
С02 и пировиноградной кислоты. С02
передвигается в хлоропласта и с помощью
РБФ-карбоксилазы/оксигеназы вступает
в цикл Кальвина. Таким образом, в клетках
этих растений содержится как
ФЕП-карбоксилаза, так и
РБФ-карбоксилаза/оксигеназа. Синтезируемые
в дневные часы в цикле Кальвина углеводы
используются как источники метаболитов
(например, ФЕП), необходимых для повторения
цикла.
Осуществление фотосинтеза по такому пути позволяет растениям максимально экономить воду и поддерживать процесс фотосинтеза в условиях острого водного дефицита. Однако САМ-путь не может обеспечить высокой продуктивности растений, поэтому данные растения медленно растут и не могут конкурировать с С3- и С4-растениями при менее экстремальных условиях. Возможна смена путей фиксации С02. При достаточном количестве воды растения с САМ-метаболизмом могут переходить на С3-путь. Так, показана способность Mesembryanthemum crystallinum L. (хрустальная травка) менять направленность метаболических процессов, переходя с С3-пути фотосинтеза на САМ в условиях действия различных стрессоров: водного, солевого, температурного. В научной литературе имеются указания о наличии и других путей связывания С02. Однако они еще недостаточно изучены. Важно также подчеркнуть, что на всех этапах фотосинтетического цикла промежуточные продукты могут претерпевать различные превращения в зависимости от условий среды. Именно это является основой для образования разнообразных продуктов фотосинтеза.