Материал: Физиология растений лекция 1-10
С2- путь фотосинтеза.
Фотодыхание (гликолатный путь, С2-фотосинтез) — стимулируемое светом выделение углекислого газа и поглощение кислорода у растений преимущественно с С3-типом фотосинтеза. Также под фотодыханием понимают биохимический путь, связанный с регенерацией одной молекулы 3-фосфоглицериновой кислоты (С3) из двух молекул гликолевой кислоты (С2) и лежащий в основе вышеописанного газообмена. Наличие биохимического механизма фотодыхания обусловлено значительной оксигеназной активностью РуБисКО, ключевого фермента цикла Кальвина.
Кислород подавляет фотосинтез. Чем больше O2 в окружающей среде, тем менее эффективен процесс связывания CO2. Дело в том, что фермент рибулозобифосфат-карбоксилаза (рубиско) может реагировать не только с углекислым газом, но и кислородом. В этом случае темновые реакции несколько иные.
Содержащая пять атомов углерода молекула рибулозобифосфата реагирует уже не с CO2, а с O2. В результате чего образуются по одной молекуле фосфогликолата (C2) и фосфоглицериновой кислоты (C3), а не две ФГК как обычно.
Фосфогликолат — это фосфогликолевая кислота. От нее сразу отщепляется фосфатная группа, и она превращается в гликолевую кислоту (гликолат). Для его «утилизации» снова нужен кислород. Поэтому чем больше в атмосфере кислорода, тем больше он будет стимулировать фотодыхание и тем больше растению будет требоваться кислорода, чтобы избавиться от продуктов реакции.
Фотодыхание — это зависимое от света потребление кислорода и выделение углекислого газа. То есть обмен газов происходит как при дыхании, но протекает в хлоропластах и зависит от светового излучения. От света фотодыхание зависит лишь потому, что рибулозобифосфат образуется только при фотосинтезе.
При фотодыхании происходит возврат атомов углерода из гликолата в цикл Кальвина в виде фосфоглицериновой кислоты (фосфоглицерата).
2 Гликолат (С2) → 2 Глиоксилат (С2) →2 Глицин (C2) - CO2 → Серин (C3) →Гидроксипируват (C3) → Глицерат (C3) → ФГК (C3)
Как видно, возврат происходит не полный, так как один атом углерода теряется при превращении двух молекул глицина в одну молекулу аминокислоты серина, при этом выделяется углекислый газ.
Кислород необходим на стадиях превращения гликолата в глиоксилат и глицина в серин.
Превращения гликолата в глиоксилат, а затем в глицин происходят в пероксисомах, синтез серина в митохондриях. Серин снова поступает в пероксисомы, где из него сначала получается гидрооксипируват, а затем глицерат. Глицерат уже поступает в хлоропласты, где из него синтезируется ФГК.
Фотодыхание характерно в основном для растений с C3-типом фотосинтеза. Его можно считать вредным, так как энергия бесполезно тратится на превращения гликолата в ФГК. Видимо фотодыхание возникло из-за того, что древние растения были не готовы к большому количеству кислорода в атмосфере. Изначально их эволюция шла в атмосфере богатой углекислым газом, и именно он в основном захватывал реакционный центр фермента рубиско.
П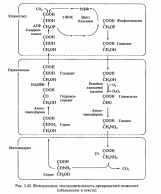 уть
восстановления СО2 при фотосинтезе М.
Кальвин изучал при относительно высоких
концентрациях СО2 .
При более низких концентрациях СО2 ,
приближающихся к атмосферным (0,045 %), в
хлоропласте образуется значительное
количество фосфогликолевой кислоты: в
условиях низкого парциального давления
СО2 и высокого парциального давления
О2 РДФ-карбоксилаза может присоединять
к рибулозо-1,5-дифосфату кислород – может
выполнять не только карбоксилирующую,
но и оксигенерирующую функции (оксигеназа).
Присоединение кислорода к молекуле
рибулозо-1,5-дифосфата приводит к тому,
что вместо 2 молекул ФГК образуется 1
молекула ФГК и 1 молекула фосфогликолата.
1 молекула фосфогликолата во время
транспорта через мембрану хлоропласта
дефосфорилируется при участии
фосфогликолатфосфатазы и превращается
в гликолат, который поступает в специальную
органеллу-пероксисому
Цикл превращения гликолата (первичного
продукта) в триозофосфат (ФГК)- гликолатный.
В растительных клетках, содержащих хлоропласты, помимо С3- и С4-путей фотосинтеза, осуществляется также фотодыхание, т. с. активируемый светом процесс высвобождения СО2, и поглощения О2,, который значительно отличается от «темнового» дыхания митохондрий. Так как при этом первичным продуктом является гликолевая кислота, то этот путь получил название гликолатного. У .некоторых С3-растений с малой эффективностью фотосинтеза интенсивность фотодыхания может достигать 50% от интенсивности фотосинтеза.
Фотодыхание у C3-растений обычно усиливается при низком содержании С02 и высоких концентрациях 02. В этих условиях РДФ-карбоксилаза в хлоропластах может функционировать как оксигеназа, катализируя окислительное расщепление рибулозо-1,5-дифосфата на 3-ФГК и 2-фосфогликолевую кислоту, которая затем дефосфорилируется в гликолевую кислоту (рис.). Молекулы С02 и 02 конкурируют между собой в каталитическом центре РДФ-карбоксилазы: при относительно высоких концентрациях С02 и низких 02 преобладает карбоксилирование, тогда как высокие концентрации 02 и низкое содержание СО2, благоприятствуют окислению, а следовательно, и образованию фосфогликолевой кислоты. В том же направлении действует и повышение температуры.
Фотодыхание осуществляется в результате взаимодействия трех органелл — хлоропластов. пероксисом и митохондрий (рис.). Гликолат из хлоропласта поступает в пероксисому и там окисляется гликолатоксидазой до глиоксилата. Возникающая перекись водорода устраняется каталазой пероксисомы. Глиоксилат аминируется, превращаясь в глицин, причем в качестве донора аминогруппы функционирует глутамат.
Глицин транспортируется в митохондрию. Здесь из двух молекул глицина образуется серии и освобождается С02. Теперь цикл замыкается: серин может снова поступать в пероксисому и там передать свою аминогруппу на пируват. При этом из пирувата возникает аланин, из серина — гидроксипируват, который сразу после этого восстанавливается вглицерат. Затем глицерат может снова попасть в хлоропласты и благодаря фосфорилированию включиться в цикл Кальвина.
Последовательность реакций фотодыхания не обязательно образует цикл. Гликолатный путь С3-растений может завершиться в митохондриях. Конечными продуктами в этом случае являются серин и С02. Освобождение С02 объясняет, почему нетто-фотосинтез (чистая продуктивность) при интенсивном фотодыхании снижается (рис.).
У С4-расгений С02, выделяющийся в результате фотодыхания, перехватывается в клетках мезофилла, где из ФЕП и С02 образуются оксалоацетат и малат. Затем малат «отдает» свой С02 хлоропластам обкладки, где функционирует цикл Кальвина. В связи с этим становится понятным высокий нетто-фотосинтез С4-растений.
С3- путь фотосинтеза.
С3-фотосинтез, цикл Кальвина.
В темновой стадии с участием АТФ и НАДФН происходит восстановление CO2 до глюкозы (C6H12O6). Хотя свет не требуется для осуществления данного процесса, он участвует в его регуляции.
Цикл Кальвина или восстановительный пентозофосфатный цикл состоит из трёх стадий: .
Первая фаза — карбоксилирование. Эта реакция катализируется специфическим для процесса фотосинтеза ферментом рибулозобисфосфат-карбоксилазой/ оксигеназой (сокращенно РБФ-карбоксилаза/оксигеназа), в научной литературе последних лет чаще встречается под названием Rubisco, от ribulosobiphosphatecarboxylase/oxygenase. Впервые Rubisco был выделен и очищен в 1955 году. Особенностью фермента является то, что катализируемая им реакция является самой медленной стадией в цикле фиксации углекислоты. В листьях Rubisco содержится в больших количествах и является основной фракцией белка хлоропластов. Более того, высказывается мнение, что это самый распространенный белок-фермент на земном шаре. В активное состояние фермент переходит при освещении хлоропластов. Уже отмечалось, что формирование этого фермента происходит под контролем двух геномов: большие субъединицы (54 кДа) кодируются в ядре, синтезируются в цитоплазме; малые — кодируются и синтезируются в хлоропласте. При взаимодействии РБФ с С02 образуется сначала промежуточное нестойкое шестиуглеродное соединение, которое затем распадается на две молекулы ФГК. Образовавшаяся ФГК — это органическая кислота, и ее энергетический уровень ниже уровня Сахаров. Поэтому это соединение не может непосредственно превращаться в углеводы. Необходимо превращение его в трехуглеродный сахар — фосфоглицериновый альдегид (ФГА).
Вторая фаза — восстановление. Дальнейшие превращения ФГК требуют участия продуктов световой фазы фотосинтеза: АТФ и НАДФН + Н+. Реакция идет в два этапа. Прежде всего, происходит реакция фосфорилирования 3-ФГК. Донором фосфатной группы является АТФ. АТФ требуется здесь в качестве дополнительного источника энергии. Образуется 1,3-дифосфоглицериновая кислота. Реакция катализируется ферментом фосфоглицерокиназой:
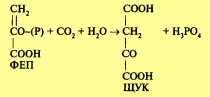
фосфорилирования 3-ФГК
Образовавшееся в этой реакции соединение — дифосфоглицериновая кислота — обладает более высокой реакционной способностью, содержит макроэргическую связь, полученную от АТФ. Затем карбоксильная группировка этого соединения восстанавливается до альдегидной с помощью триозофосфатдегидрогеназы, коферментом которой служит НАДФ.
Образовавшийся ФГА является по уровню восстановленным углеводом. Это соединение вступает в две последние фазы. Пять молекул ФГА используется на регенерацию акцептора РБФ для того, чтобы фиксация С02 могла снова осуществляться. Оставшаяся шестая молекула вступает в фазу «синтеза продуктов», где превращается в более сложные соединения (углеводы, аминокислоты и др.).
Третья фаза — регенерация. В процессе регенерации акцептора используется пять молекул ФГА, в результате чего образуются три молекулы рибулезо-5-фос-фата. Этот процесс идет через образование 4-, 5-, 6-, 7-углеродных соединений. Прежде всего, первая молекула ФГА изомеризуется до фосфодиоксиацетона. Процесс катализируется ферментом триозофосфатизомеразой. От ФДФ отщепляется фосфат, и ФДФ превращается во фруктозо-6-фосфат (ф-6-Ф). Далее от Ф-6-Ф (С6) отщепляется 2-углеродный фрагмент (—СО—СН2ОН), который переносится на следующую (третью) триозу. Это транскетолазная реакция идет при участии фермента транскетолазы. В результате образуется первая пентоза (С5)-рибулезофосфат. От Ф-6-Ф остается 4-углеродный сахар эритрозофосфат фосфорилирование. Для этого используются три молекулы АТФ, образовавшиеся в результате световых реакций. Все реакции, входящие в цикл Образовавшийся триозофосфат (ФГА) вступает в четвертую стадию темновых реакций — стадию образования продуктов фотосинтеза. (С4), который конденсируется с четвертой триозой с образованием седогептулезодифосфата (С7). После отщепления фосфата седогептулезодифосфат превращается в седогептулезофосфат. Далее снова происходит транскетолазная реакция, в результате которой от седогептулезофосфата отщепляется 2-углеродный фрагмент, который переносится на пятую триозу Образуются еще две молекулы рибулезофосфата. Таким образом, в результате рассмотренных реакций получаются 3 молекулы рибулезофосфата. При прохождении двух циклов из 12 молекул образовавшегося ФГА две молекулы выходят из них, образуя одну молекулу фруктозодифосфата (ФДФ). Из двух молекул фруктозодифосфата (Ф-1, 6-диФ) образуются фруктозо-6-фосфат (ф-6-Ф) и глюкозо-1-фосфат (Г-1-Ф). Глюкозо-1-фосфат, взаимодействуя с уридинтрифосфатом (УТФ), дает уридиндифосфоглюкозу (УДФГ). В свою очередь УДФГ, реагируя с Ф-6-Ф, дает сахарозофосфат. По-видимому, именно сахароза является первым свободным сахаром, образующимся в процессе фотосинтеза. Из сахарозы образуются нефосфорилированные моносахара (глюкоза и фруктоза). Крахмал образуется из аденозиндифосфоглюкозы (АДФГ) или уридиндифосфоглюкозы (УДФГ), процесс катализируется ферментом амилосинтетазой. Среди первых продуктов фотосинтеза обнаружены аминокислоты. По-видимому, ФГК, образовавшаяся на первом этапе цикла Кальвина, может превращаться в пировиноградную кислоту. Этот процесс идет особенно интенсивно при недостатке НАДФН, из-за чего задерживается преобразование ФГК в ФГА (обычный путь в цикле Кальвина). Пировиноградная кислота в присутствии NH3 дает аминокислоту аланин. Показано, что скорость включения 14С02 в аланин в клетках хлореллы при некоторых условиях может даже превышать скорость ее включения в сахарозу. Из пировиноградной кислоты может образоваться еще ряд органических кислот (в цикле Кребса).
Образовавшиеся органические кислоты в процессе аминирования или переаминирования дают аминокислоты. Сам по себе синтез аминокислот еще не означает образование белков. Однако было показано, что между этими двумя процессами имеется прямая связь. Так, под влиянием освещения синими лучами (458—480 нм) усиливается фотосинтетическое образование, как аминокислот, так и белков. В присутствии ингибиторов синтеза белка действие синего света не проявляется. Наконец, из промежуточных продуктов цикла Кальвина могут образовываться жиры, липиды и другие продукты. Состав продуктов, образующихся при фотосинтезе, может быть определен исходя из величин фотосинтетического коэффициента. Под фотосинтетическим коэффициентом понимается отношение выделенного в процессе фотосинтеза кислорода к поглощенному С02. Если в процессе фотосинтеза образуются углеводы, то, согласно приведенному суммарному уравнению, фотосинтетический коэффициент должен быть равен единице: 602/6С02 = 1. При образовании соединений, более восстановленных (содержащих меньше кислорода) по сравнению с углеводами, фотосинтетический коэффициент должен быть больше единицы. В случае образования белков фотосинтетический коэффициент равен 1,25, в случае жира — 1,44. Средняя величина фотосинтетического коэффициента для 27 видов растений оказалась равной 1,04. Расчеты показали, что такая величина фотосинтетического коэффициента указывает на образование наряду с углеводами некоторого количества белка (примерно 12%). Установлено, что величина фотосинтетического коэффициента меняется в зависимости от условий. Преобладание синих лучей над красными приводит к увеличению доли образующихся белков, тогда как красный свет благоприятствует образованию углеводов (Н.П. Воскресенская). Усиление снабжения растений азотом, естественно, также приводит к повышению фотосинтетического коэффициента и увеличению первичного синтеза белка. Имеются данные, что на качество продуктов фотосинтеза оказывает влияние интенсивность освещения. При высокой освещенности образуется больше углеводов, а при пониженной — аминокислот.
Обратный цикл Кребса
Обра́тный
цикл Кре́бса, также известный как
обра́тный цикл трикарбо́новых кисло́т,
или цикл А́рнона — последовательность
химических реакций, которую некоторые
бактерии используют для синтеза
органических соединений из диоксида
углерода и воды.
Ф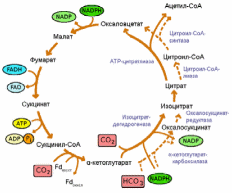 актически
это обращённый цикл трикарбоновых
кислот (ЦТК, цикл Кребса): там, где в цикле
Кребса органические вещества в форме
сахаров окисляются до CO2 и воды, обратный
цикл использует CO2 и воду для синтеза
новых соединений. Цикл используется
анаэробными зелёными серобактериями
и аэробами рода Hydrogenobacter для синтеза
органических веществ, а водород, сульфид
или тиосульфат выступают в качестве
донора электронов. Цикл также был
обнаружен у археи Pyrobaculum islandicum.
Примечательно, что у одного и того же
вида было показано наличие как
восстановительного, так и окислительного
ЦТК: Thermoproteus tenax, Desulfobacter hydrogenophilus и
Pyrobaculum islandicum.
Считается, что три реакции цикла Кребса необратимы, а значит, в цикле Арнона эти реакции должны осуществляться другими ферментами, чтобы сделать цикл обратимым: так, сукцинатдегидрогеназа заменена на фумаратредуктазу, НАД+-зависимая α-кетоглутаратдегидрогеназа на ферредоксин-зависимую α-кетоглутаратсинтазу, а цитратсинтаза на АТФ-цитратлиазу. Эти три фермента обычно считаются характерными для данного цикла.
Большинство бактерий, которые используют этот цикл — мезофилы, однако представители филума Aquificae растут при температуре 70 °C и выше (Aquifex aeolicus вплоть до 95 °C). При таких условия термически неустойчивый сукцинил-CoA[en] распадается на сукцинат и коэнзим А, что сопровождается потерей энергии и делает невозможным его дальнейшее использование в цикле. Aquificae (как было показано на Hydrogenobacter thermophilus[en]) решают эту проблему, тратя дополнительный АТФ на превращение α-кетоглутарата в изоцитрат совместным действием биотин-зависимой α-кетоглутараткарбоксилазы и недекарбоксилирующей изоцитратдегидрогеназы, что делает процесс необратимым при повышенной температуре[6].
У некоторых видов основной путь цикла может иметь некоторые отличия. Так вместо АТФ-цитратлиазы расщепление цитрата могут осуществлять два других фермента: цитрил-CoA синтаза и цитрил-CoA лиаза[en]. Однако, оба эти фермента филогенетически близки к АТФ-цитратлиазе. Их обнаружили у представителей Aquificaceae (но не у других Aquificae). Более того, некоторые протеобактерии (например, Magnetococcus sp. штамм MC-1), вероятно, обладают новым типом АТФ-цитратлиазы.
На конечном этапе цикла ключевой фермент цикла АТФ-цитратлиаза разрушает цитрат на оксалоацетат и ацетил-CoA, используя энергию одной АТФ. Далее происходят следующие реакции:
Ацетил~CoA + CO2 + ФдH2 → Пируват + Фд
Пируват + АТФ → ФЕП + АДФ + Фн
ФЕП + АТФ + 2H+ → глицеральдегид-3-фосфат + АМФ + ФФн
Полученный глицеральдегид-3-фосфат используется для синтеза материалов клетки. Общее уравнение ассимиляции имеет вид:
3CO2 + 2ФдH2 + 2НАДФН·H+ + ФАДH2 + НАДН·Н+ + 5АТФ→ глицеральдегид-3-фосфат
Ассимиляция углекислого газа идёт с большой затратой АТФ и восстановительных эквивалентов. В целом цикл считается анаэробным, поскольку включает много ферментов и восстановителей (Fe4S4 бактериальных ферредоксинов), которые чувствительны к кислороду (из аэробных бактерий такой цикл обнаружен только у Hydrogenobacter.
Этот цикл является возможным кандидатом в реакции, которые могли протекать на Земле в добиологических условиях, и, по этой причине, изучение этого цикла представляет интерес для понимания происхождения жизни. Принципиально, что данный цикл является автокаталитическим — в нём, в отличие от окислительного ЦТК в результате одного оборота цикла количество реагентов, в том числе акцепторов СО2, увеличивается, а не уменьшается, как в цикле Кребса. Так же, было доказано, что некоторые из реакций можно катализировать, используя обычные минералы, в частности пять реакций протекает в присутствии ZnS (сфалерит) на свету.
4. Значение фотосинтеза
Какова же роль процесса фотосинтеза и зеленых растений?
Накопление органической массы. 155 млрд. т. органических веществ или 95% от общего количества ежегодно образуется зелеными растениями, при этом он усваивают 200 млрд. т. СО2 и выделяют примерно 145 млрд.т. О2.
Обеспечение постоянства содержания СО2 в воздухе. Связывание СО2 в ходе фотосинтеза в значительной мере компенсирует его выделение в результате других процессов (дыхание, брожение, деятельность вулканов, производственная деятельность человечества).
Препятствие развитию парникового эффекта. Часть солнечного света отражается от поверхности Земли в виде тепловых инфракрасных лучей. СО2 поглощает инфракрасное излучение и тем самым сохраняет тепло на Земле. Повышение содержания СО2 в атмосфере может способствовать увеличению температуры, то есть создавать парниковый эффект. Это приведет к затоплению прибрежных зон из-за поднятия уровня мирового океана в результате таяния ледников в горах и на полюсах. Однако высокое содержание СО2 в воздухе активирует фотосинтез и, следовательно, концентрация СО2 в воздухе опять уменьшится.
Накопление кислорода в атмосфере. Первоначально в атмосфере Земли кислорода было очень мало. Сейчас его содержание составляет 21 % по объему воздуха. В основном, этот кислород является продуктом фотосинтеза. Ежегодно растения и другие фотосинтезирующие организмы поставляют в атмосферу примерно 120 млрд. тонн кислорода. Почти весь кислород воздуха образовался в результате фотосинтеза древних анаэробных автотрофных организмов. Современные зеленые растения выделяют днем в 20-30 раз больше кислорода. Чем тратят на дыхание в течение суток.
Озоновый экран. Озон (О3) образуется в результате фотодиссоциации молекул кислорода под действием солнечной радиации на высоте около 25 км. Озон задерживает большую часть ультрафиолетовых лучей, губительных для всего живого.
5.Влияние внешних условий на процесс фотосинтеза.
Название фактора |
Влияние на процесс фотосинтеза |
свет |
С повышением интенсивности света ускоряется и фотосинтез, но прямой пропорциональной зависимости между интенсивностью света и фотосинтезом не наблюдается. Зависимость фотосинтеза от количества света будет у разных растений неодинакова. По отношению к интенсивности света растения разделяют на 2 группы: светолюбивые и теневыносливые. Первые хорошо растут на открытых местах, при ярком свете, вторые — в тени. Эти растения отличаются и по интенсивности фотосинтеза: у светолюбивых растений фотосинтез возрастает при увеличении освещения, у теневыносливых остается на одном уровне. У теневыносливых растений максимальный фотосинтез протекает при меньшей освещенности по сравнению со светолюбивыми. Листья светолюбивых растений имеют более толстую листовую пластинку, хорошо развитый мезофилл, несколько слоев столбчатой паренхимы, более толстый слой кутикулы, больше устьиц и большее количество проводящих пучков. Клетки у них мелкие, хлоропласты тоже. Кроме того, они содержат меньше хлорофилла, чем теневыносливые растения. У теневыносливых растений листовая пластинка тонкая, один слой столбчатой паренхимы, сеть жилок слабо развита, устьиц немного. Клетки этих растений крупные, хлоропласты тоже. |
температура |
Температура оказывает большое влияние на процесс фотосинтеза. При повышении температуры на 10° интенсивность фотосинтеза примерно удваивается. Усиление фотосинтеза, однако, происходит только до температуры 30—35°, дальнейшее повышение ее приводит к уменьшению фотосинтеза, и при 40—45° он прекращается. У многих растений наиболее интенсивный фотосинтез наблюдается при 20—25°. По представлению Ф. Блэкмана, форма кривой изменения интенсивности фотосинтеза с повышением температуры обусловлена тем, что наряду с прогрессивным ускорением химических реакций при повышении температуры возникают процессы, угнетающие фотосинтез (инактивация хлоропластов). |
концентрация углекислого газа в воздухе |
В среднем в атмосфере содержится 0,03% углекислого газа по объему, и содержание его в атмосфере почти не изменяется: дефицит быстро выравнивается поступлением СО2 из почвы в результате жизнедеятельности микроорганизмов. При увеличении количества углекислого газа в атмосфере фотосинтез возрастает, но прямой пропорциональности между содержанием углекислого газа и фотосинтезом не наблюдается. Фотосинтез устойчиво увеличивается при повышении содержания углекислого газа до 0,06%, а при значительной интенсивности света и при 1,5—2,0%. В производственных условиях в теплицах и оранжереях в утренние часы, когда фотосинтез идет интенсивно, содержание углекислого газа быстро падает ниже нормы (0,03%) и растения голодают. Поэтому в условиях закрытого грунта уже вошло в практику повышать содержание углекислоты до 1—2%. Однако повышение концентрации углекислого газа неэффективно при слабой интенсивности света, так как углекислый газ не успевает перерабатываться в листьях в органические соединения и действует токсически. При повышении интенсивности света с одновременным увеличением количества углекислого газа возрастает и интенсивность фотосинтеза. |
водоснабжение растения |
При недостатке воды закрываются устьица, в результате замедляется процесс проникновения углекислого газа в лист, а это, в свою очередь, приводит к уменьшению фотосинтеза. При недостаточном водоснабжении подсыхают оболочки клеток мезофилла, граничащие с межклеточниками, что задерживает передвижение углекислого газа к хлоропластам. Вода необходима также и для нормальной работы ферментов, участвующих в процессе фотосинтеза, а в дальнейшем для переработки его продуктов. Временное подвядание растений неблагоприятно влияет на интенсивность фотосинтеза; при этом оно сказывается тем дольше и сильнее, чем длительнее было обезвоживание. При недостатке воды задерживается отток образовавшихся продуктов из листа в стебель и корень растения, что тоже тормозит процесс фотосинтеза, от температуры. Избыточное увлажнение, в результате которого могут закрываться устьица, также отрицательно сказывается на интенсивности фотосинтеза: углекислый газ не может проникнуть внутрь листа. |
Влияние минерального питания |
Влияние калия на фотосинтез многосторонне. При недостатке калия интенсивность фотосинтеза снижается уже через короткие промежутки времени. Калий может влиять на фотосинтез косвенно, через повышение оводненности цитоплазмы, ускорение оттока ассимилятов из листьев, увеличение степени открытия устьиц. Вместе с тем имеет место и прямое влияние калия, поскольку он активирует процессы фосфорилирования. Очень велико значение фосфора для фотосинтеза. На всех этапах фотосинтеза принимают участие фосфорилированные соединения. Энергия света аккумулируется в фосфорных связях. В последнее время много внимания уделяется выяснению роли марганца. При изучении фотосинтеза штамма хлореллы, который может расти как в темноте за счет готового органического вещества, так и на свету, было показано, что марганец необходим только в последнем случае. Для тех микроорганизмов, которые осуществляют процесс фоторедукции, марганец не нужен. Вместе с тем отсутствие марганца резко угнетает реакцию Хилла и процесс нециклического фотофосфорилирования. Все это доказывает, что роль марганца определяется его участием в реакциях фотоокисления воды. Многие соединения, функционирующие как переносчики, содержат железо (цитохромы, ферредоксин) или медь (пластоцианин). Естественно, что при недостатке этих элементов интенсивность фотосинтеза понижается. |
Влияние кислорода |
Повышение концентрации кислорода (до 25%) также тормозит фотосинтез (эффект Варбурга). Тормозящее влияние высоких концентраций кислорода на фотосинтез проявляется особенно резко при повышенной интенсивности света. Эти наблюдения заставили обратить внимание на особенности процесса дыхания в присутствии света (фотодыхание). Химизм этого процесса отличен от обычного темнового дыхания. Фотодыхание— это поглощение кислорода и выделение СО2 па свету в использованием в качестве субстрата промежуточных продуктов цикла Кальвина. По-видимому, образующаяся в цикле Кальвина фосфоглицериновая кислота в процессе фотодыхания окисляется и декарбоксилируется до гликолевой кислоты, а гликолевая кислота окисляется до глиоксилевой кислоты. Образование гликолевой кислоты происходит в хлоропластах, однако там не накапливается, а транспортируется в особые органеллы пероксисомы. В пероксисомах происходит превращение гликолевой кислоты в глиоксилевую кислоту. Глиоксилевая кислота, в свою очередь, подвергается аминированию, а затем декарбоксилированию, при этом выделяется углекислый газ. |