Материал: kompendium_po_fizike
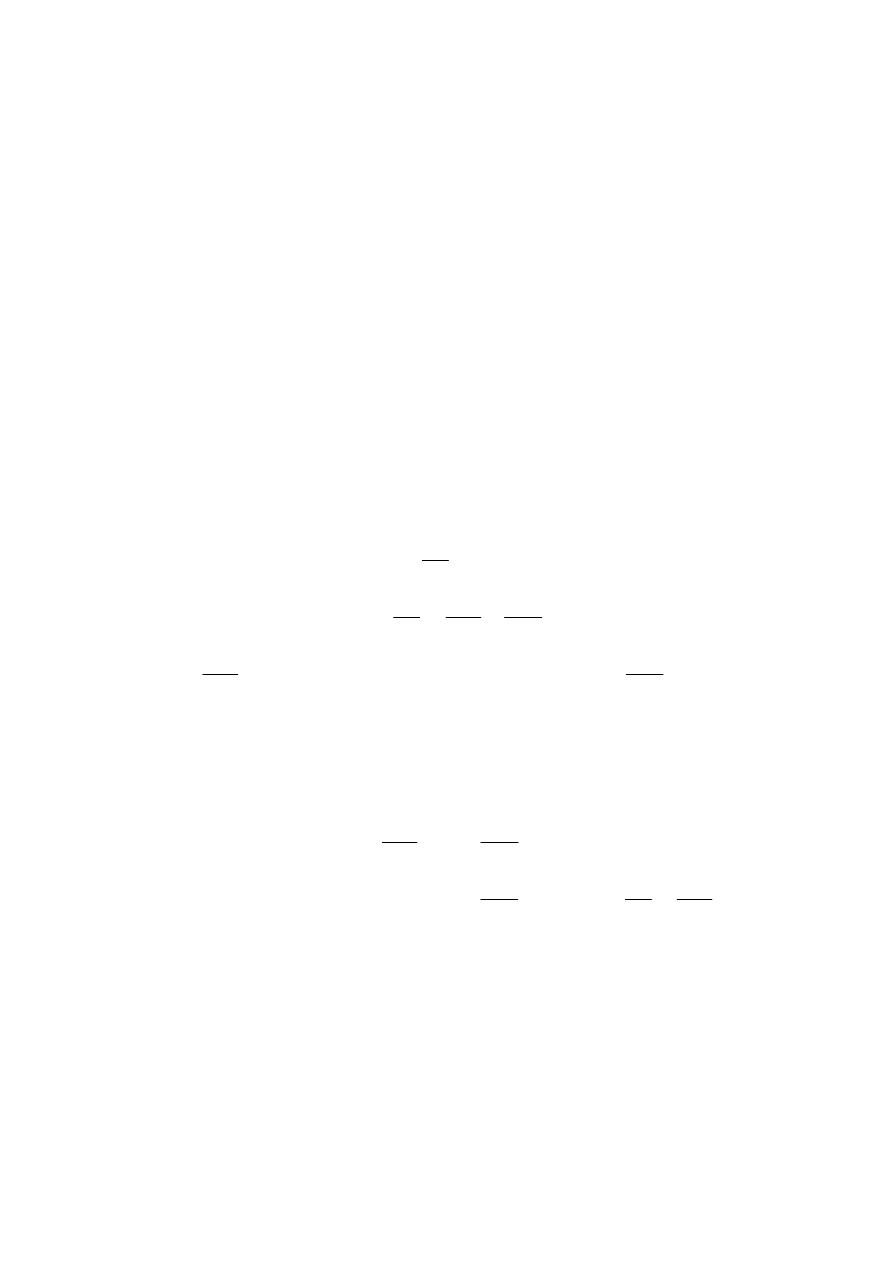
71
системы
:
G
G
G
i
e
.
Так
как
все
реальные
процессы
в
открытых
системах
необратимы
,
то
S
i
всегда
больше
нуля
,
а
G
i
всегда
отрицательно
.
Что
же
касается
S
e
(
или
G
e
),
то
знаки
этих
величин
в
разных
ситуациях
могут
иметь
разные
значения
,
в
ходе
обмена
с
окружающей
средой
свободная
энергия
системы
может
увеличиваться
и
уменьшаться
.
В
организме
первый
случай
имеет
место
при
усвоении
пищи
,
а
второй
–
при
неблагоприятных
воздействиях
,
вызывающих
дополнительные
затраты
свободной
энергии
.
В
общем
случае
в
открытой
системе
0
S
и
0
S
,
причем
в
разные
промежутки
времени
изменения
полной
энтропии
могут
быть
различны
.
В
связи
с
этим
в
термодинамику
открытых
систем
был
введен
параметр
,
который
отсутствовал
в
классической
термодинамике
–
скорость
изменения
энтропии
dt
dS
:
dt
S
d
dt
S
d
dt
dS
e
i
Член
dt
S
d
i
называется
продукцией
энтропии
,
а
dt
S
d
e
–
потоком
энтропии
.
В
открытых
системах
внутреннее
изменение
энтропии
всегда
положительно
,
а
внутреннее
изменение
свободной
энергии
всегда
отрицательно
.
0
,
0
dt
G
d
dt
S
d
i
i
В
изолированной
системе
0
dt
S
d
e
и
dt
S
d
dt
dS
i
.
Для
поддержания
жизни
необходимо
непрерывное
поступление
в
организм
свободной
энергии
из
окружающей
среды
,
чтобы
пополнять
беспрестанную
убыль
свободной
энергии
самого
организма
,
идущей
на
выполнение
работы
в
различных
видах
.
Стационарное
состояние
открытой
системы
–
это
такое
состояние
,
при
котором
основные
макроскопические
параметры
системы
остаются
постоянными
.
72
Стационарное
состояние
Равновесное
состояние
Свободная
энергия
и
работоспособность
системы
постоянны
,
но
не
минимальны
Свободная
энергия
и
работоспособность
системы
минимальны
Энтропия
в
системе
постоянна
за
счет
равенства
продукции
и
потока
энтропии
Энтропия
в
системе
максимальна
Наличие
постоянных
градиентов
в
системе
Отсутствие
градиентов
в
системе
Термодинамическим
критерием
(
условием
)
стационарного
состояния
является
равенство
между
продукцией
энтропии
организмом
и
потоком
энтропии
из
него
в
окружающую
среду
:
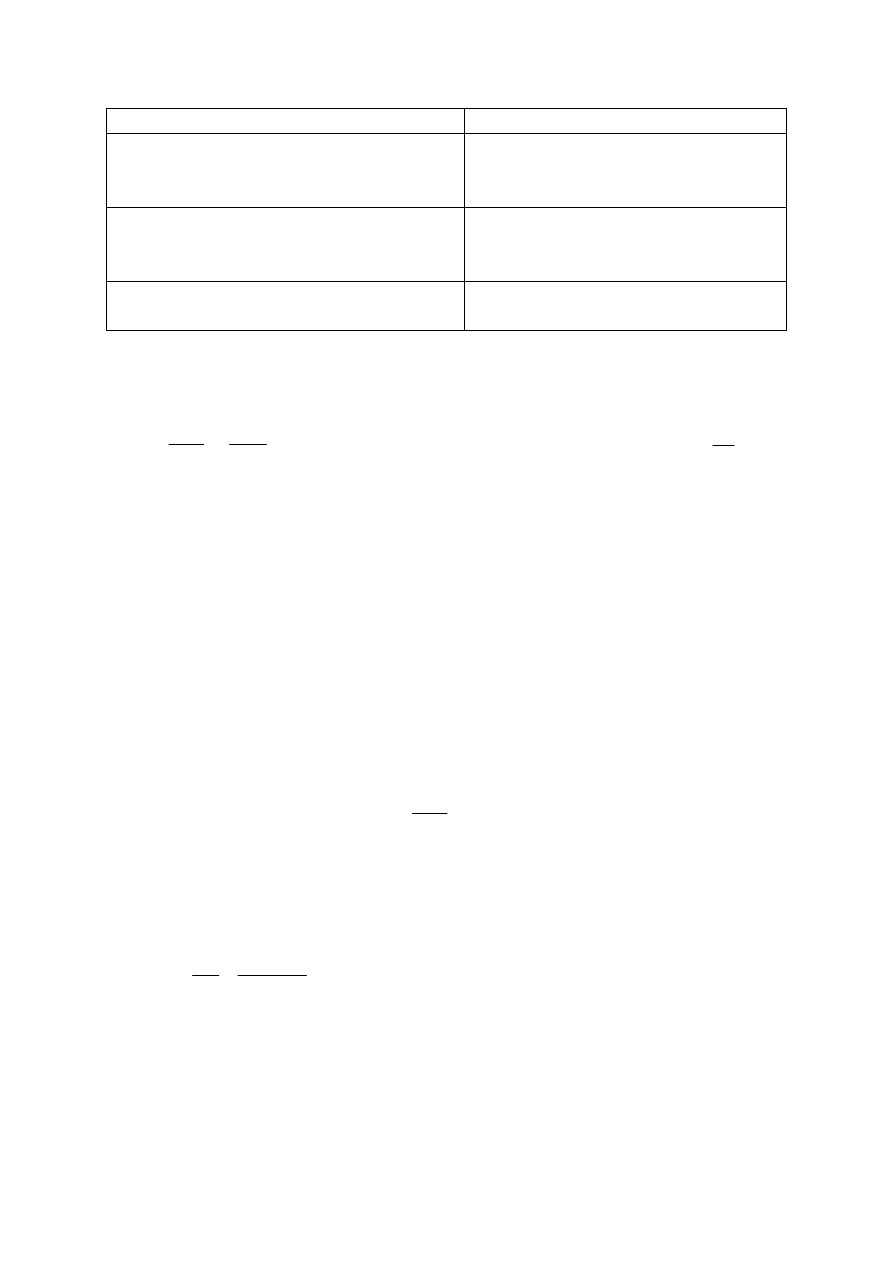
dt
S
d
dt
S
d
e
i
,
а
полное
изменение
энтропии
равно
нулю
0
dS
dt
.
Т
.
е
.
открытая
система
поддерживает
свою
полную
энтропию
постоянной
за
счёт
увеличения
энтропии
окружающей
среды
.
Для
поддержания
стационарного
состояния
открытая
система
из
окружающей
среды
черпает
свободную
энергию
.
Для
сохранения
термодинамического
равновесия
затрачивать
свободную
энергию
не
нужно
.
4.
Теорема
Пригожина
В
стационарном
состоянии
продукция
энтропии
имеет
постоянное
и
минимальное
из
всех
возможных
значений
:
min
dt
S
d
i
.
Теорема
Пригожина
показывает
,
что
в
стационарном
состоянии
диссипация
свободной
энергии
происходит
с
меньшей
скоростью
,
чем
в
любых
других
состояниях
,
т
.
е
.
в
стационарном
состоянии
максимален
:
dF
dF
dU
dF TdS
Сопряженность
биопроцессов
–
некоторая
организация
процессов
,
позволяющая
достигнуть
максимума
использования
свободной
энергии
.
Реализуется
на
клеточном
уровне
–
за
счет
мембран
;
на
органном
–
за
счет
регуляторных
систем
:
нервной
,
эндокринной
,
гуморальной
.
73
СТРУКТУРНО
-
ФУНКЦИОНАЛЬНАЯ
ОРГАНИЗАЦИЯ
МЕМБРАН
.
ТРАНСПОРТ
ВЕЩЕСТВ
ЧЕРЕЗ
БИОЛОГИЧЕСКИЕ
МЕМБРАНЫ
1.
Значение
биологических
мембран
в
процессе
жизнедеятельности
клетки
Клеточная
теория
−
фундаментальная
в
биологии
теория
,
позволившая
дать
научное
обоснование
закономерностей
живого
мира
и
послужившая
основой
для
развития
эволюционного
учения
.
Основоположниками
клеточной
теории
являются
ученые
М
.
Шлейден
(
ботаник
),
Т
.
Шванн
(
зоолог
)
и
Р
.
Вирхов
(
патологоанатом
).
Маттиас
Шлейден
,
Теодор
Шванн
сформулировали
клеточную
теорию
,
основываясь
на
множестве
исследований
о
клетке
(1838).
Обобщив
имеющиеся
знания
о
клетке
,
М
.
Шлейден
и
Т
.
Шванн
доказали
,
что
клетка
является
основной
единицей
любого
организма
.
Клетки
животных
,
растений
и
бактерий
имеют
схожее
строение
.
Позднее
(1858
г
.)
Рудольф
Вирхов
дополнил
клеточную
теорию
тезисом
о
единстве
всех
живых
организмов
и
непрерывности
самой
жизни
– «
каждая
клетка
–
из
клетки
».
Таким
образом
,
Т
.
Шванн
,
М
.
Шлейден
и
Р
.
Вирхов
ввели
в
науку
основополагающее
представление
о
клетке
:
вне
клеток
нет
жизни
.
Клеточная
мембрана
(
КМ
)
–
это
оболочка
клетки
,
выполняющая
следующие
три
основные
функции
:
барьерную
–
КМ
обеспечивает
избирательный
(
селективный
),
регулируемый
пассивный
и
активный
обмен
веществом
с
окружающей
средой
;
матричную
–
КМ
отвечает
за
определенное
взаимное
расположение
и
ориентацию
мембранных
белков
для
обеспечения
их
оптимального
взаимодействия
;
механическую
–
КМ
обеспечивает
прочность
и
автономность
клетки
и
внутриклеточных
структур
.
Кроме
трех
основных
функций
,
перечисленных
выше
,
КМ
74
выполняет
и
другие
функции
:
энергетическую
–
синтез
АТФ
на
внутренних
мембранах
митохондрий
и
фотосинтез
на
мембранах
митохондрий
;
генерацию
и
проведение
биоэлектрических
потенциалов
;
рецепторную
–
в
основе
механической
,
обонятельной
,
зрительной
,
химической
и
тепловой
рецепции
лежат
процессы
,
происходящие
на
КМ
.
2.
Молекулярная
организация
и
модели
клеточных
мембран
Термин
«
модели
клеточных
мембран
»
можно
понимать
в
следующих
двух
смыслах
:
модель
клеточной
мембраны
как
этап
в
знаниях
человечества
о
строении
и
структуре
мембран
;
модель
клеточной
мембраны
как
искусственно
созданное
исследователями
подобие
реальных
мембран
(
прообраз
реального
объекта
),
предназначенное
для
изучения
(
моделирования
)
свойств
КМ
.
Первая
модель
строения
биологических
мембран
(
БМ
)
была
предложена
в
1902
году
немецким
ученым
Э
.
Овертоном
.
На
основании
экспериментально
обнаруженных
способностей
проникать
в
клетку
веществ
,
растворимых
в
липидах
,
Овертон
пришел
к
заключению
,
что
БМ
состоит
из
тонкого
слоя
фосфолипидов
.
На
границе
раздела
полярной
и
неполярной
сред
молекулы
фосфолипидов
образуют
тонкий
монослой
,
в
котором
полярные
«
головки
»
молекул
фосфолипидов
погружены
в
полярную
среду
(
например
в
воду
),
а
неполярные
«
хвосты
»
молекул
обращены
в
сторону
неполярной
среды
(
например
воздуха
).
В
1925
году
ученые
Гортер
и
Грендел
проводили
опыты
по
экстрагированию
липидов
из
мембран
эритроцитов
и
установили
,
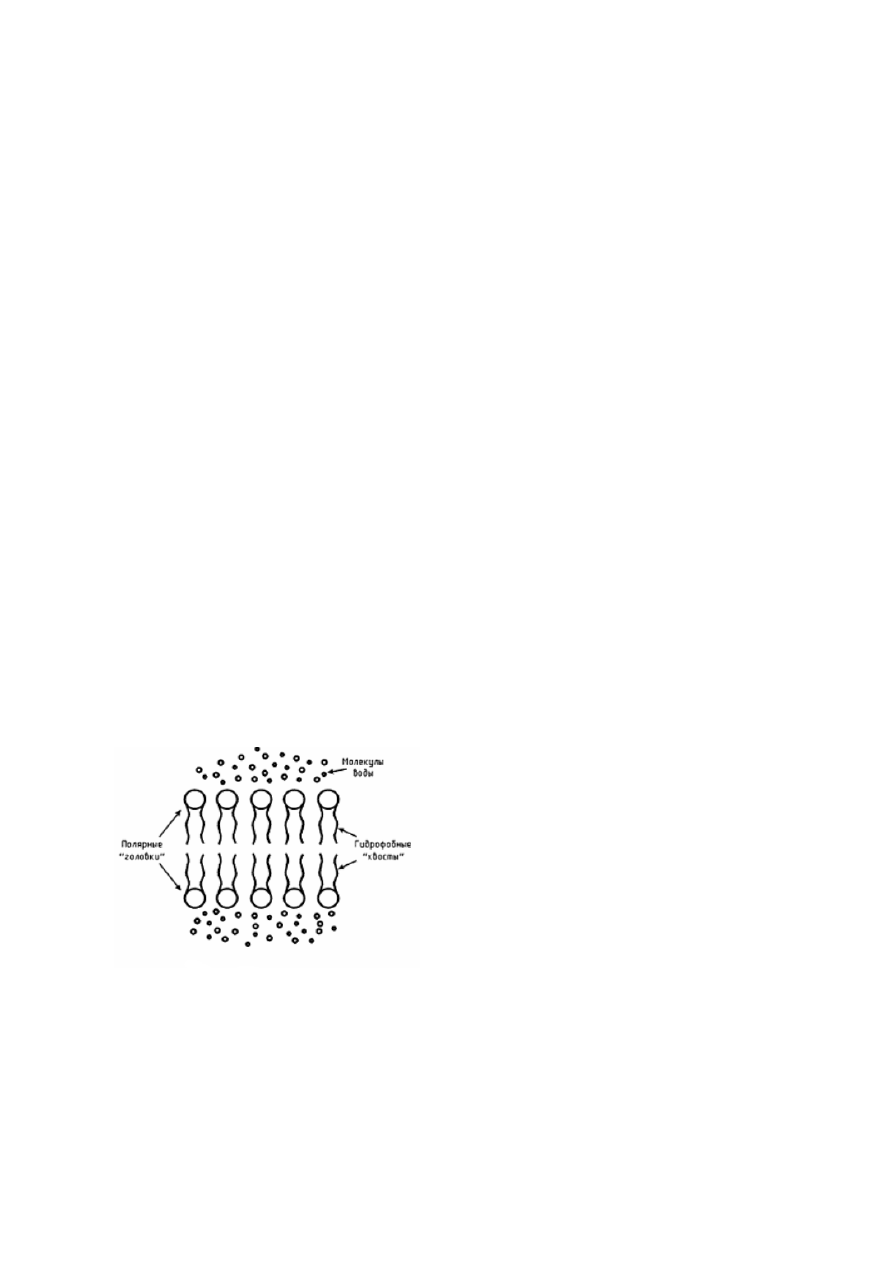
Рисунок
24.
Организация
липидного
бислоя
в
мембране
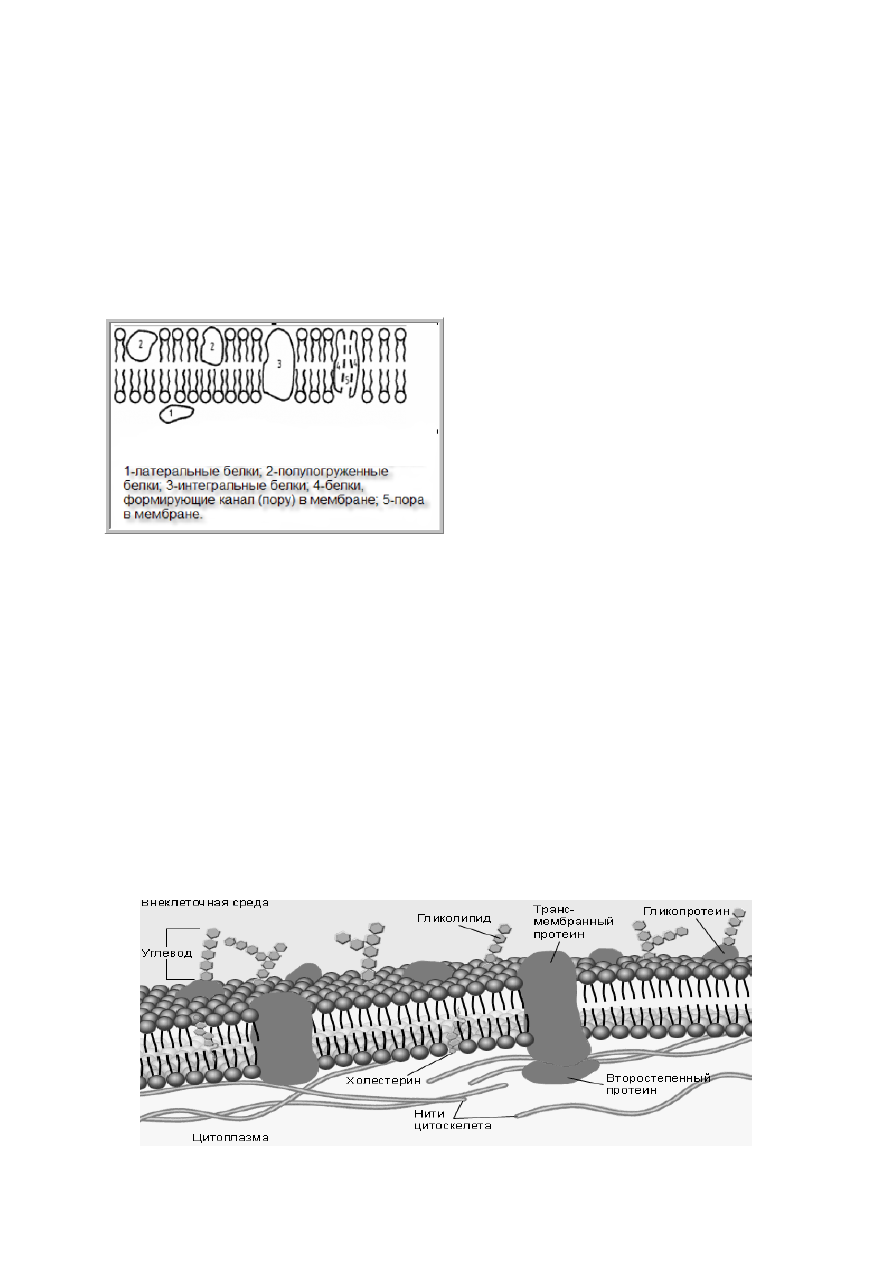
75
что
площадь
монослоя
липидов
,
извлеченных
из
мембран
,
примерно
в
два
раза
больше
площади
поверхности
эритроцитов
.
Это
обстоятельство
позволило
исследователям
сделать
заключение
о
том
,
что
в
составе
БМ
липиды
образуют
двойной
слой
.
Так
появилась
билипидная
модель
БМ
(
рисунок
24).
Чуть
позже
появились
экспериментальные
данные
,
которые
свидетельствовали
о
том
,
что
многие
физические
свойства
(
диэлектрическая
проницаемость
,
удельная
емкость
,
поверхностное
натяжение
и
т
.
д
.)
клеточных
мембран
и
липидного
бислоя
различаются
количественно
.
Данное
обстоятельство
указывало
на
то
,
что
строение
БМ
более
сложное
,
чем
простой
липидный
бислой
.
В
1935
году
Даниелли
и
Девсон
устранили
имеющиеся
противоречия
–
они
высказали
идею
,
что
в
состав
БМ
,
помимо
липидов
,
входят
еще
и
молекулы
белков
.
Исследователи
предложили
так
называемую
«
бутербродную
»
или
«
сэндвичную
»
модель
БМ
–
липидные
слои
располагаются
между
двумя
слоями
белковых
молекул
наподобие
бутерброда
.
Современная
модель
строения
БМ
была
выдвинута
в
1972
г
.
Сингером
и
Никольсоном
и
получила
название
жидкостно
-
мозаичной
модели
.
Рисунок
25.
Структура
биологической
мембраны