Материал: bio_otvety_2016-17
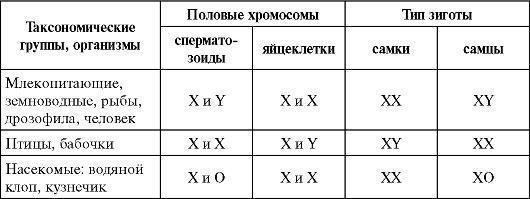
Размер. У большинства млекопитающих и многих видов птиц самцы более крупные и тяжёлые, чем самки..
Волосяной покров. Борода у мужчин, грива у львов или бабуинов.
Окраска. Цвет оперения у птиц, особенно у утиных.
Кожа. Характерные наросты или дополнительные образования, такие как рога у оленевых, гребешок у петухов.
Зубы. Бивни у самцов индийского слона, более крупные клыки у самцов моржей и кабанов.
Типы определения пола:
Прогамный; прогамное определение пола происходит до оплодотворения, в процессе формирования яйцеклеток. Таким образом, пол особи, развивающейся из диплоидного яйца, определяется ещё на стадии формирования яйцеклетки , а пол особи, развивающейся из мелкого яйца, зависит от того, будет оно оплодотворено или нет;
Эпигамный; под влиянием внешней среды – например, температуры; У некоторых рептилий пол определяется температурой, в которой развивалось яйцо в течение температурочувствительного периода. Это явление носит название температурозависимого определения пола;
Сингамный; сингамное определение пола происходит при оплодотворении, и пол определяется генетически.
Хромосомный механизм определения пола у разных организмов
У млекопитающих развитие половых признаков мужского пола обусловлено значительным количеством генов, большая часть которых расположена в аутосомах. Которые начинают они работать только при наличии фактора, который расположен на маленькой Y-хромосоме.
Развитие зародышей крокодила у мужских и женских особей определяется температурой, при которой происходит инкубация яиц.32-33 градуса - самцы, выше или ниже - самки.
14) Хромосомная теория наследственности Т. Моргана. Основные положения. Группы сцепления. Группы сцепления у гомо- и гетерогаметного пола у человека. “Цис-“, “транс-“ положение генов в группах сцепления. Кроссинговер как механизм, нарушающий сцепление генов. Построение хромосомных карт.
Хромосомная теория наследственности — теория, согласно которой передача наследственной информации в ряду поколений связана с передачей хромосом, в которых в определённой и линейной последовательности расположены гены.
Анализ явлений сцепленного наследования, кроссинговера, сравнение генетической и цитологической карт позволяют сформулировать основные положения хромосомной теории наследственности:
гены находятся в хромосомах. каждая хромосома представляет группу сцепления генов.число групп сцеплений = гаплоидному набору хромосом, постоянному для каждого вида.
Гены расположены в хромосоме в строго определенном локусе. гены рассположены линейно.
сцепление генов может нарушаться в результате кроссинговера. в процессе которого между гомологичными хромосомами происходит обмен одним или несколькими аллельными генами.
расстояние между генами в хромосоме пропорционально частоте кроссинговера между ними.
Гены одной хромосомы образуют группу сцепления, то есть наследуются преимущественно сцепленно (совместно), благодаря чему происходит сцепленное наследование некоторых признаков.
Сцепление нарушается в результате кроссинговера, частота которого прямо пропорциональна расстоянию между генами в хромосоме (поэтому сила сцепления находится в обратной зависимости от расстояния между генами).
Группа сцепления — совокупность генов, находящихся в одной хромосоме. Число групп сцепления равно гаплоидному числу хромосом данного вида (у гомогаметного пола) или больше на 1 (у гетерогаметного пола).
Генети́ческая ка́рта — схема взаимного расположения структурных генов, а также относительных расстояний между ними на хромосоме. Генетические карты
составляют для каждой пары гомологичных хромосом. Каждой паре присваивается номер (I, II, III и т.д.), группы сцепления номеруются в порядке их обнаружения. Кроме номера в каждой из групп сцепления указывают полное или сокращенное название генов, а также место расположения центромеры. Следует отметить, что длина хромосомы не обязательно является показателем ее генетической активности. Для генетических карт применяется термин «локус» для обозначения места гена в хромосоме или на ее карте.
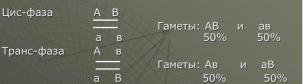
Пример записи цис- и трансположения:
Цис-положение - расположение тесно сцепленных рецессивных аллелей двух или нескольких локусов в одной из хромосом гомологичной пары, а доминантных — в другой. Транс-положение - локализация 2 данных аллелей (генов) на разных гомологичных хромосомах.
15) Цитоплазматическая наследственность. Плазмогены. Наследование внеядерных генов. Закономерности наследования внеядерных генов. Плазмиды; их роль в передаче наследственной информации у прокариот. Горизонтальный перенос генов.
Наследственность цитоплазматическая (внеядерная, нехромосомная, плазматическая) - преемственность материальных структур и функциональных свойств организма, которые определяются и передаются факторами, расположенными в цитоплазме. Совокупность этих факторов - плазмогенов, или внеядерных генов, составляет плазмон (подобно тому, как совокупность хромосомных генов - геном) . Плазмогены находятся в самовоспроизводящихся органеллах клетки - митохондриях и пластидах.
Плазмогены передаются главным образом через женскую половую клетку (яйцеклетку) , так как мужская половая клетка (спермий) почти не содержит цитоплазмы (что, однако, не
исключает передачи плазмогенов через мужские гаметы). У растений и животных различия, обусловленные цитоплазматической наследственностью, сводятся в основном к преобладанию материнских признаков и проявлению определённого фенотипа при одном направлении скрещивания и его утрате при другом.
Прокариоты, помимо генов, которые заключены в хромосомную ДНК, имеют небольшой внехромосомный набор генов, или по-другому – плазмиды. У некоторых плазмид есть свойство встраиваться в хромосомы хозяйских клеток, тогда такая разновидность плазмид называется эписомами. Бактериальные плазмиды представляют собой двухцепочечные, небольшие по размерам кольцевидные молекулы ДНК, которые имеют способность удваиваться отдельно от хромосомы хозяина. Только плазмиды, которые входят в состав хромосом бактерий, удваиваются вместе с бактерией. В гены многих плазмидов заключена информация, которая в последующем будет влиять на фенотип клетки, в которой находится плазмида.
Горизонтальный перенос генов (ГПГ) — процесс, в котором организм передаёт генетический материал другому организму, не являющемуся его потомком.
16) Репарация генетического материала. Фотореактивация. Темновая репарация. Этапы. Мутации, связанные с нарушением репарации. Примеры.
Главным антимутационным барьером рассматривается выработавшая в процессе эволюции способность к репарации наследственного материала. Её сущность - в устранении из наследственного материала клетки изменённого участка.
Различают 3 системы репарации генетического материала:
эксцизионная репарация (репарация путём «вырезания»);
фоторепарация;
пострепликативная репарация;
Эксцизионная репарация - удаление повреждённых азотистых оснований из ДНК и последующее восстановление нормальной структуры молекулы по комплементарной цепи. Ферментативная система удаляет короткую однонитевую последовательность двунитевой ДНК, содержащей ошибочно спаренные или поврежденные основания, и замещает их путём синтеза последовательности, комплементарной оставшейся нити. Фоторепарация (фотореактивация) - является наиболее простым механизмом репарации ДНК. Заключается в расщеплении ферментом (дезоксирибопиримидинфотолиазой), активируемым видимым светом, циклобутановых димеров, возникающих в ДНК под действием ультрафиолетового излучения. Пострепликативная репарация - пострепликативная репарация «включается» тогда, когда эксцизионная репарация «не справляется» с устранением всех повреждений, возникших в ДНК до её репликации. При репликации во второй спирали ДНК возникают бреши - однонитевые пробелы, соответствующие изменённым нуклеотидам первой спирали. Бреши заполняются участками цепи с нормальной последовательностью нуклеотидов уже в ходе пострешгикативной репарации при участии ДНК-полимеразы. Позднее была обнаружена и темновая репарация, т. е. свойство клеток ликвидировать повреждения ДНК без участия видимого света. Темновая репарация осуществляется комплексом из пяти ферментов:
узнающего химические изменения на участке цепи ДНК;
осуществляющего вырезание поврежденного участка;
удаляющего этот участок;
синтезирующего новый участок по принципу комплементарности взамен удаленного фрагмента;
соединяющего концы старой цепи и восстановленного участка.
При световой репарации исправляются повреждения, возникшие только под воздействием ультрафиолетовых лучей, при темновой — повреждения, появившиеся под влиянием жесткой радиации, химических веществ и других факторов. Темновая репарация обнаружена как у прокариот, так и в клетках эукариот. У последних она изучается в культурах тканей. Вопрос о том, почему одни повреждения репарируются, а другие нет, остается открытым. Если репарация не наступает, то клетка либо гибнет, либо наступает мутация.
Связь мутаций с репарацией ДНК.
Спонтанные повреждения ДНК встречаются довольно часто, такие события имеют место в каждой клетке. Для устранения последствий подобных повреждений имеется специальные репарационные механизмы (например, ошибочный участок ДНК вырезается и на этом месте восстанавливается исходный). Мутации возникают лишь тогда, когда репарационный механизм по каким-то причинам не работает или не справляется с устранением повреждений. Мутации, возникающие в генах, кодирующих белки, ответственные за репарацию, могут приводить к многократному повышению (мутаторный эффект) или понижению (антимутаторный эффект) частоты мутирования других генов. Так, мутации генов многих ферментов системы эксцизионной репарации приводят к резкому повышению частоты соматических мутаций у человека, а это, в свою очередь, приводит к развитию пигментной ксеродермы и злокачественных опухолей покровов.
17) Изменчивость, ее формы. Модификационная изменчивость; адаптивный характер модификаций. Норма реакции генетически детерминированных признаков. Морфозы и фенокопии. Примеры.
Изменчивость - это свойство живого изменяться, выражающееся в способности приобретать новые признаки или утрачивать прежние. Причинами изменчивости являются разнообразие генотипов, условия среды, которые определяют разнообразие в проявлении признаков у организмов с одинаковыми генотипами. Фенотипические
различия, вызываемые внешними факторами, называются модификационными.Модификационная изменчивость детерминируется генотипом. Сезонные модификации - генетически детерминированная смена признаков в результате сезонных изменений климатических условий.
Экологические модификации - адаптивные изменения фенотипа в ответ на изменение условий внешней среды. Фенотипически они проявляются в степени выраженности признака. Экологические модификации затрагивают количественные (масса животных, потомство) и качественные (цвет кожи у человека под влиянием УФ-лучей) признаки. Приспособительный (адаптивный) характер имеют все наиболее распространенные модификации. Так повышение числа эритроцитов и содержание Hb в крови животных и человека в горах представляют приспособление для лучшего использования кислорода.
Установлено, что адаптивными бывают только те модификации, которые вызываются обычными изменениями природных условий.
-Модификации не передаются по наследству.
-Модификации однозначны для самых примитивных и высокоорганизованных организмов.
Вариации в проявлении гена не являются беспредельными. Они ограничиваются нормой реакции организма.
Норма реакции - это предел модификационной изменчивости признака.
Различают признаки с широкой нормой реакции (масса скота, урожайность с/х культур), узкой (процент жирности молока, содержание белков в крови у человека) и однозначной нормой (большинство качественных признаков - цвет волос, глаз).
Морфоз — ненаследственное изменение фенотипа организма в онтогенезе под влиянием экстремальных факторов среды. Морфозы возникают в критические периоды онтогенеза и не носят приспособительного характера.
Фенокопии— изменение фенотипа под влиянием фактором внешней среды. эти изменения проявляются только при опр факторах, если воздействие прекращается то фенотип возвр к своему норм состоянию.Фенокопии сохранются в течение всей жизни лишь при действии преобразующего фактора в период эмбриогенеза. Механизмом фенокопий является нарушение реализации наследственной информации.
пример –приём алкоголя во время беременности может привести к комплексу нарушений схожих с симпотомами болезни Дауна.
Примером проявления фенокопий могут служить заболевания, приводящие к кретинизму, которые могут обусловливаться наследственными и передовыми (в частности, отсутствием йода в рационе ребенка, независимо от его генотипа) факторами.
18) Комбинативная изменчивость, причины возникновения. Значение комбинативной изменчивости в обеспечении генетического разнообразия людей. Система браков. Проблема близкородственных браков. Медикогенетические аспекты семьи.
Комбинативной называют изменчивость, в основе которой лежит образование рекомбинаций, т. е. таких комбинаций генов, которых не было у родителей.
В основе комбинативной изменчивости лежит половое размножение организмов,. Практически неограниченными источниками генетической изменчивости служат три процесса:
Независимое расхождение гомологичных хромосом в первом мейотическом делении.
Взаимный обмен участками гомологичных хромосом, или кроссинговер. Он создает новые группы сцепления.
Эти источники комбинативной изменчивости действуют независимо и одновременно, обеспечивая при этом постоянную «перетасовку» генов, что приводит к появлению организмов с другими генотипом и фенотипом (сами гены при этом не изменяются). Однако новые комбинации генов довольно легко распадаются при передаче из поколения в поколение.
Комбинативная изменчивость является важнейшим источником всего колоссального наследственного разнообразия, характерного для живых организмов.
Системы браков:
Рандомизированный брак (панмиксия) - не выборочный брак;
Аутбридинг (неродственный брак) - брак между особями, не находящихся в родственных связях;
Инбридинг - между особями, которые являющиеся родственниками: - Инцестный брак - между людьми I степени родства; - Родственные (кровнородственные) браки - между людьми II, III степеней родства;
Асортативный брак - выборочные браки: · -Положительные - браки между особями с одинаковыми фенотипами по определенному признаку; -Отрицательные - браки между особями с различными фенотипами по определенной признаку.
Близкородственные браки (инбридинг) значительно влияют на генотипический состав популяции. Родственники, имея общее происхождение, могут быть носителями одного и того же рецессивного патологического гена, и при браке двух здоровых гетерозигот вероятность рождения больного ребенка становится высокой.
Консультирование по поводу прогноза потомства можно разделить на две большие группы: проспективное и ретроспективное.
Проспективное консультирование - риск рождения больного ребенка определяется еще до наступления беременности или на ранних ее этапах.