Материал: Саба 1 Апаратты дидактикалы топтама
СОДЕРЖАНИЕ
Сабақ 2 Жасушаның генетикалық аппараты
Сабақ 3 . Тақырып: Сомалық және жыныс жасушалардың бӛлінуі. Тақырыптың негізгі сұрақтары:
Постмитоздық кезең (пресинтездік) кезең G1:
Гаметогенез (оогенез, сперматогенез), сатылар сипаттмамасы. Мейоз анықтамасы және
Митоз және мейоздың медициналық маңызы.
2 сурет. Көз бұршағының индукциясы.
Онтогенездің жасушалық механизмдерi.
Даму ақауларының сызбасы ДТБА жіктелуі:
Сабақ 5 АҚПАРАТТЫҚ – ДИДАКТИКАЛЫҚ БЛОК
Аутосомды-доминантты тұқым қуалауға тән белгілер:
Аутосомды-рецессивті тұқым қуалауға тән белгілер:
Х-хромосомамен тіркес доминантты тұқым қуалауға тән белгілер:
Х-хромосомамен тіркес рецессивті тұқым қуалауға тән белгілер:
Голандриялық немесе У-хромосомамен тіркес тұқым қуалауға тән белгілер:
Митохондриялық тұқым қуалауға тән белгілер:
Белгілердің тіркес тұқым қуалауы.
Сызба – 2. Талдаушышағылыстыру №1.
Сызба – 3. Талдаушы шағылыстыру № 2
Нуклеин қышқылдары, құрылысы, жіктелуі
РНҚ –ның өмір сүруге қабілеттілігі:
Эукариоттардың генінің молеклалық құрылымы(схема түрінде)
Ген, классификациясы және функциясы
Геннің атқаратын қызметіне байлансыты гендер екі топқа бөлінеді:
Ағзалардың тіршілік қабілетіне байланысты гендер былай жіктеледі:
Нуклейн қышқылдары мен геннің медициналық маңызы
Сабақ 9 Ақпараттық дидактикалық блок
Репликацияның негізгі ферменттері:
Прокариотгендерініңактивтілігініңреттелуі:
Эукариоттар гендерінің экспрессиясының реттелуі
Гендерактивтілігініңгеномдықдеңгейде(ДНҚ)реттелуі
Эукариоттардың ДНҚ фракцияларының сипаттамалары
Кейбіргендердіңконститутивтік(тұрақты)экспрессиясы
Гендер активтілігінің транскрипциялық деңгейде реттелуі
Мутагендік факторлар (радиация, химиялық канцерогендер, вирустар, бос радикалдар, өсу факторлары)
p53 геніндегі ақаулық супрессорлық белсенділіктің тоқтауы
Апоптоз супрессорлары гендерінің белсенді болуы апоптоза
Гендердің амплификациясы. Хромосомалық қайта құрылулар. Жасушаның тоқтаусыз көбеюі. Атиптік клондардың түзілуі атипичных (опухолевых) клеток
1-сурет. Мутациялық канцерогенездің сызбасы Жасушаның ісікке айналуына алып келетін арнайы гендер топтары (класс) бар. Бұл гендер онкогендер деп аталады. Қазіргі уақытта әдебиеттерде 100-ден астам вирустық онкогендер және соған сайкес протоонкогендер сипатталған. Протоонкогендер жасушалардың бөлінуін, жіктелуін, жасуша рецепторларының қызмет атқаруын, ДНҚ репарациясын және сырттан келетін сингалдарға жауап реакцияларын қамтамасыз ететін маңызды гендер тұқымдастары болып табылады. Бұл гендердің өнімдері өсу факторлары деп аталатын ақуыздар болып табылады. Протоонкогендер жасушалық онкогенге екі жолмен айналуы мүмкін. Олардың бірі онкоген өнімінің шамадан тыс көбеюі, екіншісі протоонкогеннің кодтаушы бөлігіндегі қатарлардағы мутациялар арқылы іске асады. Онкоген өнімдерінің артуы, инсерцтік мутация және геннің амплификациясы арқылы да болады. Ретровирустар онкогендері қожайын геномындағы онкогендер жанына немесе тікелей генге ену арқылы геннің промоторы ретінде әсер етіп, оның қарқынды экспрессиясына алып келеді. Бұл құбылыс «ендірме» канцерогенез деген атауға ие. Сонымен қатар, жасуша үшін күйзеліс жағдайында протоонкогендердің амплификациялануы жүреді. Бұл құбылыс - протоонкогеннің амплификациясы (көшірмелерінің көбеюі) олардың белсенділігін артырып, протоонкоеннің онкогенге айналуына алып келеді. Хромосоманың транслокациясы арқылы протоонкогенге жаңа транскрипциялық промотордың жалғануы нәтижесінде протоонкоген тоқтаусыз жұмыс істеп, ақуыздар үнемі бақылаусыз синтезделіп, онкогенге айналады.Кейбір гендік (нүктелік) мутациялар протоонкогенмен синтезделетін ақуыз құрылымын өзгертеді, мысалы оның қызметін бақылайтын ингибиторлармен байланысу орталығының өзгеруіне алып келеді. Ақуыз үнемі белсенді болуы үрдістің бақылаусыз жүруіне жағдай жасайды.
пролиферациясын бастырмалайды, яғни протоонкогендердің экспрессиясын реттейді (тежейді).
Супрессор гендердің мутациялары құрылымы мен қызметі бұзылған ақуыздардың синтезделуіне және түрлі мүшелер мен жүйелердегі ісіктік трансформацияның басталуына әкеледі.
Қазіргі уақытта 20-ға жуық ісіктің супрессорлық гендері анықталған. Олардың мутациялары ісіктің дамуына алып келеді. Супрессорлық гендерде жиі кездесетін мутациядардың түрлері - геннің кодтаушы бөлігінде жүретін миссенс мутациялар және нүктелік делециялар.
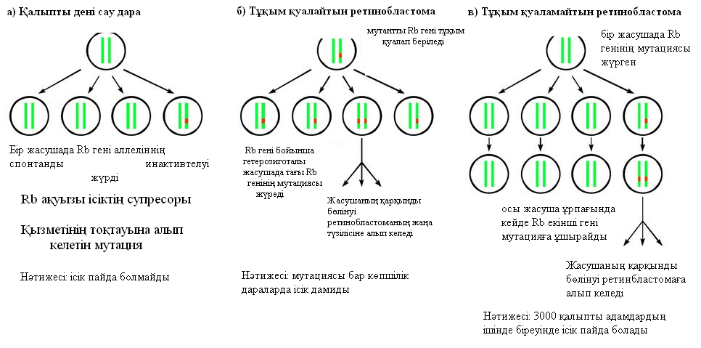
p53 және Rb антионкогендері жақсы зерттелген.
Ретинобластомада (жиілігі — 20 мың баланың ішінде біреуінде) Rb генінің қызметінің тоқтауы байқалады. 60% жағдайда ретинобластома спорадикалды түрде дамиды, ал 40% жағдайда аутосомды-доминантты түрде тұқым қуалап беріледі. Rb генінің тұқым қуалайтын ақаулығы жағдайында, екінші аллелі қалыпты, сондықтан ісіктің дамуы тек екінші (қалыпты) аллелде қосымша мутация болған жағдайда жүруі мүмкін. Спонтанды түрде дамитын ретинобластомада Rb геннінің қызметінің тоқтауы екі алеллді де бірдей қамтиды (3-сурет).